
一种真菌荧光素酶、荧光素酶突变体及其应用
本发明属于植物合成生物学、生物发光技术及植物基因工程领域,具体涉及一种真菌荧光素酶、荧光素酶突变体及其应用。
背景技术:
1、生物发光是自然界中广泛存在的一种生命现象,是指生物体通过酶催化反应将化学能直接转化为可见光的过程。由于生物发光具有背景噪声低、无需外源光激发、实时性好及对生物体损伤小等特点,因此被广泛应用于生命科学研究、医学检测、环境监测、生物传感及活体成像等领域。近年来,随着植物合成生物学和代谢工程技术的发展,将天然生物发光系统导入植物,实现植物自主持续发光,已成为植物功能设计和新型植物底盘构建的重要研究方向,同时在景观照明、观赏植物、生物传感及植物分子育种等领域具有广阔的应用前景。
2、目前,已报道的天然生物发光体系主要包括细菌生物发光系统、昆虫生物发光系统及真菌生物发光系统。其中,细菌发光系统依赖脂肪醛等特定底物,昆虫发光系统依赖荧光素及腺嘌呤核苷三磷酸(adenosine triphosphate,atp)等外源因子,两类系统均难以依靠植物自身代谢长期维持稳定发光,因此在植物中的应用受到较大限制。科学家曾尝试将萤火虫荧光素酶导入植物,但需持续添加昂贵的外源底物,发光微弱且难以持续。相比之下,真菌生物发光系统能够直接利用植物体内天然存在的咖啡酸代谢网络作为底物来源,不需要持续外源添加发光底物,更适合在植物中构建自主循环的生物发光体系,因此成为近年来植物生物发光研究的主要方向。
3、真菌生物发光途径(fungal bioluminescence pathway, fbp)的分子机制于2018年在发光真菌neonothopanus nambi中被首次阐明。该途径通常由hispidin合酶(hispidinsynthase,hisps)、hispidin-3-羟化酶(hispidin-3-hydroxylase,h3h)、真菌荧光素酶(fungal luciferase,luz)、咖啡酰丙酮酸水解酶(caffeoylpyruvate hydrolase,cph)以及4'-磷酸泛酰巯基乙胺转移酶(4'-phosphopantetheinyl transferase,npga)等功能蛋白共同组成。其中,hisps负责催化咖啡酸生成hispidin;h3h进一步催化生成真菌荧光素(3-羟基hispidin);luz催化荧光素氧化发光,同时生成咖啡酰丙酮酸;cph则将咖啡酰丙酮酸重新转化为咖啡酸,从而形成完整的循环代谢途径。由于咖啡酸是植物苯丙烷代谢的重要中间体,因此真菌生物发光系统能够较好地与植物内源代谢网络相衔接,实现持续自主发光。近年来,研究人员已经成功将真菌生物发光途径导入烟草、矮牵牛、杨树、菊花等植物,并获得能够持续自主发光的转基因植株,为植物自发光材料的开发提供了新的技术路线。与此同时,通过优化启动子、增加关键酶表达量、改造前体代谢途径以及提高咖啡酸供应能力等方式,植物生物发光强度得到了显著提升。然而,现有植物生物发光体系仍存在发光亮度有限、发光效率偏低及不同植物间适用性不足等问题,距离实际应用仍存在较大差距。
4、现有研究普遍采用同一来源的真菌荧光素酶作为发光核心催化酶。虽然通过蛋白工程和定向进化能够在一定程度上改善其催化性能,但由于其天然序列本身存在催化效率、蛋白稳定性及表达适应性等方面的限制,进一步提升植物生物发光强度的空间有限。因此,仅依赖现有荧光素酶进行局部优化,难以满足构建高亮度植物生物发光系统的需求。另一方面,不同真菌物种来源的荧光素酶在氨基酸序列、空间结构、底物结合能力及催化特性等方面存在明显差异,这为筛选具有更高催化效率的新型荧光素酶提供了新的思路。已有研究表明,armillaria属真菌具有内在的生物发光遗传潜力。然而,目前针对不同来源真菌荧光素酶在植物生物发光体系中的系统评价仍然较少,其在植物中的应用潜力尚未得到充分开发。
5、基于上述现有技术存在的问题,亟需开发一种具有更高催化活性、能够与植物真菌生物发光途径高效适配的新型荧光素酶,在不改变真菌生物发光途径整体组成的前提下,提高植物体内荧光素氧化发光效率,从而进一步提升植物自主生物发光强度,为构建高亮度植物生物发光系统提供新的技术方案。
技术实现思路
1、针对现有真菌生物发光途径(fbp)因依赖单一来源(光茸菌)荧光素酶而导致植物自发光强度不足的问题。本发明旨在于提供一种真菌荧光素酶、荧光素酶突变体及其应用。通过采用假蜜环菌来源的荧光素酶atluz替代已知荧光素酶,显著提升了植物生物发光强度。
2、为实现上述目的,本发明采用如下技术方案:
3、第一方面,本发明提供了假蜜环菌(
armillaria tabescens)来源的真菌荧光素酶(fungal luciferase,luz)在提高植物生物发光系统发光强度中的应用。
4、所述假蜜环菌来源的真菌荧光素酶(atluz)的氨基酸序列如seq id no.1所示,其编码基因atluz的核苷酸序列如seq id no.2所示。
5、在某些实施方式中,所述应用为在植物叶片中通过农杆菌介导的瞬时表达系统表达假蜜环菌来源的真菌荧光素酶。
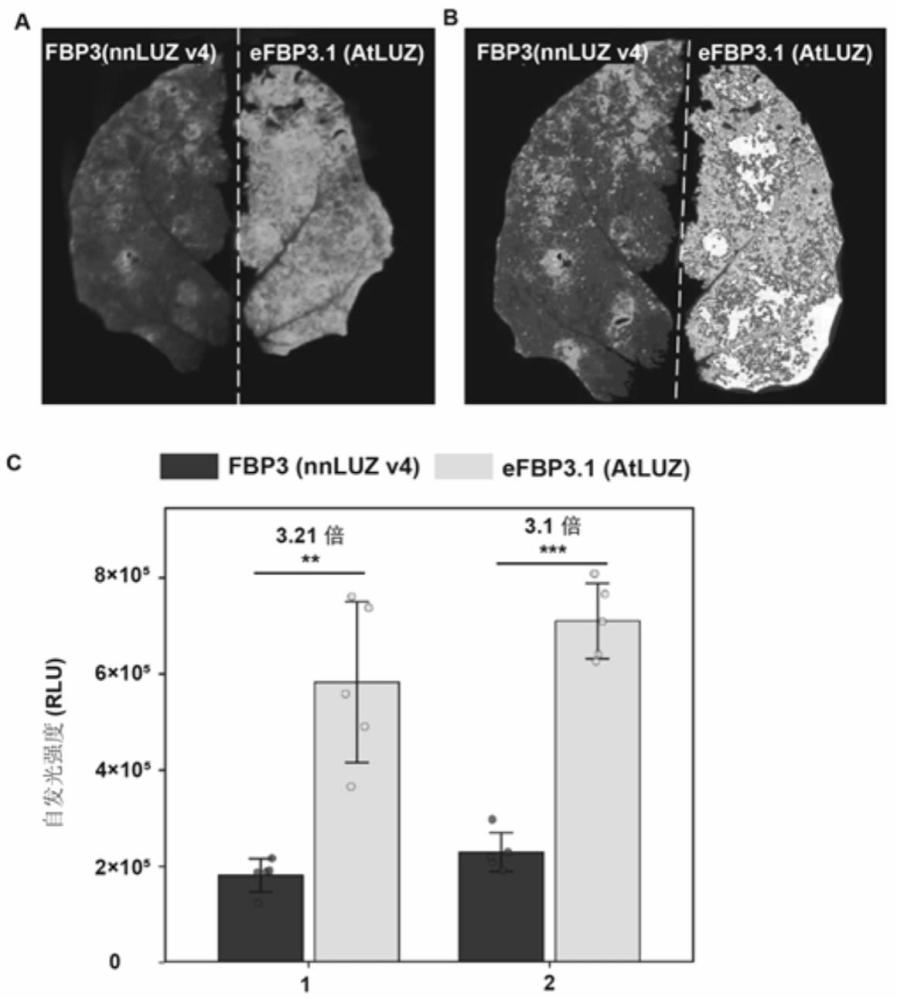
6、本发明研究发现,相较于由nnluz-v4基因、nnh3h-v2基因、nncph基因、mcithisps基因、annpga基因瞬时表达于烟草叶片中获得的自发光叶片,将nnluz-v4替换为假蜜环菌来源的真菌荧光素酶atluz可以显著提高植物的自发光强度。
7、本发明通过序列比对和功能分析发现,atluz与已知的nnluz-v4氨基酸序列同源性较低,且具有更高的催化活性,从而在植物中表达时可显著提高生物发光强度。
8、在某些实施方式中,所述应用包括在植物中表达假蜜环菌来源的真菌荧光素酶,并与hispidin-3-羟化酶(h3h)、咖啡酰丙酮酸水解酶(cph)、hispidin合酶(hisps)和4'-磷酸泛酰巯基乙胺转移酶(npga)共同表达。通过将atluz与经过定向进化的高活性变体nnh3h-v2以及nncph、mcithisps、annpga共同表达,形成了完整的真菌生物发光循环代谢途径,利用植物内源咖啡酸代谢网络作为底物来源,无需外源添加发光底物,实现了植物自主持续的生物发光。
9、所述nnh3h-v2基因、nncph基因、mcithisps基因、annpga基因的核苷酸序列分别如seq id no.3~seq id no.6所示。
10、第二方面,本发明提供了一种真菌荧光素酶突变体,所述突变体为对氨基酸序列如seq id no.1所示的假蜜环菌来源的真菌荧光素酶亲本进行单点或双点突变。
11、所述突变体为对氨基酸序列如seq id no.1所示的假蜜环菌来源的真菌荧光素酶亲本进行单点突变,所述单点突变选自:i4l、v12l、q19k、t24a、t36a、f38y、q46k、v68l、r73s、k77q、i81v、r84q、r84n、r84k、n99t、n99s、n99k、t105i、k125r、e126r、a129e、t130n、t130v、t130r、t130k、t140s、h144y、e155a、n166s、g204a、s209a、g22n、g22a、g22s、i165l、c27t、c27l、i36l、k77r、c28a、l147i、p133a、i171l、k77t、l147v、k8r、i132l、d12i、d94e、q76e、h9y、r114l、c28l、k181g、y14h、f38l、r84e。通过蛋白质结构预测和序列分析从atluz的265个氨基酸残基中筛选出的关键功能位点,对这些位点进行突变可有效调节荧光素酶的催化活性、蛋白稳定性或底物结合能力,从而实现对植物发光强度的精准调控。
12、在某些实施方式中,所述突变体还包含第二点突变,所述第二点突变选自t140p或r84g,且所述突变体选自:f38y+t140p、n99t+t140p、t24a+t140p、n99k+t140p、t105i+t140p、r84n+t140p、v12l+t140p、r73s+r84g。
13、第三方面,本发明提供了编码上述突变体的基因。
14、第四方面,本发明提供了含有上述基因的重组载体、表达盒或宿主细胞。
15、在某些实施方式中,所述宿主细胞为微生物细胞或植物细胞。
16、第五方面,本发明提供了一种提高植物生物发光强度的方法,所述方法包括:在植物中表达假蜜环菌来源的真菌荧光素酶或上述的突变体,以及hispidin-3-羟化酶、咖啡酰丙酮酸水解酶、hispidin合酶和4'-磷酸泛酰巯基乙胺转移酶;所述假蜜环菌来源的真菌荧光素酶的氨基酸序列如seq id no.1所示;所述突变体为对seq id no.1所示的氨基酸序列进行单点或双点突变后获得的突变体。
17、在某些实施方式中,所述植物通过农杆菌瞬时表达系统表达有nnh3h-v2基因、nncph基因、mcithisps基因和annpga基因。其中,nnh3h-v2为经过定向进化获得的高活性hispidin-3-羟化酶变体。
18、所述nnh3h-v2基因的编码序列如seq id no.3所示,所述nncph基因的编码序列如seq id no.4所示,所述mcithisps基因的编码序列如seq id no.5所示,所述annpga基因的编码序列如seq id no.6所示。
19、在某些实施方式中,所述方法包括:利用多基因组装技术将nnh3h-v2基因、nncph基因、mcithisps基因、annpga基因、atluz或atluz突变体基因整合到受体载体中,构建获得多基因载体,利用农杆菌注射法将多基因载体导入烟草叶片中,获得生物发光强度增强的烟草叶片。
20、在某些实施方式中,构建生物发光强度增强型瞬转烟草叶片时,采用transgenestacking ii系统进行多基因组装。所述多基因载体中各目的基因的上游分别含有不同的启动子:atluz基因或其突变体的上游含有1.3 kb的camv 35s启动子,nncph基因的上游含有35s启动子,nnh3h-v2基因的上游含有fmv启动子,mcithisps基因的上游含有0.4 kb的35s启动子,npga基因的上游含有cmylcv启动子。
21、在某些实施方式中,所述植物为烟草(包括本氏烟草)、矮牵牛、杨树或菊花。
22、第六方面,本发明提供了一种生物发光强度增强型植物的生产方法。
23、所述方法包括将编码假蜜环菌来源的真菌荧光素酶的基因或编码上述突变体的基因,与编码hispidin-3-羟化酶、咖啡酰丙酮酸水解酶、hispidin合酶和4'-磷酸泛酰巯基乙胺转移酶的基因共同导入植物中。
24、在某些实施方式中,所述方法包括以下步骤:
25、(1)将mcithisps基因片段和npga基因片段插入受体载体pyltac380gw中,获得受体载体pyltac380gw-mcithisps-npga;
26、(2)将atluz基因或其突变体基因片段和nnh3h-v2基因片段插入供体载体pyl322d1的多克隆位点中,获得供体载体pyl322d1-atluz/(matluz)-nnh3h-v2;所述atluz基因的核苷酸序列如seq id no.2所示;
27、(3)将nncph基因片段插入供体载体pyl322d2的多克隆位点中,获得供体载体pyl322d2-nncph;
28、(4)将供体载体pyl322d1-atluz/(matluz)-nnh3h-v2和受体载体pyltac380gw-mcithisps-npga按2:1混合,共转入大肠杆菌ns3529感受态细胞中,涂布于含卡那霉素和氯霉素的双抗培养基中培养,取阳性菌株提取质粒;
29、(5)使用归巢酶i-sce i对步骤(4)提取的质粒进行酶切,再转化大肠杆菌菌株ep1300,培养、筛选、提取质粒,获得含有目的基因mcithisps、annpga、atluz/(matluz)和nnh3h-v2的阳性克隆pyltac380gw-atluz/(matluz)-nnh3h-v2-mcithisps-npga;
30、(6)将供体载体pyl322d2-nncph和步骤(5)制备的受体载体pyltac380gw-atluz/(matluz)-nnh3h-v2-mcithisps-npga按2:1混合,共转入大肠杆菌ns3529感受态细胞中,涂布于含卡那霉素和氨苄霉素的双抗培养基中培养,取阳性菌株提取质粒;
31、(7)使用归巢酶pi-sce i对步骤(6)提取的质粒进行酶切,再转化大肠杆菌菌株ep1300,培养、筛选、提取质粒,获得含有目的基因mcithisps、annpga、atluz/(matluz)、nnh3h-v2和nncph的阳性克隆pyltac380gw-nncph-atluz-nnh3h-v2-mcithisps-npga;
32、(8)采用农杆菌介导技术将步骤(7)获得的多基因载体转化受体植物。
33、在某些实施方式中,所述农杆菌采用gv3101或eha105。
34、所述供体载体pyl322d1、pyl322d2和受体载体pyltac380gw均为公众可获得的生物材料。
35、所述受体植物可以为任意植物,包括但不限于烟草、矮牵牛、杨树、菊花、番茄、水稻、苔藓等。
36、第七方面,本发明提供了上述突变体、基因、重组载体或宿主细胞在提高植物生物发光强度中的应用。
37、与现有技术相比,本发明取得如下技术效果:
38、本发明提供的假蜜环菌(
armillaria tabescens)来源的真菌荧光素酶在提高植物生物发光强度中的应用,首次将真菌生物发光途径中的核心荧光素酶由光茸菌来源的nnluz-v4替换为假蜜环菌来源的atluz,可显著提升植物自发光强度。该应用为构建高亮度植物自发光系统提供了全新的“换酶”技术思路,突破了现有技术仅依赖于对单一来源荧光素酶进行局部优化的局限,在景观照明、观赏植物、生物传感及植物分子育种等领域具有广阔的应用前景。
39、本发明提供的真菌荧光素酶突变体,通过对atluz进行系统的定点突变筛选,获得了大量酶活提高或保持不变的突变体。多种单点突变体可显著提高叶片的发光强度,提高幅度最高可达95%,双点突变体同样可显著提高发光强度,提高幅度最高可达71%,该突变体为植物自发光强度的进一步提升提供了丰富的酶资源。
40、本发明提供编码上述突变体的基因,通过将突变体基因与真菌生物发光途径其他基因共同构建至植物表达载体中,可实现突变酶在植物中的高效表达,为后续的植物遗传转化和转基因植株创制提供了必需的基因元件。
41、本发明提供的提高植物生物发光强度的方法,通过农杆菌介导的瞬时表达系统在本氏烟草叶片中实现了五基因的共表达,操作简便、周期短、通量高。实验证明,采用该方法可使表达atluz五基因组合的烟草叶片发光强度提升至nnluz五基因组合烟草叶片的3.1倍,atluz突变体可进一步提高发光强度1.1~1.7倍,为高强度自发光植物的快速筛选和验证提供了高效可行的瞬时表达技术方案,适用于不同植物物种中荧光素酶活性的快速评价和最适突变体的筛选。
42、本发明提供的生物发光强度增强型植物的生产方法,采用该方法成功获得了稳定表达efbp3.1的转基因烟草植株,与表达fbp3(含nnluz-v4)的转基因烟草相比,表达efbp3.1的转基因烟草自发光亮度明显更强,该方法不仅适用于烟草,还可拓展至矮牵牛、杨树、菊花、番茄、水稻等多种植物,为发光植物的商业化育种和生产提供了完整的技术路径,在景观照明和观赏植物领域具有极强的产业化价值。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com