
一种工程菌及其用途的制作方法
本发明属于微生物领域,涉及一种改造的类球红细菌,以及所述改造的类球红细菌在产生甲萘醌7(mk-7)中的用途。
背景技术:
1、维生素k2又称为甲萘醌,是一种脂溶性维生素,含有2-甲基-1,4-萘醌母核及c3位带有数目不等的异戊二烯结构单元的萜烯侧链。其中,萜烯侧链上有35个碳元素的维生素k2又称为甲萘醌-7(menaquinone-7,mk-7),其分子式为c46h64o2,结构式如下所示:
2、
3、mk-7是一种备受推崇的甲萘醌,具有显著的健康益处,包括调节骨骼和动脉中的钙沉积。目前维生素k2 mk-7的工业生产通常依赖于纳豆枯草芽孢杆菌或大肠杆菌菌株,这两种菌株都存在固有的局限性。例如,枯草芽孢杆菌的mk-7产量相对较低,而大肠杆菌虽然可以进行基因改造以提高产量,但通常需要复杂的代谢工程和发酵策略才能达到令人满意的生产力。因此,人们越来越需要替代的生产宿主,这些宿主不仅高效,而且易于扩大规模进行商业生产。
4、红细菌属(例如,类球红细菌(rhodobacter sphaeroides))是光合细菌,其具有优越的生化特性以及多种代谢方式,能够产生辅酶q10、5-氨基乙酰丙酸、类胡萝卜素和氢气等,在食品、医药、氢气产生等领域有广泛应用。近年来,已有许多研究对类球红细菌进行改造(例如菌株诱变、基因编辑等)用于化合物的生产。目前,还未有改造类球红细菌用于生产mk-7的报道。
技术实现思路
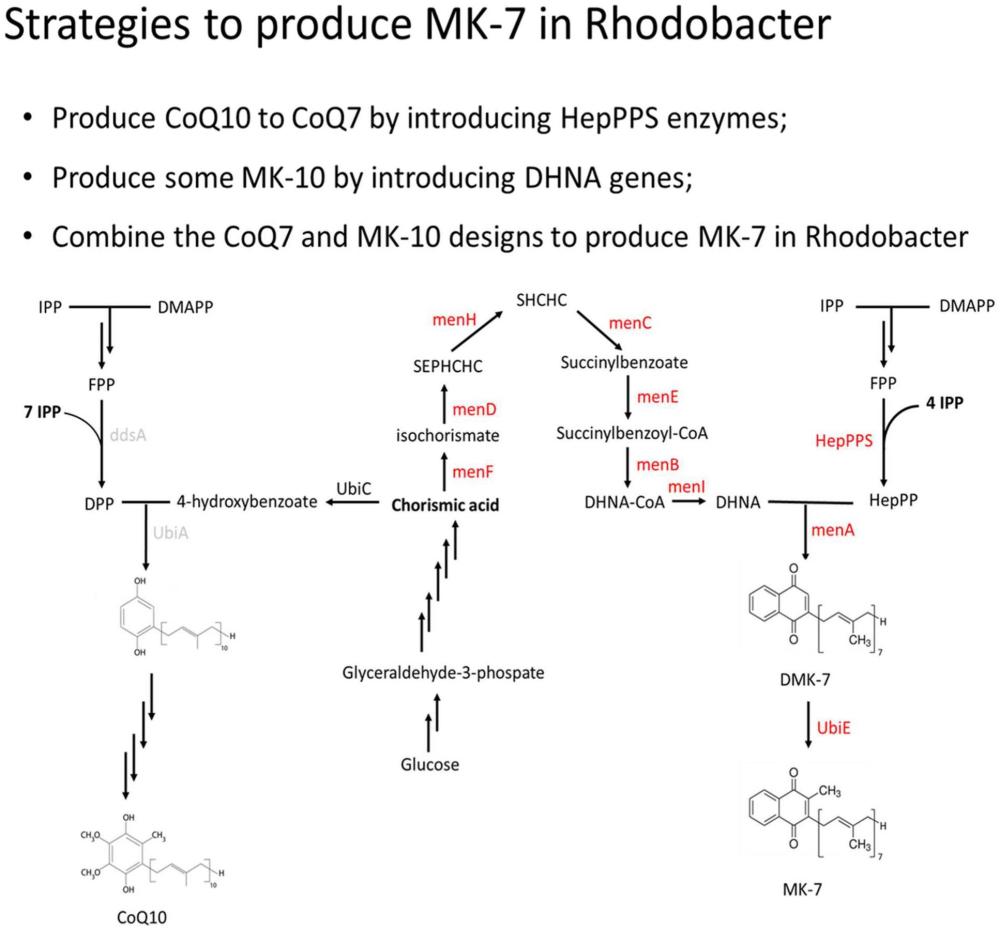
1、本技术的发明人经过大量实验,将甲萘醌生物合成途径的表达与对异戊二烯合成机制的精确修改相结合,开发了一种能够产生mk-7的改造的类球红细菌,并基于所述改造的类球红细菌进一步提供了其在产生mk-7中的用途。由此提供了本发明。
2、一方面,本发明提供了一种改造的类球红细菌,其相较于改造前的类球红细菌,具有:
3、(1)失活或缺失的内源ispb基因;
4、(2)i)heps基因和hept基因;或ii)外源ispb基因,所述外源ispb基因来源于流感嗜血杆菌(haemophilus influenzae);和
5、(3)1,4-二羟基-2-萘甲酸(dhna)合成途径基因和mena基因。
6、在某些实施方案中,所述改造的类球红细菌,其相较于改造前的类球红细菌,通过包含以下步骤的方法获得:
7、(1)抑制或删除类球红细菌的内源ispb基因,所述抑制包括降低或阻断所述内源ispb基因的功能、表达水平、活性或其组合;
8、(2)在类球红细菌中引入:i)heps基因和hept基因;或ii)外源ispb基因,所述外源ispb基因来源于流感嗜血杆菌(haemophilus influenzae);和
9、(3)在类球红细菌中引入dhna合成途径基因和mena基因;
10、其中,步骤(1)、(2)和(3)以任意顺序进行(例如,以任意顺序依次进行,和/或,同时进行)。
11、在某些实施方案中,所述改造的类球红细菌,其相较于改造前的类球红细菌,还具有过表达的ubie基因。
12、在某些实施方案中,所述改造的类球红细菌,其相较于改造前的类球红细菌,通过包含以下步骤的方法获得:
13、(1)抑制或删除类球红细菌的内源ispb基因,所述抑制包括降低或阻断所述内源ispb基因的功能、表达水平、活性或其组合;
14、(2)在类球红细菌中引入:i)heps基因和hept基因;或ii)外源ispb基因,所述外源ispb基因来源于流感嗜血杆菌(haemophilus influenzae);
15、(3)类球红细菌中引入dhna合成途径基因和mena基因;和
16、(4)在类球红细菌中过表达ubie基因;
17、其中,步骤(1)、(2)、(3)和(4)以任意顺序进行(例如,以任意顺序依次进行,和/或,同时进行)。
18、在某些实施方案中,所述“改造前的类球红细菌”也被称为“底盘菌”,术语“底盘菌”是指对改造的类球红细菌进行改造前的起始菌株。所述“底盘菌”可以是野生型类球红细菌,也可以是野生型类球红细菌的突变菌株,其中,所述突变菌株可以是天然存在的突变菌株,也可以是经过人工改造(包括但不限于基因组编辑)获得的突变菌株。
19、在某些实施方案中,其中,在步骤(1)中,所述抑制或删除包括在所述内源ispb基因中引入修饰。
20、在某些实施方案中,所述修饰包括缺失、置换、插入、倒位、重复或其任意组合。
21、在某些实施方案中,所述修饰导致缺失突变、无义突变、错义突变、移码突变、剪接位点突变或其任何组合。
22、在某些实施方案中,所述修饰通过基因组编辑引入。
23、在本发明的上下文中,基因的失活或缺失可以是编码待由细胞产生的所需多肽的基因和/或编码参与细胞的初级或次级代谢物产生的多肽的基因的修饰。原则上,这可以通过降低编码的蛋白质的细胞水平来实现。可以例如通过编码目标酶的基因的靶向失活实现细胞水平的降低。基因可以被整体去除。然而,作为替代,基因的部分缺失也可能导致编码的蛋白质的活性降低。或者或另外地,可以修饰或去除负责基因调节或表达的核苷酸序列,例如启动子增强子、翻译起始位点等。影响目标蛋白质活性的另一种方法可以是修饰转运信号或引入反义rna。
24、在某些实施方案中,通过同源重组在所述内源ispb基因中引入修饰。
25、在某些实施方案中,在步骤(2)-步骤(3)中,通过引入包含选自所述heps基因、所述hept基因、所述外源ispb基因、所述dhna合成途径基因和所述mena基因中的一种或多种基因的载体引入和/或过表达所述一种或多种基因。
26、在某些实施方案中,所述载体还包含启动所述一种或多种基因表达的启动子,和/或终止所述一种或多种基因表达的终止子。
27、在某些实施方案中,所述一种或多种基因的5’端各自独立地包含核糖体结合位点(rbs)。
28、在某些实施方案中,所述一种或多种基因被整合进所述改造的类球红细菌的基因组中。
29、在某些实施方案中,所述heps基因、所述hept基因、所述外源ispb基因、所述dhna合成途径基因和/或所述mena基因的核苷酸序列针对在类球红细菌中表达而被密码子优化。
30、在某些实施方案中,其中,在步骤(4)中,通过引入包含选自所述ubie基因的载体过表达所述ubie基因。
31、在某些实施方案中,所述载体还包含启动所述ubie基因表达的启动子,和/或终止所述ubie基因表达的终止子。
32、在某些实施方案中,所述ubie基因的5’端包含核糖体结合位点(rbs)。
33、在某些实施方案中,所述heps基因、所述hept基因、所述外源ispb基因、所述dhna合成途径基因、所述mena基因、和/或所述ubie基因各自独立地位于相同或不同的载体中。
34、在某些实施方案中,所述内源ispb基因包含选自以下任一项的序列:
35、(1)编码香叶基焦磷酸合成酶或聚戊烯基合成酶的核苷酸序列,所述香叶基焦磷酸合成酶或聚戊烯基合成酶具有癸烯二磷酸合成酶(decaprenyldiphosphate synthase)活性;
36、(2)编码如seq id no:45所示的氨基酸序列的核苷酸序列;
37、(3)如seq id no:31所示的核苷酸序列。
38、在某些实施方案中,所述内源ispb基因编码如seq id no:45所示的氨基酸序列。
39、在某些实施方案中,所述内源ispb基因的核苷酸序列如seq id no:31所示。
40、在某些实施方案中,所述heps基因来源于枯草芽孢杆菌(bacillus subtilis)。
41、在某些实施方案中,所述heps基因包含选自以下任一项的序列:
42、(1)编码香叶基焦磷酸合成酶或聚戊烯基合成酶的核苷酸序列,所述香叶基焦磷酸合成酶或聚戊烯基合成酶包含七戊烯基二磷酸合成酶组分1(heptaprenyl diphosphatesynthase component 1);
43、(2)编码如seq id no:34所示的氨基酸序列的核苷酸序列;
44、(3)如seq id no:5所示的核苷酸序列。
45、在某些实施方案中,所述heps基因编码如seq id no:34所示的氨基酸序列。
46、在某些实施方案中,所述heps基因的核苷酸序列如seq id no:5所示。
47、在某些实施方案中,所述hept基因来源于枯草芽孢杆菌(bacillus subtilis)。
48、在某些实施方案中,所述heps基因包含选自以下任一项的序列:
49、(1)编码香叶基焦磷酸合成酶或聚戊烯基合成酶的核苷酸序列,所述香叶基焦磷酸合成酶或聚戊烯基合成酶包含七戊烯基二磷酸合成酶组分2(heptaprenyl diphosphatesynthase component 2);
50、(2)编码如seq id no:35所示的氨基酸序列的核苷酸序列;
51、(3)如seq id no:7所示的核苷酸序列。
52、在某些实施方案中,所述hept基因编码如seq id no:35所示的氨基酸序列。
53、在某些实施方案中,所述hept基因的核苷酸序列如seq id no:7所示。
54、在某些实施方案中,所述外源ispb基因来源于流感嗜血杆菌(haemophilusinfluenzae)。
55、在某些实施方案中,所述外源ispb基因包含选自以下任一项的序列:
56、(1)编码香叶基焦磷酸合成酶或聚戊烯基合成酶的核苷酸序列,所述香叶基焦磷酸合成酶或聚戊烯基合成酶具有七戊烯基二磷酸合成酶(heptaprenyl diphosphatesynthase)活性;
57、(2)编码如seq id no:33所示的氨基酸序列的核苷酸序列;
58、(3)如seq id no:2所示的核苷酸序列。
59、在某些实施方案中,所述外源ispb基因编码如seq id no:33所示的氨基酸序列。
60、在某些实施方案中,所述外源ispb基因的核苷酸序列如seq id no:2所示。
61、在某些实施方案中,所述mena基因来源于大肠杆菌(escherichia coli)或枯草芽孢杆菌(bacillus subtilis)。
62、在某些实施方案中,所述mena基因包含选自以下任一项的序列:
63、(1)编码转移酶的核苷酸序列,所述转移酶具有1,4-二羟基-2-萘甲酸酯基转移酶(1,4-dihydroxy-2-naphthoate octaprenyltransferase)活性;
64、(2)编码如seq id no:43或60所示的氨基酸序列的核苷酸序列;
65、(3)如seq id no:21或53所示的核苷酸序列。
66、在某些实施方案中,所述mena基因编码如seq id no:43或60所示的氨基酸序列。
67、在某些实施方案中,所述mena基因的核苷酸序列如seq id no:21或53所示。
68、在某些实施方案中,所述ubie基因来源于类球红细菌(rhodobactersphaeroides)或大肠杆菌(escherichia coli)。
69、在某些实施方案中,所述ubie基因包含选自以下任一项的序列:
70、(1)编码甲基转移酶的核苷酸序列,所述甲基转移酶具有泛醌或萘醌生物合成c-甲基转移酶活性;
71、(2)编码如seq id no:44或46所示的氨基酸序列的核苷酸序列;
72、(3)如seq id no:23或32所示的核苷酸序列。
73、在某些实施方案中,所述ubie基因编码如seq id no:44或46所示的氨基酸序列。
74、在某些实施方案中,所述ubie基因的核苷酸序列如seq id no:23或32所示。
75、在某些实施方案中,所述dhna合成途径基因包含:menf、mend、menh、menc、mene、menb和meni基因。
76、在某些实施方案中,所述dhna合成途径基因来源于大肠杆菌(escherichia coli)或枯草芽孢杆菌(bacillus subtilis)。
77、在某些实施方案中,所述menf基因包含选自以下任一项的序列:
78、(1)编码异构酶的核苷酸序列,所述异构酶具有异分支酸合酶(isochorismatesynthase)活性;
79、(2)编码如seq id no:36或54所示的氨基酸序列的核苷酸序列;
80、(3)如seq id no:10或47所示的核苷酸序列。
81、在某些实施方案中,所述mend基因包含选自以下任一项的序列:
82、(1)编码转移酶的核苷酸序列,所述转移酶具有2-琥珀酰-5-烯醇式丙酮酸-6-羟基-3-环己烯-1-羧酸合成酶(2-succinyl-5-enolpyruvyl-6-hydroxy-3-cyclohexene-1-carboxylate synthase)活性;
83、(2)编码如seq id no:37或55所示的氨基酸序列的核苷酸序列;
84、(3)如seq id no:12或48所示的核苷酸序列。
85、在某些实施方案中,所述menh基因包含选自以下任一项的序列:
86、(1)编码裂合酶的核苷酸序列,所述裂合酶具有2-琥珀酰-6-羟基-2,4-环己烯-1-羧酸合成酶(2-succinyl-6-hydroxy-2,4-cyclohexadiene-1-carboxylate synthase)活性;
87、(2)编码如seq id no:38或56所示的氨基酸序列的核苷酸序列;
88、(3)如seq id no:13或49所示的核苷酸序列。
89、在某些实施方案中,所述menc基因包含选自以下任一项的序列:
90、(1)编码裂合酶的核苷酸序列,所述裂合酶具有o-琥珀酰苯甲酸合成酶(o-succinylbenzoate synthase)活性;
91、(2)编码如seq id no:40或58所示的氨基酸序列的核苷酸序列;
92、(3)如seq id no:16或51所示的核苷酸序列。
93、在某些实施方案中,所述mene基因包含选自以下任一项的序列:
94、(1)编码连接酶的核苷酸序列,所述连接酶具有2-琥珀酰苯甲酰辅酶a合成酶(2-succinylbenzoate--coa ligase)活性;
95、(2)编码如seq id no:41或59所示的氨基酸序列的核苷酸序列;
96、(3)如seq id no:17或52所示的核苷酸序列。
97、在某些实施方案中,所述menb基因包含选自以下任一项的序列:
98、(1)编码裂解酶的核苷酸序列,所述裂解酶具有1,4-二羟基-2-萘甲酰-辅酶a合成酶(1,4-dihydroxy-2-naphthoyl-coa synthase)活性;
99、(2)编码如seq id no:39或57所示的氨基酸序列的核苷酸序列;
100、(3)如seq id no:15或50所示的核苷酸序列。
101、在某些实施方案中,所述meni基因包含选自以下任一项的序列:
102、(1)编码水解酶的核苷酸序列,所述水解酶1,4-二羟基-2-萘甲酰-辅酶a水解酶(1,4-dihydroxy-2-naphthoyl-coa hydrolase)活性;
103、(2)编码如seq id no:42所示的氨基酸序列的核苷酸序列;
104、(3)如seq id no:19所示的核苷酸序列。
105、在某些实施方案中,所述menf基因编码如seq id no:36或54所示的氨基酸序列。
106、在某些实施方案中,所述menf基因的核苷酸序列如seq id no:10或47所示。
107、在某些实施方案中,所述mend基因编码如seq id no:37或55所示的氨基酸序列。
108、在某些实施方案中,所述mend基因的核苷酸序列如seq id no:12或48所示。
109、在某些实施方案中,所述menh基因编码如seq id no:38或56所示的氨基酸序列。
110、在某些实施方案中,所述menh基因的核苷酸序列如seq id no:13或49所示。
111、在某些实施方案中,所述menc基因编码如seq id no:40或58所示的氨基酸序列。
112、在某些实施方案中,所述menc基因的核苷酸序列如seq id no:16或51所示。
113、在某些实施方案中,所述mene基因编码如seq id no:41或59所示的氨基酸序列。
114、在某些实施方案中,所述mene基因的核苷酸序列如seq id no:17或52所示。
115、在某些实施方案中,所述menb基因编码如seq id no:39或57所示的氨基酸序列。
116、在某些实施方案中,所述menb基因的核苷酸序列如seq id no:15或50所示。
117、在某些实施方案中,所述meni基因编码如seq id no:42所示的氨基酸序列。
118、在某些实施方案中,所述meni基因的核苷酸序列如seq id no:19所示。
119、在某些实施方案中,所述改造的类球红细菌,其相较于改造前的类球红细菌,通过包含以下步骤的方法获得:
120、(1)在类球红细菌中引入第一载体,所述第一载体包含第一表达盒,所述第一表达盒从5’端至3’端依次包含以下元件:
121、i)启动子;
122、ii)heps基因;
123、iii)rbs;
124、iv)hept基因;
125、其中,所述第一表达盒的5’端连接上游同源臂,所述上游同源臂为所述类球红细菌内源ispb基因的上游多核苷酸,所述第一表达盒的3’端连接下游同源臂,所述下游同源臂为所述类球红细菌内源ispb基因的下游多核苷酸;
126、(2)在类球红细菌中引入第二载体,所述第二载体包含第二表达盒,所述第二表达盒从5’端至3’端依次包含以下元件:
127、i)启动子;
128、ii)menc基因;
129、iii)mene基因;
130、iv)rbs;
131、v)meni基因;
132、vi)rbs;
133、vii)mena基因;
134、viii)rbs
135、ix)ubie基因
136、x)终止子;和
137、(3)在类球红细菌中引入第三载体,所述第三载体包含第三表达盒,所述第三表达盒从5’端至3’端依次包含以下元件:
138、i)启动子;
139、ii)menf基因;
140、iii)rbs;
141、iv)mend基因;
142、v)menh基因;
143、vi)rbs;
144、vii)menb基因。
145、在某些实施方案中,在所述第一表达盒中,所述heps基因、所述hept基因来源于枯草芽孢杆菌(bacillus subtilis)。
146、在某些实施方案中,在所述第一表达盒中,所述heps基因、所述hept基因针对在类球红细菌中表达而被密码子优化。
147、在某些实施方案中,所述第一表达盒上游同源臂的序列如seq id no:1所示,所述第一表达盒下游同源臂的序列如seq id no:3所示,并且,在所述第一表达盒中,所述启动子的序列如seq id no:4所示,所述heps基因的序列如seq id no:5所示,所述rbs的序列如seq id no:6所示,所述hept基因的序列如seq id no:7所示。
148、在某些实施方案中,在所述第二表达盒中,所述menc基因、所述mene基因、所述meni基因、所述mena基因、所述ubie基因来源于大肠杆菌(escherichia coli)。
149、在某些实施方案中,在所述第二表达盒中,所述启动子的序列如seq id no:4所示,所述终止子的序列如seq id no:27所示,所述menc基因的序列如seq id no:16所示,所述mene基因的序列如seq id no:17所示,所述meni基因的序列如seq id no:19所示,所述mena基因的序列如seq id no:21所示,所述ubie基因的序列如seq id no:23所示,所述iv)、vi)、viii)中rbs的序列依次如seq id no:18、20、22所示。
150、在某些实施方案中,在所述第三表达盒中,所述menf基因、所述mend基因、所述menh基因、所述menb基因来源于大肠杆菌(escherichia coli)。
151、在某些实施方案中,在所述第三表达盒中,所述启动子的序列如seq id no:4所示,所述menf基因的序列如seq id no:10所示,所述mend基因的序列如seq id no:12所示,所述menh基因的序列如seq id no:13所示,所述menb基因的序列如seq id no:15所示,所述iii)、vi)中rbs的序列依次如seq id no:11、14所示。
152、在某些实施方案中,所述第二表达盒和第三表达盒的5’端连接上游同源臂,所述第二表达盒和第三表达盒的3’端连接下游同源臂。
153、在某些实施方案中,所述第一表达盒、第二表达盒和第三表达盒整合至所述改造的类球红细菌的基因组中。
154、在某些实施方案中,所述改造的类球红细菌,其相较于改造前的类球红细菌,通过包含以下步骤的方法获得:
155、(1)在类球红细菌中引入第四载体,所述第四载体包含第四表达盒,所述第四表达盒包含外源ispb基因;所述第四表达盒的5’端连接上游同源臂,所述上游同源臂为所述类球红细菌内源ispb基因的上游多核苷酸,所述第四表达盒的3’端连接下游同源臂,所述下游同源臂为所述类球红细菌内源ispb基因的下游多核苷酸;
156、(2)在类球红细菌中引入第五载体,所述第五载体包含第五表达盒,所述第五表达盒从5’端至3’端依次包含以下元件:
157、i)启动子;
158、ii)menf基因;
159、iii)rbs;
160、iv)mend基因;
161、v)menh基因;
162、vi)rbs;
163、vii)menb基因;
164、viii)menc基因;
165、ix)mene基因;
166、x)rbs;
167、xi)meni基因;
168、xii)rbs;
169、xiii)mena基因;
170、xiv)rbs;
171、xv)ubie基因;
172、xvi)终止子。
173、在某些实施方案中,在所述第四表达盒中,所述外源ispb基因来源于流感嗜血杆菌(haemophilus influenzae)。
174、在某些实施方案中,在所述第四表达盒中,所述外源ispb基因针对在类球红细菌中表达而被密码子优化。
175、在某些实施方案中,所述第四表达盒上游同源臂的序列如seq id no:1所示,所述第四表达盒下游同源臂的序列如seq id no:3所示,并且,在所述第四表达盒中,所述外源ispb基因的序列如seq id no:2所示。
176、在某些实施方案中,在所述第六表达盒中,所述menf基因、所述mend基因、所述menh基因、所述menb基因、所述menc基因、所述mene基因、所述meni基因、所述mena基因、所述ubie基因来源于大肠杆菌(escherichia coli)。
177、在某些实施方案中,在所述第五表达盒中,所述启动子的序列如seq id no:25所示,所述终止子的序列如seq id no:24所示,所述menf基因的序列如seq id no:10所示,所述mend基因的序列如seq id no:12所示,所述menh基因的序列如seq id no:13所示,所述menb基因的序列如seq id no:15所示,所述menc基因的序列如seq id no:16所示,所述mene基因的序列如seq id no:17所示,所述meni基因的序列如seq id no:19所示,所述mena基因的序列如seq id no:21所示,所述ubie基因的序列如seq id no:23所示,所述iii)、vi)、x)、xii)、xiv)中rbs的序列依次如seq id no:11、14、18、20、22所示。
178、在某些实施方案中,所述第四表达盒整合至所述改造的类球红细菌的基因组中。
179、在某些实施方案中,所述改造的类球红细菌,其相较于改造前的类球红细菌,通过包含以下步骤的方法获得:
180、(1)在类球红细菌中引入第四载体,所述第四载体包含第四表达盒,所述第四表达盒包含外源ispb基因;所述第四表达盒的5’端连接上游同源臂,所述上游同源臂为所述类球红细菌内源ispb基因的上游多核苷酸,所述第四表达盒的3’端连接下游同源臂,所述下游同源臂为所述类球红细菌内源ispb基因的下游多核苷酸;
181、(2)在类球红细菌中引入第六载体,所述第六载体包含第六表达盒,所述第五表达盒从5’端至3’端依次包含以下元件:
182、i)启动子;
183、ii)rbs;
184、iii)menf基因;
185、iv)rbs;
186、v)mend基因;
187、vi)menh基因;
188、vii)rbs;
189、viii)menb基因;
190、ix)menc基因;
191、x)mene基因;
192、xi)rbs;
193、xii)meni基因;
194、xiii)rbs;
195、xiv)mena基因;
196、xv)rbs;
197、xvi)ubie基因;
198、xvii)终止子。
199、在某些实施方案中,在所述第四表达盒中,所述外源ispb基因来源于流感嗜血杆菌(haemophilus influenzae)。
200、在某些实施方案中,在所述第四表达盒中,所述外源ispb基因针对在类球红细菌中表达而被密码子优化。
201、在某些实施方案中,所述第四表达盒上游同源臂的序列如seq id no:1所示,所述第四表达盒下游同源臂的序列如seq id no:3所示,并且,在所述第四表达盒中,所述外源ispb基因的序列如seq id no:2所示。
202、在某些实施方案中,在所述第六表达盒中,所述menf基因、所述mend基因、所述menh基因、所述menb基因、所述menc基因、所述mene基因、所述meni基因、所述mena基因、所述ubie基因来源于大肠杆菌(escherichia coli)。
203、在某些实施方案中,在所述第六表达盒中,所述启动子的序列如seq id no:8所示,所述终止子的序列如seq id no:24所示,所述menf基因的序列如seq id no:10所示,所述mend基因的序列如seq id no:12所示,所述menh基因的序列如seq id no:13所示,所述menb基因的序列如seq id no:15所示,所述menc基因的序列如seq id no:16所示,所述mene基因的序列如seq id no:17所示,所述meni基因的序列如seq id no:19所示,所述mena基因的序列如seq id no:21所示,所述ubie基因的序列如seq id no:23所示,所述ii)、iv)、vii)、xi)、xiii)、xv)中rbs的序列依次如seq id no:9、11、14、18、20、22所示。
204、在某些实施方案中,所述第四表达盒整合至所述改造的类球红细菌的基因组中。
205、在某些实施方案中,所述改造的类球红细菌,其相较于改造前的类球红细菌,通过包含以下步骤的方法获得:
206、(1)在类球红细菌中引入第一载体,所述第一载体包含第一表达盒,所述第一表达盒从5’端至3’端依次包含以下元件:
207、i)启动子;
208、ii)heps基因;
209、iii)rbs;
210、iv)hept基因;
211、其中,所述第一表达盒的5’端连接上游同源臂,所述上游同源臂为所述类球红细菌内源ispb基因的上游多核苷酸,所述第一表达盒的3’端连接下游同源臂,所述下游同源臂为所述类球红细菌内源ispb基因的下游多核苷酸;
212、(2)在类球红细菌中引入第五载体,所述第五载体包含第五表达盒,所述第五表达盒从5’端至3’端依次包含以下元件:
213、i)启动子;
214、ii)menf基因;
215、iii)rbs;
216、iv)mend基因;
217、v)menh基因;
218、vi)rbs;
219、vii)menb基因;
220、viii)menc基因;
221、ix)mene基因;
222、x)rbs;
223、xi)meni基因;
224、xii)rbs;
225、xiii)mena基因;
226、xiv)rbs;
227、xv)ubie基因;
228、xvi)终止子。
229、在某些实施方案中,在所述第一表达盒中,所述heps基因、所述hept基因来源于枯草芽孢杆菌(bacillus subtilis)。
230、在某些实施方案中,在所述第一表达盒中,所述heps基因、所述hept基因针对在类球红细菌中表达而被密码子优化。
231、在某些实施方案中,所述第一表达盒上游同源臂的序列如seq id no:1所示,所述第一表达盒下游同源臂的序列如seq id no:3所示,并且,在所述第一表达盒中,所述启动子的序列如seq id no:4所示,所述heps基因的序列如seq id no:5所示,所述rbs的序列如seq id no:6所示,所述hept基因的序列如seq id no:7所示。
232、在某些实施方案中,在所述第五表达盒中,所述menf基因、所述mend基因、所述menh基因、所述menb基因、所述menc基因、所述mene基因、所述meni基因、所述mena基因、所述ubie基因来源于大肠杆菌(escherichia coli)。
233、在某些实施方案中,在所述第五表达盒中,所述启动子的序列如seq id no:25所示,所述终止子的序列如seq id no:24所示,所述menf基因的序列如seq id no:10所示,所述mend基因的序列如seq id no:12所示,所述menh基因的序列如seq id no:13所示,所述menb基因的序列如seq id no:15所示,所述menc基因的序列如seq id no:16所示,所述mene基因的序列如seq id no:17所示,所述meni基因的序列如seq id no:19所示,所述mena基因的序列如seq id no:21所示,所述ubie基因的序列如seq id no:23所示,所述iii)、vi)、x)、xii)、xiv)中rbs的序列依次如seq id no:11、14、18、20、22所示。
234、在某些实施方案中,所述第一表达盒整合至所述改造的类球红细菌的基因组中。
235、另一方面,本发明提供了制备本发明的改造的类球红细菌的方法,其相较于改造前的类球红细菌,通过包含以下步骤的方法获得:
236、(1)抑制或删除类球红细菌的内源ispb基因,所述抑制包括降低或阻断所述内源ispb基因的功能、表达水平、活性或其组合;
237、(2)在类球红细菌中引入选自heps基因、hept基因和外源ispb基因中的一种或多种基因,所述外源ispb基因来源于流感嗜血杆菌(haemophilus influenzae);
238、(3)类球红细菌中引入dhna合成途径基因和mena基因;和
239、(4)在类球红细菌中过表达ubie基因;
240、其中,步骤(1)、(2)、(3)和(4)以任意顺序进行(例如,以任意顺序依次进行,和/或,同时进行)。
241、在某些实施方案中,所述改造前的类球红细菌为野生型类球红细菌或其突变菌株。
242、在某些实施方案中,所述改造前的类球红细菌为保藏于中国微生物菌种保藏管理委员会普通微生物中心(cgmcc),保藏编号为cgmcc no.7.275的菌株。
243、另一方面,本发明提供了本发明的改造的类球红细菌在产生甲萘醌7(mk-7)中的用途。
244、在某些实施方案中,所述改造的类球红细菌经过发酵培养产生mk-7。
245、术语定义
246、在本发明中,除非另有说明,否则本文中使用的科学和技术名词具有本领域技术人员所通常理解的含义。同时,为了更好地理解本发明,下面提供相关术语的定义和解释。
247、当本文使用术语“例如”、“如”、“诸如”、“包括”、“包含”或其变体时,这些术语将不被认为是限制性术语,而将被解释为表示“但不限于”或“不限于”。
248、除非本文另外指明或根据上下文明显矛盾,否则术语“一个”和“一种”以及“该”和类似指称物在描述本发明的上下文中(尤其在以下权利要求的上下文中)应被解释成覆盖单数和复数。
249、如本文所用,术语“基因”是指任何长度的核苷酸的聚合形式,其是核糖核苷酸或脱氧核糖核苷酸。该术语包括双链和单链dna和rna。还包括已知类型的修饰,例如甲基化、“加帽”、用类似物取代一个或多个天然存在的核苷酸。优选地,基因包含编码多肽的编码序列。“编码序列”是一种核苷酸序列,当将其置于或处于适当调节序列的控制之下时,该核苷酸序列被转录成mrna和/或翻译成多肽。所述编码序列的边界由5’-末端的翻译起始密码子和3’-末端的翻译终止密码子决定。编码序列可以包括但不限于mrna、cdna、重组核酸序列或基因组dna,而在某些情况下也可以存在内含子。
250、如本文所用,术语“内源”或“内源基因”是指生物体中存在于其天然基因组位置的基因或等位基因。术语“内源基因”可以与“天然基因”互换使用。在某些实施方案中,所述内源基因或等位基因是野生型基因或等位基因。在某些实施方案中,所述内源基因被诱变。在某些实施方案中,所述内源基因的表达、活性和/或稳定性被修饰。
251、如本文所用,术语“外源”或“外源基因”是指通过人工手段(例如基因工程)从外部引入至宿主细胞或生物体中的基因,所述外源基因可以是来源于与宿主细胞或生物体不同的物种的天然存在的基因,也可以是人工合成的dna片段。所述外源基因可以通过例如基因工程整合至宿主细胞或生物体的基因组中,也可以作为游离的dna片段存在于宿主细胞或生物体中。在某些实施方案中,所述外源基因可以改变其所引入的宿主细胞或生物体的遗传特性,赋予其新的功能或性状。
252、如本文所用,术语“转化”是将异源核酸(例如核酸构建体、载体、表达盒等)引入至宿主细胞或生物体中的过程。具体地说,“转化”是指将dna分子短暂转化至生物体中,或稳定转化或整合至生物体的基因组中或能够自主复制的过程。
253、如本文所用,术语“转化的/重组”是指已经引入了异源核酸分子的宿主生物体,例如细菌、真菌或植物。该核酸分子能够被稳定地整合进入该宿主的基因组中或者该核酸分子也能作为染色体外的分子而存在。这样的染色体外的分子能够自动复制。转化的细胞、组织或者植物应理解为不仅包含转化过程的最后产物,还包含其转基因的子代。“非转化的”或“非重组”宿主是指野生型生物体或自然发生的生物体,例如细菌、真菌或植物。
254、如本文中所使用的,术语“载体(vector)”是指,可将多聚核苷酸插入其中的一种核酸运载工具。当载体能使插入的多核苷酸编码的蛋白获得表达时,载体称为表达载体。载体可以通过转化,转导或者转染导入宿主细胞,使其携带的遗传物质元件在宿主细胞中获得表达。载体是本领域技术人员公知的,包括但不限于:质粒;噬菌粒;柯斯质粒;人工染色体,例如酵母人工染色体(yac)、细菌人工染色体(bac)或p1来源的人工染色体(pac);噬菌体如λ噬菌体或m13噬菌体及动物病毒等。可用作载体的动物病毒包括但不限于,逆转录酶病毒(包括慢病毒)、腺病毒、腺相关病毒、疱疹病毒(如单纯疱疹病毒)、痘病毒、杆状病毒、乳头瘤病毒、乳头多瘤空泡病毒(如sv40)。一种载体可以含有多种控制表达的元件,包括但不限于,启动子序列、转录起始序列、增强子序列、选择元件及报告基因。另外,载体还可含有复制起始位点。
255、如本文中所使用的,术语“宿主细胞”是指,可用于导入载体的细胞,其包括但不限于,如大肠杆菌或枯草菌等的原核细胞,如酵母细胞或曲霉菌等的真菌细胞,如s2果蝇细胞或sf9等的昆虫细胞,或者如纤维原细胞,cho细胞,cos细胞,nso细胞,hela细胞,bhk细胞,hek 293细胞或人细胞等的动物细胞。宿主细胞可以包括单个细胞或细胞群体。
256、本发明中,如果没有特别说明,所述“第一”(例如第一表达盒)、“第二”(例如第二表达盒)、“第三”(例如第三表达盒)、“第四”(例如第四表达盒)、“第五”(例如第五表达盒)、“第六”(例如第六表达盒)主要是为了指代上的区分,并不具有典型的次序上的含义。
257、发明的有益效果
258、本发明提供了一种产生mk-7的改造的类球红细菌,并基于所述改造的类球红细菌进一步提供了其在产生mk-7中的用途。本发明提供的改造的类球红细菌的构建方法简单,改造整合进基因组,不依赖于基于质粒的表达系统,消除了对抗生素选择标记的需求,增强了菌株对大规模工业应用的适用性,显著降低了长期发酵过程中遗传不稳定和质粒丢失的风险,使菌株更符合生物技术产品的监管和安全要求。此外,本发明的改造的类球红细菌基本不产生mk-8、dmk-8、dmk-7、dmk-6等不容易去除的杂质,并且本发明提供的改造的类球红细菌单克隆的发酵产物中mk-7的收率高,因此本发明的改造的类球红细菌特别适合后续大规模的商业化生产,具有重要的价值。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com