
一种裂解性多糖单加氧酶突变体及其应用
本发明涉及一种裂解性多糖单加氧酶突变体及其应用,属于酶工程和。
背景技术:
1、纤维素是一种可再生的非化石碳源,丰富存在于地球上,是木质纤维素生物质的主要成分之一,通常存在于植物细胞壁中。作为一种由β-糖苷键连接的d-葡萄糖单元构成的线性聚合物,纤维素具有重要的生物学意义。然而,纤维素却是所有植物细胞壁多糖中最难降解的,这使得其降解过程成为一项极具挑战性的任务。纤维素转化为单糖的过程,尤其是在生物乙醇生产中的应用,引起了广泛关注,因为它为应对全球能源需求的增长提供了一种环保且可持续的解决方案,而这一需求则是由工业发展和城市化进程所推动的。
2、纤维素的酶解水解过程涉及三种关键的纤维素酶:内切葡萄糖苷酶、纤维二糖水解酶/外切葡萄糖苷酶和β-葡萄糖苷酶,这三类酶协同作用,共同分解纤维素。内切葡萄糖苷酶通过随机切割纤维素的内部糖苷键,使聚合物长度迅速缩短;外切葡萄糖苷酶则通过水解纤维素链的还原端或非还原端,释放出还原糖。纤维二糖和寡糖等中间产物会进一步被β-葡萄糖苷酶转化为葡萄糖。然而,由于纤维素结构中的结晶区域非常坚固,普通的纤维素酶对其作用效果有限,导致酶解过程受阻。
3、自2010年裂解性多糖单加氧酶(lytic polysaccharide monooxygenases,lpmos)被发现以来,这一限制得到了有效改善,特别是aa9家族的lpmos。aa9 lpmos并不直接水解多糖,而是通过氧化性裂解纤维素中的抗性区域,在其结晶表面形成孔隙,从而破坏纤维素的结晶结构。该结构变化使得其他糖苷水解酶(如内切葡聚糖酶和外切葡聚糖酶)更容易接触到多糖,从而与纤维素酶协同作用,实现更高效的纤维素水解。
4、在工业应用中,酶的稳定性和催化活性是最为关键的酶学参数,它们直接决定了工艺的经济可行性。目前,aa9 lpmos大多来源于野生型酶,这些酶的热稳定性和催化活性尚未充分发挥其潜力,因此,为了满足工业应用的需求,通常需要通过蛋白质工程等手段对其进行优化。基于计算机辅助设计的理性设计方法已被广泛应用,以识别关键氨基酸并进行定向进化,从而提高aa9 lpmos的热稳定性和催化活性。
5、通过对aa9 lpmos进行改造,提升其热稳定性和催化活性,不仅能够增强与纤维素酶的协同水解作用,还能使纤维素酶在降解木质纤维素时更加高效,并降低酶的使用量,从而降低成本,进一步提高工业应用中的经济效益。因此,迫切需要开发具有更高活性和更好热稳定性的裂解性多糖单加氧酶突变体,以增强酶活性和协同作用,进而提高对不同纤维素底物的酶解率。
技术实现思路
1、为解决裂解性多糖单加氧酶酶活低、协同纤维素酶酶解率低的问题,本发明提供了一种裂解性多糖单加氧酶突变体,与野生型裂解性多糖单加氧酶相比,突变体酶活提高;在协同酶解磷酸肿胀纤维素、微晶纤维素和预处理的甘蔗渣时,酶解率提高。
2、本发明的第一个目的是提供一种裂解性多糖单加氧酶突变体,其特征在于,所述裂解性多糖单加氧酶突变体是在氨基酸序列如seq id no.1所示的基础上,第32位、第56位、第60位、第63位、第72位、第79位、第80位、第84位、第90位、第98位、第104位、第107位、第120位、第121位、第128位、第137位、第143位、第154位、第160位、第170位或第175位具有一个或多个氨基酸突变。
3、在一种实施方式中,所述裂解性多糖单加氧酶突变体以来源于嗜热毁丝霉菌的裂解性多糖单加氧酶
mtlpmo9v(genbank:aeo55082.1)。
4、在一种实施方式中,裂解性多糖单加氧酶
mtlpmo9v的氨基酸序列如seq id no.7所示,其中,前21个氨基酸为信号肽,第22位的氨基酸开始至结束为从成熟酶序列。
5、在一种实施方式中,以裂解性多糖单加氧酶
mtlpmo9v的氨基酸的第22位作为裂解性多糖单加氧酶野生型(wt)的第一个氨基酸,其氨基酸序列如seq id no.1所示,核苷酸序列如seq id no.2所示。
6、在一种实施方式中,所述裂解性多糖单加氧酶突变体对应于seq id no.1所示氨基酸序列,
7、所述第32位的甘氨酸是突变为丝氨酸,命名为g32s;
8、所述第56位的苏氨酸是突变为半胱氨酸,命名为t56c;
9、所述第60位的天冬氨酸是突变为酪氨酸,命名为d60y;
10、所述第63位的天冬氨酸是突变为亮氨酸,命名为d63l;
11、所述第72位的脯氨酸是突变为缬氨酸,命名为p72v;
12、所述第79位的苏氨酸是突变为缬氨酸,命名为t79v;
13、所述第80位的丝氨酸是突变为异亮氨酸,命名为s80i;
14、所述第84位的丝氨酸是突变为缬氨酸,命名为s84v;
15、所述第90位的缬氨酸是突变为半胱氨酸,命名为v90c;
16、所述第98位的丙氨酸是突变为脯氨酸,命名为a98p;
17、所述第104位的天冬氨酸是突变为蛋氨酸,命名为d104m;
18、所述第107位的脯氨酸是突变为亮氨酸,命名为p107l;
19、所述第120位的谷氨酰胺是突变为酪氨酸,命名为q120y;
20、所述第121位的精氨酸是突变为缬氨酸,命名为r121v;
21、所述第128位的天冬氨酸是突变为脯氨酸,命名为d128p;
22、所述第137位的谷氨酰胺是突变为异亮氨酸,命名为q137i;
23、所述第143位的脯氨酸是突变为天冬酰胺或丙氨酸,分别命名为p143n和p143a;
24、所述第154位的丙氨酸是突变为脯氨酸,命名为a154p;
25、所述第160位的天冬氨酸是突变为甘氨酸,命名为d160g;
26、所述第170位的丙氨酸是突变为半胱氨酸,命名为a170c;
27、所述第175位的丙氨酸是突变为半胱氨酸,命名为a175c。
28、在一种实施方式中,所述裂解性多糖单加氧酶突变体,同时存在如下突变:
29、所述第170位的丙氨酸是突变为半胱氨酸、所述第175位的丙氨酸是突变为半胱氨酸,命名为a170c/a175c;
30、优选地,所述第170位的丙氨酸是突变为半胱氨酸、所述第175位的丙氨酸是突变为半胱氨酸、所述第32位的甘氨酸是突变为丝氨酸,命名为a170c/a175c/g32s;
31、优选地,所述第170位的丙氨酸是突变为半胱氨酸、所述第175位的丙氨酸是突变为半胱氨酸、所述第107位的脯氨酸是突变为亮氨酸,命名为a170c/a175c/p107l;
32、优选地,所述第170位的丙氨酸是突变为半胱氨酸、所述第175位的丙氨酸是突变为半胱氨酸、所述第120位的谷氨酰胺是突变为酪氨酸,命名为a170c/a175c/q120y;
33、优选地,所述第170位的丙氨酸是突变为半胱氨酸、所述第175位的丙氨酸是突变为半胱氨酸、所述第137位的谷氨酰胺是突变为异亮氨酸,命名为a170c/a175c/q137i;
34、优选地,所述第170位的丙氨酸是突变为半胱氨酸、所述第175位的丙氨酸是突变为半胱氨酸、所述第154位的丙氨酸是突变为脯氨酸,命名为a170c/a175c/a154p;
35、优选地,所述第170位的丙氨酸是突变为半胱氨酸、所述第175位的丙氨酸是突变为半胱氨酸、所述第160位的天冬氨酸是突变为甘氨酸,命名为a170c/a175c/d160g。
36、在一种实施方式中,突变体a170c/a175c/q120y的氨基酸序列如seq id no.3所示;核苷酸序列如seq id no.4所示。
37、本发明的第二个目的是提供任一上述的裂解性多糖单加氧酶突变体的多核苷酸。
38、本发明的第三个目的是提供上述的多核苷酸的载体。
39、在一种实施方式中,所述载体包括ppic系列载体、ppicz系列载体、ppiczα、pet系列载体;
40、可选地,ppic系列载体包括ppic9、ppic9k和ppic3.5k等;ppicz系列载体包括ppicza、ppiczb、ppiczc等;ppiczα系列载体包括ppiczαa、ppiczαb、ppiczαc等;pet系列载体包括pet-22b。
41、本发明的第四个目的是提供表达任一上述裂解性多糖单加氧酶突变体的细胞;
42、在一种实施方式中,所述细胞包括毕赤酵母、大肠杆菌、酿酒酵母和丝状真菌;
43、可选地,丝状真菌包括黑曲霉、米曲霉等。
44、本发明的第五个目的是提供任一上述的裂解性多糖单加氧酶突变体或上述的多核苷酸或上述的多核苷酸的载体或上述的细胞在水解纤维素中的应用。
45、本发明的第六个目的是提供一种水解纤维素的方法,使用任一上述的裂解性多糖单加氧酶突变体和纤维素酶协同酶解;
46、可选地,所述纤维素酶包括嗜热内切葡聚糖酶或纤维素酶。
47、在一种实施方式中,所述嗜热内切葡聚糖酶为
dtcela,氨基酸序列如seq id no.5所示。
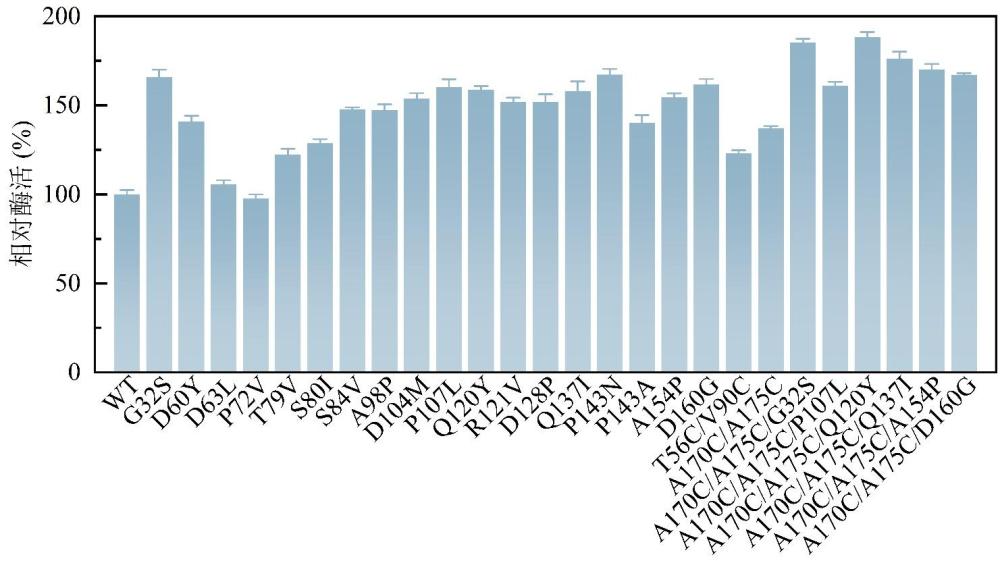
48、在一种实施方式中,所述纤维素酶包括商用的纤维素酶,例如,celluclast或ctec2。
49、在一种实施方式中,所述纤维素包括预处理蔗渣、磷酸肿胀纤维素、微晶纤维素。
50、在一种实施方式中,预处理蔗渣为碱处理蔗渣和酸处理蔗渣,制备方法包括:
51、将烘干的甘蔗、甘油、naoh(或硫酸)混合,加热搅拌,过滤洗涤,制备得到碱处理蔗渣(酸处理蔗渣)。
52、在一种实施方式中,裂解性多糖单加氧酶突变体的添加量为0.2~2mg/g干基底物;纤维素酶(裂解性多糖单加氧酶和商用纤维素酶总量)的添加量为4~10 mg/g干基底物。
53、在一种实施方式中,纤维素的添加量为0.5~2% w/v。
54、在一种实施方式中,酶解条件是45~50℃酶解12~96 h。
55、在一种实施方式中,以2%w/v 的mcc(或酸催化甘油预处理底物)作为底物时,1 mm没食子酸(当底物为mcc时不添加),裂解性多糖单加氧酶突变体添加量是0.4 mg/g,纤维素酶为9.6 mg/g干基质酶混合物的celluclast 1.5l,反应96 h,葡萄糖产率达到77%(底物为酸催化甘油预处理底物时,葡萄糖产率达到74%);
56、以2%w/v的mcc(或酸催化甘油预处理底物)作为底物时,1 mm没食子酸(当底物为mcc时不添加),裂解性多糖单加氧酶突变体添加量是0.4 mg/g,纤维素酶为4.27mg/g干基质酶混合物的ctec2,反应72 h,葡萄糖产率达到81%(底物为酸催化甘油预处理底物时,葡萄糖产率达到74%)。
57、在一种实施方式中,以2%w/v 的碱催化甘油预处理底物作为底物时,1 mm没食子酸,裂解性多糖单加氧酶突变体添加量是0.2 mg/g,纤维素酶为9.8 mg/g干基质酶混合物的celluclast 1.5l,反应96 h,葡萄糖产率达到86%;
58、以2%w/v的碱催化甘油预处理底物作为底物时,1 mm没食子酸,裂解性多糖单加氧酶突变体添加量是0.2 mg/g,纤维素酶为4.47 mg/g干基质酶混合物的ctec2,反应72 h,葡萄糖产率达到77%。
59、有益效果
60、本发明以裂解性多糖单加氧酶
mtlpmo9v为野生型,通过对裂解性多糖单加氧酶
mtlpmo9v的不同位点进行点突变,突变后酶活提高了88%以上,并提高了裂解性多糖单加氧酶与纤维素酶协同酶解不同纤维素底物的效果。
61、突变体a170c/a175c/q120y的效果最好,具体如下:
62、(1)本发明的裂解性多糖单加氧酶突变体a170c/a175c/q120y(m3)在标准条件下酶活较野生型提高88%,酶活达到63.4u/g;
63、(2)本发明的裂解性多糖单加氧酶突变体a170c/a175c/q120y(m3)在协同嗜热内切葡聚糖酶
dtcela解磷酸肿胀纤维素和微晶纤维素时,与野生型相比,具有更好的协同效果,最高协同度可达155%和133%(野生型分别为127%和120%);
64、(3)本发明的裂解性多糖单加氧酶突变体a170c/a175c/q120y(m3)协同纤维素酶celluclast1.5l水解微晶纤维素和酸/碱催化下甘油预处理甘蔗渣底物时表现出更高的协同效果,96h葡萄糖产率从58%、56%和61%分别提高至77%、74%和86%(野生型为70%、66%和78%);协同ctec 2水解微晶纤维素和酸碱催化下甘油预处理甘蔗渣底物时同样表现出更好的协同效果,72h葡萄糖产率从60%、61%和66%分别提高至81%、74%和86%(野生型为75%、65%和77%)。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com