
ERF8基因在延迟植物开花中的应用
本发明属于分子生物学与植物遗传育种。具体涉及乙烯响应因子erf8基因在延迟植物开花、调控开花时间中的应用。
背景技术:
1、开花时间是作物生产中至关重要的农艺性状,开花时间的精准调控在农业与园艺领域具有重大经济价值:
2、(1)延长营养生长期、提高生物量:推迟开花可延长营养生长阶段,增加莲座叶数目与生物量积累。例如,毛竹pesvp基因转化拟南芥后表现明显晚花、莲座叶数目增加;已有专利明确利用延迟开花“持续诱导农业植物营养生长,从而增加有用部位产量”。
3、(2)躲避逆境胁迫:晚花性状可帮助植物规避花期遭遇的干旱、高温等不利环境,提高稳产性。
4、(3)观赏植物花期延长:调控开花时间的转录因子可用于培育花期更长的观赏植物,提升观赏与经济价值。
5、(4)育种周期调控:通过基因工程精准调控开花时间,可缩短传统育种周期,满足不同栽培环境需求。
6、开花是植物从营养生长向生殖生长转变的关键过程。开花时间受外源信号(光周期、温度)与内源信号(年龄、激素水平)整合调控,已阐明的主要通路包括:光周期途径(co/ft)、赤霉素(ga)途径(della抑制lfy/soc1)、乙烯途径(ein3/eil1→erf1抑制ft)、自主途径与春化途径(flc)。尽管花期调控已有深入研究,仍有大量调控因子及机制未被解析。值得注意的是,近年研究明确指出,利用组织特异启动子与条件调控来实现开花时间的精准调控,是避免组成型表达多效性副作用、优化产量性状的重要策略。
7、现有开花时间调控技术的不足:
8、(1)调控手段单一:现有技术多通过组成型启动子(如35s)驱动基因过表达,缺乏时空特异性,可能带来非靶向副作用;
9、(2)调控方向单一:多数基因专利集中于促进开花或延迟开花的单向调控,能实现精准、可控晚花调控的基因资源仍有限;
10、(3)遗传资源有限:现有开花调控基因集中在少数已知通路(ft、soc1、svp等),新调控基因与机制的发现仍是迫切需求;
11、(4)启动子层面的调控未充分开发:现有技术多关注编码区操作,对“特定启动子驱动表达导致开花时间改变”的研究较少;启动子层面的调控有望提供更精细、更具组织特异性的调控方式。
12、erf8(ethylene response factor 8),基因座at1g53170(位于1号染色体,单外显子),编码含单个ap2结构域的转录因子(185氨基酸),属于erf/ap2超家族erf亚家族b-1,具有转录抑制因子活性。
13、(1)aba信号与免疫的双重功能:erf8是aba诱导的转录抑制子,参与aba信号传导、正调控植物免疫,且是免疫相关激酶mpk4/mpk11的直接底物。
14、(2)叶片衰老调控:erf4与erf8均为叶片衰老的正调控因子。
15、(3)光诱导的花青素合成:另有研究提示erf4/erf8参与光照诱导的花青素合成调控。
16、迄今为止,所有公开文献均未报道erf8参与开花时间调控;erf8基因的官方功能注释仅涉及“乙烯介导的信号通路、转录调控”,与开花时间调控无任何关联。
技术实现思路
1、本发明所要解决的技术问题为:如何提供一种调控植物开花时间的方法。
2、本发明的技术方案为:一种调控植物开花时间或/和莲座叶数目的方法,利用12s启动子驱动erf8基因在植物中表达,使植物的开花时间晚于相应野生型植物或/和使植物的莲座叶数目增加。
3、进一步地,所述erf8基因为拟南芥erf8基因,其蛋白由185个氨基酸组成,氨基酸序列如seq id no.2所示。
4、进一步地,所述erf8基因的核苷酸序列如seq id no.1所示。
5、进一步地,所述12s启动子的核苷酸序列如seq id no.3所示。
6、进一步地,所述植物为拟南芥或其他植物,比如:油菜、水稻、玉米、小麦、番茄或蔬菜、观赏植物。
7、与现有技术相比,本发明具有以下有益效果:
8、(1)显著且稳定的晚花表型:两个独立的12s-erf8转基因株系(#1、#2)在独立批次实验中莲座叶数目稳定增加:
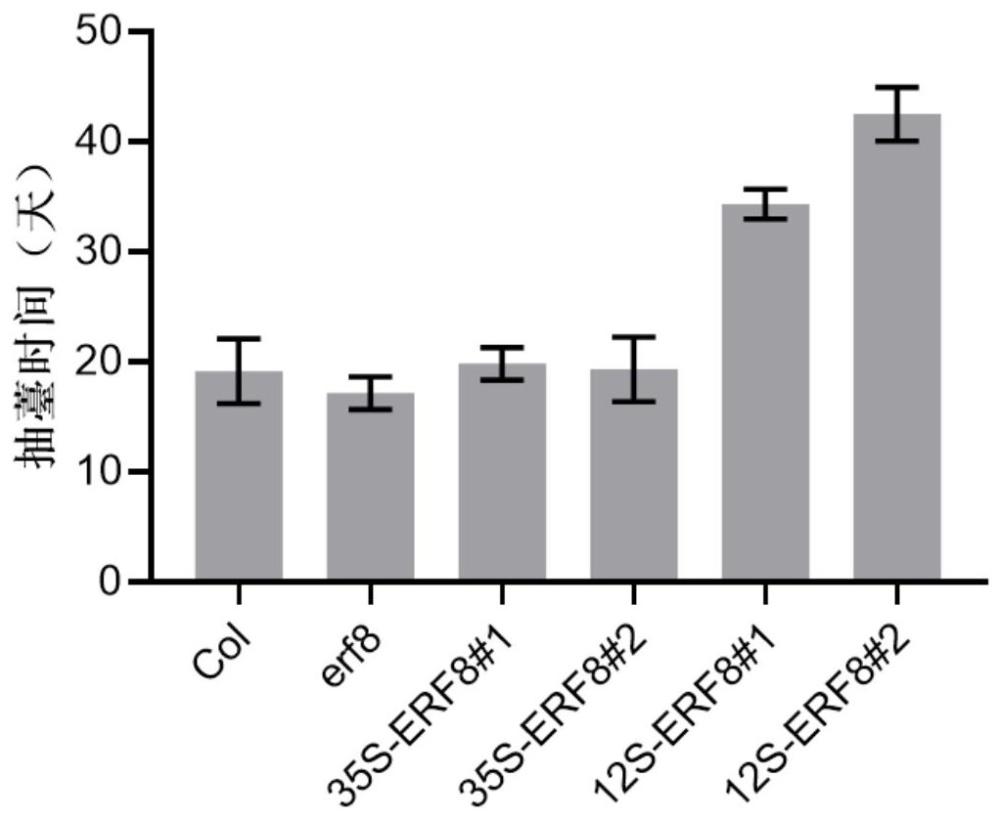
9、12s-erf8#1:从播种到抽薹耗时34.33 ± 1.37天(较col-0 19.17 ± 2.93天延迟15.17天,p < 0.001),抽薹时莲座叶数目为21.80 ± 1.92片(较col-0 14.80 ± 1.30片增加7.00片,p < 0.001);
10、12s-erf8#2:从播种到抽薹耗时42.50 ± 2.43天(较col-0延迟23.33天,p<0.001),抽薹时莲座叶数目为26.80 ± 1.48片(较col-0增加12.00片,p< 0.001)。
11、(2)意料不到的技术效果:本发明通过六种材料的系统对比证明——启动子区t-dna插入导致的erf8超表达(erf8插入株系,表达量12.6×)不表现晚花(抽薹天数17.17天vs col-0 19.17天,p=0.166;莲座叶12.80片 vs col-0 14.80片,p=0.042,反而略减);35s组成型启动子驱动的erf8过表达(35s-erf8#1、#2,表达量35.8×/52.6×)不表现晚花(抽薹天数与col-0无显著差异,p=0.629/0.924;莲座与col-0无显著差异,p=0.29/0.11);12s启动子驱动的erf8过表达(12s-erf8#1、#2,表达量142.6×/91.9×)显著晚花(p<0.001)。
12、三种erf8超表达方式中,仅12s启动子驱动表达产生晚花。若晚花表型是“erf8超表达”的必然结果,则erf8株系(12.6×)与35s-erf8株系(35.8×/52.6×,其中#2表达量已接近12s-erf8#2的60%)均应当表现晚花;事实并非如此。而且12s-erf8#2(91.9×)的表达量低于12s-erf8#1(142.6×),晚花表型反而更强,进一步排除“剂量效应”假说。这种“特定启动子(12s)→特定基因→特定表型”的关联,是本领域技术人员依据现有技术无法预期的,构成突出的实质性特点与“意料不到的技术效果”。
13、(3)属于选择发明:本发明从erf8基因众多可能的表达/调控方式中,选择了“12s启动子驱动表达”这一特定方式,并发现其独特的、有益的晚花效果;该选择及其效果在现有技术中没有任何启示,因而具备创造性。
14、(4)应用价值:可应用于作物生育期调控(延长营养生长期、提高生物量)、躲避花期逆境(提高稳产性)、观赏植物花期延长(提升经济价值)及分子育种(提供新的晚花基因资源与工具)。
1.一种调控植物开花时间或/和莲座叶数目的方法,其特征在于,利用12s启动子驱动erf8基因在植物中表达,使植物的开花时间晚于相应野生型植物或/和使植物的莲座叶数目增加。
2.根据权利要求1所述的方法,其特征在于,所述erf8基因为拟南芥erf8基因,其蛋白由185个氨基酸组成,氨基酸序列如seq id no.2所示。
3.根据权利要求2所述的方法,其特征在于,所述erf8基因的核苷酸序列如seq idno.1所示。
4.根据权利要求1所述的方法,其特征在于,所述12s启动子的核苷酸序列如seq idno.3所示。
5.根据权利要求1-4任一项所述的方法,其特征在于,所述植物为拟南芥。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com