
Sr62蛋白及其编码基因在抗麦瘟病中的应用
本发明涉及植物分子育种、植物免疫和植物病害检测,尤其涉及sr62蛋白及其编码基因在抗麦瘟病中的应用。
背景技术:
1、麦瘟病是由小麦致病型稻瘟菌引起的重要小麦病害,可造成穗部枯白、籽粒皱缩和产量损失。随着病原菌扩散和气候条件变化,麦瘟病对小麦生产的潜在威胁持续增加。培育和利用抗病品种是控制麦瘟病最经济、环境友好的策略之一,但抗病基因资源有限、病原菌小种分化快以及抗病性易丧失等问题,仍严重制约麦瘟病防控。
2、植物细胞内免疫受体能够识别病原菌分泌的无毒效应蛋白并启动效应子触发免疫。串联激酶蛋白是近年来在禾本科植物中发现的一类重要免疫受体,通常含有两个串联激酶结构域。小麦sr62最初作为抗秆锈病基因被克隆,其编码蛋白又称wtk5,可通过识别秆锈菌效应蛋白avrsr62并激活非典型nlr蛋白sr62nlr或wtn1而触发免疫反应。wtn1和sr62nlr具有较高的序列相似性,可作为sr62下游的执行型免疫蛋白。
3、pwt4是麦瘟菌的重要无毒效应蛋白。现有研究表明,小麦串联激酶rwt4或wtk3可识别pwt4并通过wtn1诱导免疫反应。
技术实现思路
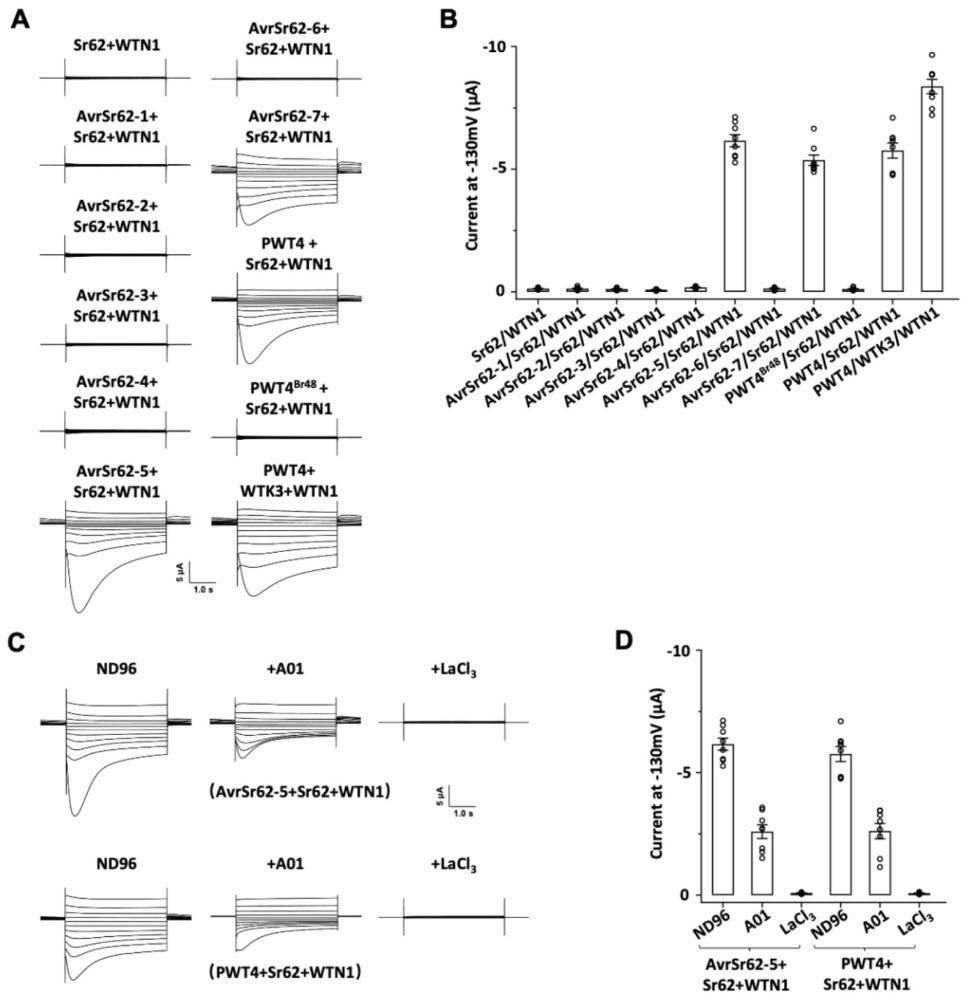
1、本发明首次研究发现,小麦串联激酶sr62不仅能够识别秆锈菌效应蛋白,还能够直接识别麦瘟菌效应蛋白pwt4并激活wtn1依赖性离子通道活性,从而引发植物免疫反应,用于提高植物对麦瘟病抗性。基于此,本发明提出如下技术方案。
2、第一方面,本发明提供了sr62蛋白或其编码基因、或含sr62蛋白或其编码基因的生物材料在制备用于识别麦瘟菌pwt4并诱导植物免疫反应的产品中的应用。
3、在一些实施方案中,sr62蛋白识别麦瘟菌pwt4后激活nlr执行蛋白,进而诱导植物免疫反应。
4、在一些实施方案中,sr62蛋白识别麦瘟菌pwt4后激活nlr执行蛋白,从而诱导离子通道活性和/或ca2+相关信号和/或过敏性细胞死亡,进而诱导植物免疫反应。
5、在一些实施方案中,所述nlr执行蛋白包括wtn1或sr62nlr或其功能同源物。
6、在一些实施方案中,所述sr62蛋白的氨基酸序列为以下任意一种:
7、(1)seq id no.1所示;
8、(2)在(1)所示的氨基酸序列基础上经取代、缺失或添加至少一个氨基酸残基获得的与(1)功能相同的氨基酸序列;
9、(3)与(1)或(2)所示氨基酸序列至少有90%以上(例如91%以上、92%以上、93%以上、94%以上、95%以上、96%以上、97%以上、98%以上或99%以上)同源性的氨基酸序列。
10、seq id no.1:
11、mdgyeferaeidalervvrdprekpislsfwllrritndfsnaseigrggfsnvylgvlpsglriavkklyqltalanefedevlttmrvahknivrligycrhtqsevfelkgesifaqvrerlicteyvpngtldghitdkfhggldwdqryqvlkgichglhylhdeirvihrdiktenillddngvpkvfdfgfskclpdgeslikdeatqgtlgylapesvdkqeysfksdiysfgvviiqlltgswisknrnvelelkelrkrlvregafpswenkyhqvrtcleivyncmdidpdkrptaleiiqrldetesanysvssghatplwqsgdeesdsaevdafepertpskdilsddeepasadangetstqkhnmpdlvskqsvsaelssldflekitdgfsyeqilgkesldadvhkaflyegsisgpakvvvkrligvaipvakfkrdaeqlmsldhknivkllgychdesrghklvqfkakppqdfkgaeqllcyeymhngslreyltgqgsrevdwhmcyklikgtceglrylhegcgdrpilhlnlnpsnilldennipritgfdfskligekntksvvlkkngplgylppdflyskgtdlkylptvdiyslgliileiatrqeikgdhgiiirtvetnwrqdtqiatlygsledklreqvkmcidigldcvksnpkkrptagaimlwldkgskpgvarpplrdnvthaddhiqekekqtplrrffrrk
12、在一些实施方案中,所述编码基因的核苷酸序列为以下任意一种:
13、(1)seq id no.2所示;
14、(2)在(1)所示的核苷酸序列基础上经取代、缺失或添加至少一个核苷酸获得的与(1)功能相同的核苷酸序列;
15、(3)与(1)或(2)所示核苷酸序列至少有90%以上(例如91%以上、92%以上、93%以上、94%以上、95%以上、96%以上、97%以上、98%以上或99%以上)同源性的核苷酸序列。
16、seq id no.2:
17、atggacggatacgagttcgagagggcggagatagatgcactggagcgcgtcgtacgggatccaagagaaaagccaataagcctgtcgttttggcttctcaggcgcataacgaatgatttctctaacgcatctgaaattggtcgaggtggattttcgaacgtttacctgggggtgcttccaagtgggttgcgtattgctgtcaaaaagctttaccaacttactgcattggctaatgaatttgaagatgaagttcttaccacaatgagggttgctcacaaaaacatagtgcgactcataggctactgtcgtcacacgcaatctgaagtcttcgaattaaaaggagaatctattttcgcacaggtcagagaaaggttgatctgtacagagtatgtgcctaatggaactcttgatggacatatcactgataagtttcatggaggacttgattgggaccagcgttatcaagttctcaaaggaatttgtcacggtttgcattatctgcacgatgaaatacgcgttatccacagagatatcaaaacagaaaatatattgctagatgataacggcgtgccaaaagtttttgactttggtttttcgaagtgccttcctgatggagaatctttaattaaagatgaagcaacccagggaaccctagggtatttggcgccggagtcagttgataagcaagaatattcctttaagtccgacatatacagctttggtgttgtgatcatacaattattgactggatcgtggatcagtaagaaccgaaatgttgagctagaacttaaggagttgagaaaaaggttggtaagagaaggagcatttccatcatgggaaaacaaataccaccaagttagaacatgtctggagattgtgtataactgcatggacatcgacccagataaaaggccgactgcattggaaattatccaacggcttgatgaaaccgaaagcgcgaactattctgttagcagtggccatgcaacaccactttggcagtcaggagatgaagaatccgactcagcggaagtggatgcttttgagccagagagaacaccatcaaaagacattctttcagatgatgaggaacccgcatcagcagacgcaaatggagaaacgagcacacaaaaacataatatgcctgatcttgtaagtaaacagtcagtgtcggcggaactgtcctcgctagatttccttgagaaaatcacagatggtttttcatacgagcaaatactcgggaaggaaagtctggacgcagatgttcataaagcatttctttatgagggcagcatttcaggtccagcaaaggtagttgtgaagaggttaattggagtagcaattccagttgcgaagtttaagagggatgcagaacagctgatgagcctggatcacaagaatatagtaaagctccttggctactgccacgacgaatctagagggcataagctggtacagtttaaagcaaaaccaccgcaagattttaaaggagccgagcaacttctctgctatgaatatatgcacaatggaagcctccgtgagtatcttactggacaaggatctcgtgaagttgattggcacatgtgctacaaattgatcaaagggacctgcgaaggtttacgctacctccatgagggttgtggagatcgtccaattcttcatttgaatctaaacccgtcaaatatactgctggacgaaaacaacataccacgcatcacgggttttgatttttcgaagctcattggtgaaaagaacacaaaatccgtggttcttaagaagaatggaccactaggttacctgccaccggacttcctgtactcaaagggtactgacctcaagtatctacctacggtggacatatacagcttgggtcttataattttagagattgcaacacgtcaagagatcaagggagaccatggaataattattaggactgtcgagacaaactggaggcaagatacacaaatagcaacactgtatggttcactagaagataaattacgggagcaagtaaaaatgtgcattgacattggcctagactgtgtcaagtcaaaccctaaaaagagacctacagctggggccatcatgctctggcttgacaaagggagcaaaccgggagttgccagacctccactccgcgataatgtcacccatgcagatgatcacatccaagaaaaggagaagcagacgccattgaggagatttttcagaagaaagtaa
18、所述生物材料包括重组dna、表达盒、转座子、质粒载体、病毒载体、工程菌、植物细胞或组织。
19、在一些实施方案中,所述产品选自以下任意一种:表达载体、植物细胞或组织、检测试剂或试剂盒、麦瘟菌pwt4型效应蛋白检测模型。
20、第二方面,本发明提供了sr62蛋白或其编码基因、或含sr62蛋白或其编码基因的生物材料在以下至少一方面中的应用:
21、(1)制备抗麦瘟菌或抗麦瘟病转基因植物;
22、(2)提高植物对麦瘟菌或麦瘟病抗性或麦瘟菌免疫识别能力;
23、(3)制备用于提高植物对麦瘟菌抗性或麦瘟病抗性或麦瘟菌免疫识别能力的产品。
24、在一些实施方案中,通过向植物中导入sr62蛋白或其编码基因、或含sr62蛋白或其编码基因的生物材料,使得植物表达或过表达sr62蛋白,以得到抗麦瘟菌转基因植物、或提高植物对麦瘟菌抗性或麦瘟病抗性或麦瘟菌免疫识别能力。
25、在一些实施方案中,通过向植物中导入sr62蛋白或其编码基因、或含sr62蛋白或其编码基因的生物材料,并使sr62与nlr执行蛋白在植物中共同表达。
26、当植物材料接触pwt4时,sr62识别pwt4并激活下游nlr执行蛋白,从而诱导离子通道活性、ca2+相关信号或过敏性细胞死亡,以提高植物对麦瘟菌抗性或麦瘟病抗性或提高植物对麦瘟菌的免疫识别能力。
27、在一些实施方案中,植物中的sr62蛋白识别麦瘟菌pwt4后激活nlr执行蛋白,从而诱导离子通道活性和/或ca2+相关信号和/或过敏性细胞死亡,进而提高植物对麦瘟菌抗性或麦瘟病抗性或麦瘟菌免疫识别能力。
28、在一些实施方案中,提高植物对麦瘟菌抗性或麦瘟菌免疫识别能力为提高植物对表达pwt4的麦瘟菌抗性或表达pwt4的麦瘟菌免疫识别能力。
29、在一些实施方案中,所述产品选自以下任意一种:表达载体、植物细胞或组织、检测试剂或试剂盒、麦瘟菌pwt4型效应蛋白检测模型。
30、第三方面,本发明提供了sr62蛋白或其编码基因、或含sr62蛋白或其编码基因的生物材料在以下至少一方面中的应用:
31、(1)筛选pwt4型效应蛋白;
32、(2)制备麦瘟菌pwt4型效应蛋白检测模型。
33、在一些实施方案中,将sr62蛋白或其编码基因以及nlr执行蛋白或其编码基因共表达,得到麦瘟菌pwt4型效应蛋白检测模型。
34、在一些实施方案中,将候选的pwt4型效应蛋白或其编码核酸在所述检测模型中与sr62蛋白或其编码基因以及nlr执行蛋白或其编码基因共表达,以筛选pwt4型效应蛋白。
35、在一些实施方案中,所述共表达存在的体系为异源表达体系。
36、优选地,所述异源表达体系选自非洲爪蟾卵母细胞、本氏烟草叶片或小麦原生质体。
37、在一些实施方案中,所述共表达存在的体系也可为小麦体系。
38、在一些实施方案中,所述检测模型以离子电流或细胞死亡作为读出信号。
39、在一些实施方案中,若产生了读出信号,则说明候选pwt4型效应蛋白能够被sr62蛋白识别。
40、本发明的pwt4型效应蛋白pwt4是麦瘟菌pyricularia oryzae(magnaportheoryzae)燕麦来源分离株(br58)所分泌的无毒效应蛋白,可被小麦串联激酶受体wtk3(pm24)特异性识别,激活下游由wtn1介导的免疫反应。
41、第四方面,本发明提供了一种筛选pwt4型效应蛋白的方法,包括:将候选的pwt4型效应蛋白或其编码核酸与sr62蛋白或其编码基因以及nlr执行蛋白或其编码基因共表达,以离子电流或细胞死亡作为读出信号,检测读出信号,若产生了读出信号,则说明候选pwt4型效应蛋白能够被sr62蛋白识别。
42、本发明的方法能够以sr62-nlr执行蛋白为免疫模块核心,可通过膜电流或细胞死亡筛选能够被sr62蛋白识别的pwt4型效应蛋白。筛选得到的能够被sr62蛋白识别的pwt4型效应蛋白能够作为新的靶点用于制备麦瘟病抗性植物材料或提高植物对麦瘟病抗性。
43、优选地,所述nlr执行蛋白选自wtn1或sr62nlr或其功能同源物。
44、优选地,所述共表达发生的体系为异源表达体系,更优选为非洲爪蟾卵母细胞、本氏烟草叶片或小麦原生质体。
45、第五方面,本发明提供了一种检测植物麦瘟菌抗性或麦瘟菌免疫识别能力的方法,包括:通过检测植物体中是否具有sr62和pwt4复合物,判断植物麦瘟菌抗性或麦瘟病抗性或麦瘟菌免疫识别能力。
46、在具体实施方案中,所述sr62和pwt4复合物在atp和mg2+存在下形成。
47、在具体实施方案中,若植物体中具有sr62和pwt4复合物,则表明植物具有麦瘟菌抗性或麦瘟病抗性或麦瘟菌免疫识别能力。
48、第六方面,本发明提供了所述方法在制备具有麦瘟菌抗性或具有麦瘟病抗性转基因植物中的应用。
49、优选地,所述植物为禾本科植物,更优选为小麦。
50、第七方面,本发明解析了sr62与pwt4的识别分子机制,具体如下:
51、本发明进一步的结构研究显示,静息状态sr62形成对称同源二聚体。每个sr62单体含有kin-1和kin-2两个串联激酶结构域。kin-1的β4–β5区域形成延伸β-指结构,两个单体的kin-1 β-指反平行配对并形成中央凹槽;kin-2相应区域形成扭曲锚定结构并插入该凹槽,从而维持sr62的自抑制状态。
52、pwt4与秆锈菌效应蛋白avrsr62-5虽然序列和拓扑结构差异明显,但均可形成由两个独立单层β片层组成的柔性双翼结构。pwt4的双翼β片层嵌入sr62二聚体的kin-1 β-指凹槽,并由两个sr62单体的β-指末端和相邻β3–αc环形成双分子夹钳。pwt4结合后竞争性置换kin-2锚定区,破坏kin-1与kin-2之间的自抑制界面,使kin-2获得激活wtn1的能力。
53、sr62识别pwt4的界面具有多点协同特征。pwt4的a翼通过tyr42、ile43、ile44、thr45、val50和val53与一个sr62单体接触,b翼通过ile35、tyr61、gln62、leu63、ile64、leu68和val71与另一个sr62单体接触。单一或少数界面残基替换通常不足以完全消除识别,而同时破坏多个关键接触残基可显著降低或消除pwt4诱导的sr62-wtn1激活。这种柔性、多触点识别方式解释了sr62对不同真菌效应蛋白的跨病原识别能力。
54、atp结合可作为sr62构象预激活的调控步骤。sr62与pwt4的稳定复合物形成依赖atp和mg2+,但最终复合物中未观察到atp稳定保留,提示atp可能瞬时诱导或稳定有利于效应蛋白进入kin-1凹槽的构象,随后从成熟复合物中释放。
55、与现有技术相比,本发明至少具有如下有益效果:
56、本发明发现了sr62能够识别麦瘟菌效应蛋白pwt4的新功能,将sr62的已知秆锈菌效应蛋白识别用途拓展至麦瘟菌效应蛋白识别和抗麦瘟病应用领域,因此本发明为拓展sr62的抗麦瘟病用途、建立pwt4特异性检测体系提供了新的技术基础,为麦瘟病菌无毒基因型检测和田间菌株风险评价提供新的分子工具。同时本发明解析了sr62-pwt4识别界面和atp依赖性复合物形成条件,为sr62功能变体筛选、识别谱工程化改造以及抗病分子设计提供了结构基础,具有广阔的应用前景。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com