
一种通过异位表达OsFMT1基因提高植物花粉低渗透胁迫耐受性的方法及其应用
本发明涉及植物基因工程,尤其涉及一种通过异位表达
osfmt1基因提高植物花粉低渗透胁迫耐受性的方法及其应用。
背景技术:
1、花粉粒作为植物的雄配子体,在其正常发育过程中会经历一系列显著的机械变化和渗透压变化(pacini and dolferus, 2019)。授粉是植物生命周期中的关键过程,花粉传播过程中防止过度干燥的通用保护机制是花粉壁向内折叠并通过阻塞花粉萌发孔来减少水分流失,待花粉落在柱头处再水合花粉恢复至膨胀状态。整个过程中花粉细胞内渗透压剧烈变化,依赖于细胞壁的机械特性防止花粉细胞因膨压骤增导致的破裂。然而,当植物授粉时遭遇降雨天气,花粉授粉水合过程中面临低渗透压冲击,导致花粉胀破、失活,从而影响结实率。以水稻为例,中国南方早稻抽穗扬花的关键时期常常伴随强降雨天气,环境空气湿度大,花粉授粉水合过程中面临低渗透压冲击,导致花粉胀破失活、授粉失败,从而影响结实率,导致水稻产量减产。
2、细胞壁主导了植物细胞的机械行为。植物的细胞生长和形态发生等过程依赖于细胞壁的力学特征,受细胞壁机械特性调节。细胞壁的机械性能可以通过控制化学组成结构以及共价交联程度进行调节。花粉水合过程受细胞壁机械性能和信号组分共同调控(miller et al., 2022)。花粉粒的细胞壁主要由一层坚硬且不溶于水的外壁构成。花粉粒存在外壁变薄或缺失的区域,即“萌发孔”,作为水分流入和花粉管萌发的通道(wang anddobritsa, 2018)。此外,组成细胞壁内壁的纤维素、果胶等多糖物质可能参与调控水合动力学。花粉外壁具有良好的弹性延展性(extensibility),可实现细胞壁的折叠和展开。孢粉素组成的孢子壁、花粉外壁包裹着生殖细胞,具有机械支撑和保持水分的功能,在陆生植物进化过程中起到关键作用(quilichini et al., 2015)。极少数孢子能够依靠气流或动物携带而实现远距离传播,而许多花粉粒则具备较强的远程传播能力。花粉在进化过程中更具驱动力去朝着更轻盈的方向演化。这种适应性需求意味着,在构建花粉壁时,必须更高效地利用孢粉素这种高度坚韧的聚合物,以在不显著增加质量的前提下增强细胞壁结构强度。换言之,花粉比孢子更需要在“轻质”与“坚固”之间取得优化平衡,因此其结构材料必须兼具轻盈与优异的力学性能。这种需求可能推动了孢粉素化学适应性演化,从而赋予其所需的机械韧性和重量控制。
3、花粉外壁和内壁为花粉细胞提供主要机械限制,因此,增强水稻花粉细胞壁机械性能有望提升花粉低渗冲击的耐受性,对于水稻稳产、生态系统稳定性以及其应对气候变化具有重要意义。目前,传统作物育种技术无法精准靶向花粉细胞壁物理、化学特性进行分子设计育种,而转基因育种技术无明确靶标基因可以在不影响植株营养生长和花粉发育的前提下,定向操纵花粉壁化学组成提升花粉对低渗透胁迫的耐受性。
技术实现思路
1、有鉴于此,本发明利用水稻中编码阿魏酰辅酶a单体木质素转移酶(feruloyl–coenzyme a monolignol transferase,fmt)的基因
osfmt1作为操纵花粉壁酚类单元阿魏酸(ferulic acid,fa)聚合的遗传靶标基因,使用花粉特异性启动子驱动
osfmt1基因在水稻花粉中表达,在不影响转基因系植株营养生长的前提下,增加了花粉壁厚度,提高了花粉对低渗透胁迫的耐受性。
2、本发明提供一种提高植物花粉低渗透胁迫耐受性的方法,通过异位表达
osfmt1基因以提高花粉细胞壁增厚和花粉低渗透胁迫耐受性实现的。
3、进一步的,所述
osfmt1基因的异位表达为使用花粉特异性启动子驱动
osfmt1基因在水稻花粉中表达。
4、进一步的,所述异位表达
osfmt1基因的方法包括以下步骤:
5、1)将花粉特异性启动子lat52和
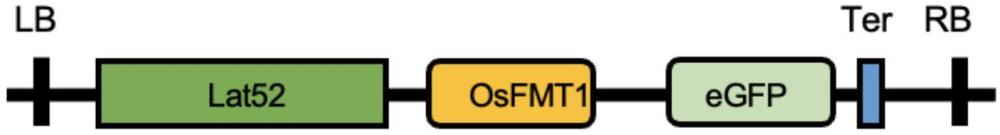
osfmt1基因编码区构建至农杆菌双元转化载体中,将含有双元转化载体的农杆菌感染转化受体植株;所述农杆菌感染转化受体植株为通过感染受体植株的愈伤组织,再生获得的转基因植株;
6、2)将步骤1)获得的
lat52:osfmt1转基因阳性植株即t0代植株,进行种植培养,成熟后收获种子,发苗得到t1代植株,筛选
osfmt1高表达的转基因植株进行种植,成熟后收获种子即t2代,通过筛选获得
osfmt1高表达的纯合转基因植株。
7、进一步的,步骤1)所述双元转化载体的基础载体为pcambia1300。
8、进一步的,所述双元转化载体的构建方法如下:
9、设计lat52-osfmt1的分子克隆引物,利用pcr反应体系对目的片段进行扩增,与经过psti和xbai酶切的载体pc1300-gfp连接,得到连接产物,将连接产物转入大肠杆菌dh5α中,得到转化子;提取转化子的质粒,经测序证明正确,得到双元转化载体。
10、进一步的,所述分子克隆引物的正向引物f的序列为:gcttgcatgcctgcagcgacatactcgactcagaaggt(seq.id.no.3);反向引物r的序列为:cggggatcctctagatatgaaggccttcatctcatct(seq.id.no.4)。
11、具体的,本发明所述植物是单子叶植物或双子叶植物。
12、具体的,所述植物选自水稻、玉米、高粱、谷子、大麦、小麦、黑麦、燕麦、荞麦、薏仁、甘蔗、芦笋、竹笋、韭菜、山药、大豆、土豆、豌豆、绿豆、小豆、蚕豆、豇豆、菜豆、小扁豆、蔓豆、鹰嘴豆、木薯、甘薯、油菜、棉花、 甜菜、茄子、花生、茶叶、薄荷、咖啡、芝麻、向日葵、蓖麻、苏子、红花、番茄、辣椒、黄瓜、青菜、生菜、菠菜、大蒜、甘蓝、芥菜、茭白、大葱、冬瓜、西葫芦、丝瓜、白菜、萝卜 、洋葱、西瓜、葡萄、胡萝卜、花菜、南瓜、烟草、牧草、象草、狼尾草、苏丹草、兰花、百合、郁金香或苜蓿中的任一种。本发明实验采用的植物为水稻,但由于
osfmt1基因在其他被子植物中具有保守性,因此也可以预期在上述植物中也能适用。
13、本发明还提供
osfmt1基因在提高植物花粉细胞壁增厚和/或花粉低渗透胁迫耐受性遗传育种中的应用。
14、发明构思:
15、本发明首先明确酚类单元阿魏酸(ferulic acid,fa)可以作为花粉壁化学修饰的化学靶点。花粉壁通常由内层壁和外壁组成(ariizumi and toriyama, 2011)。其中,内壁由纤维素、半纤维素和果胶组成;外壁由孢粉素组成,它是一种复杂的聚合物,包含脂肪酸和酚类化合物。阿魏酸(ferulic acid,fa)是被子植物孢粉素酚类单元中的保守组分之一,同时也是花粉内壁半纤维素的酚类修饰单元之一。因此,阿魏酸(ferulic acid,fa)可以同时作为花粉外壁和内壁化学修饰的化学靶标。
16、本发明使用水稻中编码阿魏酰辅酶a单体木质素转移酶的基因
osfmt1作为操纵花粉壁酚类单元阿魏酸(ferulic acid,fa)聚合的遗传靶标基因。研究报道fa能够参与自由基偶联反应,
fmt基因将木质素单体与木质素单体生物合成途径中的中间体阿魏酰辅酶a偶联,并掺入木质素主链或将葡糖醛酸阿拉伯木聚糖与木质素交联。孢粉素酚类结构单元同时也是木质素的主要组成成分。孢粉素与木质素这两类组成不同保护屏障的聚合物具有三个共性特征:(1)其酚类结构单元均来源于苯丙烷代谢途径(wallace et al., 2011;halpin, 2019);(2)孢粉素前体的氧化聚合过程涉及活性氧,类似于已知木质素的氧化聚合过程(matveyeva et al., 2012; jacobowitz et al., 2019; grienenberger andquilichini, 2021);(3)酚类化合物在孢粉素中得以整合,这与木质素在维管植物中普遍存在的现象相一致(weng and chapple, 2010b)。这些结果提示,孢粉素酚类单元聚合机制可能与木质素单体聚合机制存在一定程度的趋同演化。因此,阿魏酰辅酶a (coa)单体木质素转移酶的基因
fmt可能既参与花粉外壁中孢粉素酚类单元fa聚合,也参与花粉内壁中半纤维素中fa的整合。
17、本发明的有益效果是:
18、发明人通过实验,利用转基因技术创建了花粉高表达
fmt基因的转基因植株,这些转基因水稻植株花粉活力、结实率均正常。在低渗透压胁迫下,相较于野生型,转基因植株花粉活力维持时间最大提高约3.5倍,并且花粉内壁厚度最大增加约19.16%。因此,在花粉中表达
osfmt1基因,能提高花粉细胞壁厚度,有效缓冲花粉水合时内部膨压,提高花粉抵御低渗透冲击的能力,从而稳定维持花粉活力与萌发能力。本发明通过转基因技术使用花粉特异性启动子驱动
osfmt1在水稻花粉中高表达,改变花粉细胞壁阿魏酰化程度和细胞壁厚度,提高了水稻花粉抵御低渗胁迫的能力,为该方向的植物遗传育种提供了新方法。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com