
促进目的蛋白可溶性表达方法、促溶标签、融合蛋白和应用
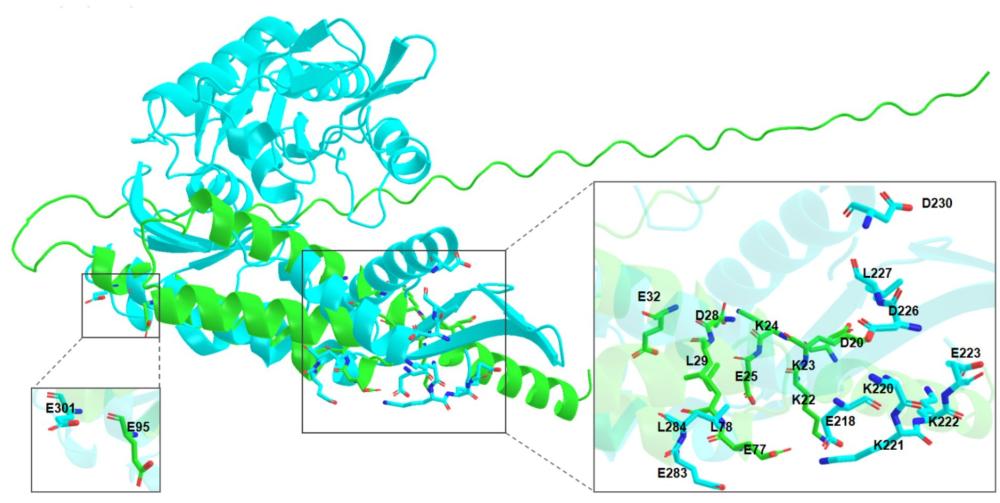
本技术涉及生物,特别涉及促进目的蛋白可溶性表达方法、促溶标签、融合蛋白和应用,进一步涉及生物材料和用于促进目的蛋白可溶性表达的试剂盒。
背景技术:
1、外源蛋白的高活性、高可溶表达是生物制造、工业酶制剂、生物催化及生物医药等领域中的关键技术问题。尽管大肠杆菌等原核表达系统具有生长周期短、培养成本低、遗传操作成熟等显著优势,但大量来源于真核生物、极端微生物或序列设计的蛋白在原核宿主中表达时,仍普遍存在折叠异常、形成包涵体以及缺乏生物学活性等问题,严重制约了其工程化应用。
2、大规模研究数据进一步表明,外源蛋白在原核宿主中的不可溶表达并非个例,而是一种普遍现象。美国东北结构基因组学联盟(northeast structural genomicsconsortium,nesg)对来自不同物种的9644个基因在大肠杆菌中的异源表达情况进行了系统分析,结果显示,仅约31.6%的蛋白能够获得较好的可溶性表达,而约68.4%的蛋白主要以包涵体或其他不溶状态存在。相关统计结果表明,尽管部分蛋白可达到完全可溶的理想状态,但仍有大量构建体表现为完全不溶,反映出异源蛋白表达过程中折叠失败问题的高度普遍性。进一步分析发现,蛋白表达量与可溶性之间总体呈正相关关系,即高表达蛋白更有可能获得较高可溶性;然而,仍存在相当比例的蛋白处于“高表达但完全不溶”的状态,说明仅依赖提高表达水平并不能保证蛋白正确折叠,蛋白翻译速率与折叠效率之间存在复杂且尚未完全阐明的调控机制。上述研究结果充分揭示了当前异源蛋白表达领域面临的核心瓶颈。
3、在上述普遍技术难题中,来源于植物的高强度甜味蛋白在原核宿主中的表达问题尤为突出。甜蛋白是一类天然来源于热带植物的高甜度蛋白质,包括巴西甜蛋白brazzein、索马甜蛋白thaumatin及仙茅草甜蛋白curculin等,其甜度通常为蔗糖的数百至数千倍,在功能性食品、低糖代糖产品及健康食品工业中具有广阔应用前景。随着减糖趋势及健康饮食理念的推广,甜蛋白的规模化生物制造需求日益增长。然而,该类蛋白普遍具有复杂的三级结构,且含有多个二硫键结构,其天然空间构象高度依赖于精确的二硫键配对和氧化折叠过程。
4、甜蛋白分子中多对二硫键的形成对细胞内氧化还原环境及折叠辅助体系具有较高依赖性。在大肠杆菌等典型原核宿主中,细胞质环境呈还原状态,不利于二硫键的自然形成,易导致半胱氨酸残基发生错误配对或无法形成稳定二硫键结构,从而造成蛋白质构象塌陷、错误折叠或形成不溶性包涵体。即使通过提高表达量、改变诱导条件或延长表达时间,甜蛋白往往仍表现为高表达但低可溶或活性显著降低的状态。另一方面,在高gc含量的放线菌类宿主如红球菌中,虽然其翻译调控及蛋白折叠体系与大肠杆菌存在一定差异,但甜蛋白表达仍普遍面临折叠效率低、可溶比例不足等问题,说明甜蛋白结构特征与原核宿主胞内折叠环境之间存在本质适配性障碍。
5、针对上述问题,目前常用的改善蛋白可溶性表达的方法主要包括降低诱导温度、共表达分子伴侣、融合表达促溶蛋白(如mbp、gst、nusa等)以及对编码序列进行优化。然而,上述方法仍存在不同程度的局限性:降低温度会影响细胞生长速率和总体表达效率;共表达分子伴侣会显著增加宿主细胞的代谢负担,其改善效果高度依赖于目标蛋白类型,通用性有限。相对而言,促溶蛋白融合表达策略在部分蛋白中效果较为明显,但经典促溶蛋白通常分子量较大,易对目标蛋白的天然构象及功能形成产生空间干扰,且在融合标签切除后,目标蛋白常出现重新聚集的现象。尤其是对于含多对二硫键、折叠路径复杂的甜味蛋白,上述方法在实际应用中往往难以同时兼顾折叠引导效率与结构保持稳定性,其改善效果有限,难以满足工业规模化生产需求。
6、综上,目前开发的促溶功能融合蛋白通常具有分子量较大、表达负担重或作用机制不明确等缺点,难以同时兼顾表达负担轻、折叠引导效率高及应用灵活性好等要素。尤其对于含多对二硫键的甜味蛋白,其在原核宿主中易发生错误二硫键配对和错误折叠,现有技术尚未提供一种结构干扰低、可精细调控翻译及折叠过程的有效解决方案。因此,亟需开发一种分子量小、结构干扰低、作用机制相对明确且具有广谱适用性的新型促溶元件,以实现对含二硫键蛋白特别是甜蛋白可溶性表达和空间结构正确折叠的有效调控,从而克服现有技术在异源蛋白表达领域中的固有缺陷。
技术实现思路
1、基于此,有必要提供一种促进目的蛋白可溶性表达方法、促溶标签、融合蛋白和应用。
2、第一方面,一些实施方式中提供了一种促进目的蛋白可溶性表达方法,该促进目的蛋白可溶性表达方法包括将促溶标签可操作地连接于所述目的蛋白的n端和c端的至少一端,然后表达含有所述促溶标签和所述目的蛋白的融合蛋白;
3、所述促溶标签的氨基酸序列来源于热休克蛋白hsp70,且所述促溶标签满足如下(ⅰ)~(ⅴ):
4、(ⅰ)选自所述热休克蛋白hsp70与atp、底物蛋白或核酸结合的且含有α螺旋结构的结构域;
5、(ⅱ)所述促溶标签的氨基酸序列中处于α-螺旋促溶标签中的氨基酸数量为所述促溶标签的总氨基酸数量的至少40%,可选地为至少50%;
6、(iii)所述促溶标签含有第一序列基序和第二序列基序;
7、所述第一序列基序的氨基酸序列为l-e;
8、所述第二序列基序的氨基酸序列为x1-x2-k-k-k-e-x3-x4-d-l-x5-x6-x7;
9、x1和x7独立的选自d或e;
10、x2、x3、x4、x5和x6独立的选自任选的氨基酸残基;
11、所述第一序列基序和所述第二序列基序均位于所述α-螺旋结构中,且所述α-螺旋结构的c末端为e;
12、(iv)所述促溶标签的氨基酸序列中带电氨基酸数量为所述促溶标签的总氨基酸数量的至少25%,可选地至少35%;
13、(v)所述促溶标签的氨基酸序列中亲水氨基酸数量为所述促溶标签的总氨基酸数量的至少45%;以及,
14、(ⅴi)所述促溶标签的氨基酸序列中酸性氨基酸asp和glu的数量为所述促溶标签的总氨基酸数量的至少15%。
15、可选的实施方式中,所述促溶标签选自(a)~(b)中的任意一种:
16、(a)dkn,所述dkn的氨基酸序列包括如seq id no.1所示序列,或者包括与seq idno.1所示序列具有至少90%同一性的序列;
17、(b)dksα,所述dksα的氨基酸序列包括如seq id no.2所示序列,或者包括与seqid no.2所示序列具有至少90%同一性的序列。
18、可选的实施方式中,所述目的蛋白含有二硫键;
19、可选的实施方式中,所述目的蛋白含有1~8对二硫键;
20、可选的实施方式中,所述目的蛋白包括甜蛋白;
21、可选的实施方式中,所述甜蛋白包括巴西甜蛋白或其功能等同变体、索马甜蛋白或其功能等同变体和仙茅草甜蛋白或其功能等同变体中的至少一种;
22、可选的实施方式中,所述巴西甜蛋白的氨基酸序列包括seq id no.3所示序列,或者包括与seq id no.3所示序列至少具有90%同一性的序列;
23、可选的实施方式中,所述索马甜蛋白的氨基酸序列包括seq id no.4所示序列,或者包括与seq id no.4所示序列至少具有90%同一性的序列;
24、可选的实施方式中,所述仙茅草甜蛋白的氨基酸序列包括seq id no.5所示序列,或者包括与seq id no.5所示序列至少具有90%同一性的序列;
25、可选的实施方式中,所述目的蛋白为甜蛋白,所述促溶标签可操作地连接于所述甜蛋白的n端;
26、另一些可选的实施方式中,所述目的蛋白包括转氨酶;
27、可选的实施方式中,所述转氨酶包括转氨酶突变体ile249gln;
28、可选的实施方式中,所述转氨酶突变体ile249gln的氨基酸序列包括seq idno.21所示序列,或者包括与seq id no.21所示序列至少具有90%同一性的序列;
29、可选的实施方式中,所述目的蛋白为转氨酶,所述促溶标签选自所述dkn,所述促溶标签可操作地连接于所述转氨酶的n端;
30、可选的实施方式中,所述目的蛋白为转氨酶,所述促溶标签选自所述dksα,所述促溶标签可操作地连接于所述转氨酶c端。
31、可选的实施方式中,所述促溶标签和所述目的蛋白通过连接肽连接;
32、可选的实施方式中,所述连接肽包括柔性连接肽和刚性连接肽中的至少一种;
33、可选的实施方式中,所述连接肽包括(ggggs)n,n为1~6的正整数;
34、可选的实施方式中,所述连接肽含有蛋白酶切割位点;
35、可选的实施方式中,所述蛋白酶切割位点包括凝血酶的切割位点和tev蛋白酶的酶切位点中的至少一种;
36、可选的实施方式中,所述融合蛋白还含有纯化标签;
37、可选的实施方式中,所述目的蛋白包括甜蛋白;所述融合蛋白的氨基酸序列包括seq id no.6~11中的任一所示序列,或者包括与seq id no.6~11中的任一所示序列至少具有90%同一性的序列;
38、或,所述目的蛋白包括甜蛋白;所述融合蛋白含有his标签,所述融合蛋白的氨基酸序列包括seq id no.15~20中的任一所示序列,或者包括与seq id no.15~20中的任一所示序列至少具有90%同一性的序列;
39、或,所述目的蛋白包括转氨酶突变体ile249gln;所述融合蛋白的氨基酸序列包括seq id no.22~25中的任一所示序列,或者包括与seq id no.22~25中的任一所示序列至少具有90%同一性的序列。
40、可选的实施方式中,该促进目的蛋白可溶性表达方法包括将编码所述促溶标签的核酸分子与编码所述目的蛋白的核酸分子融合构建获得融合基因,并在宿主细胞中表达所述融合基因获得含有所述目的蛋白的所述融合蛋白;
41、可选的实施方式中,所述宿主细胞包括原核细胞;
42、可选的实施方式中,所述原核细胞包括大肠杆菌或红球菌;
43、可选的实施方式中,所述促进目的蛋白可溶性表达方法还包括使用酶切割所述融合蛋白中的酶切位点,以切除融合蛋白中的促溶标签。
44、第二方面,一些实施方式中提供了一种促溶标签,所述促溶标签选自第一方面中所定义的促溶标签。
45、第三方面,一些实施方式中提供了一种融合蛋白,该融合蛋白选自第一方面中所定义的融合蛋白。
46、第四方面,一些实施方式中提供了一种生物材料,该生物材料选自(ⅰ)核酸分子、(ⅱ)载体或(ⅲ)重组细胞;
47、(ⅰ)核酸分子,所述核酸分子编码第三方面所述的促溶标签,或编码第四方面所述的融合蛋白;
48、(ⅱ)载体,所述载体携带(ⅰ)中所述核酸分子;
49、(ⅲ)重组细胞,所述重组细胞包含(ⅰ)中所述核酸分子,或包含(ⅱ)中所述载体,或表达第三方面所述的融合蛋白。
50、可选的实施方式中,所述重组细胞包括原核细胞。
51、可选的实施方式中,所述原核细胞包括大肠杆菌或红球菌。
52、第五方面,一些实施方式中提供了第二方面所述的促溶标签、第三方面所述的融合蛋白或第四方面所述的生物材料在(ⅰ)~(ⅳ)任一项中的应用:
53、(ⅰ)促进目的蛋白可溶性表达和正确折叠;
54、(ⅱ)制备用于使目的蛋白可溶性表达和正确折叠的试剂盒;
55、(ⅲ)制备甜味剂;以及,
56、(ⅳ)制备转氨酶。
57、第六方面,一些实施方式中提供了一种用于促进目的蛋白可溶性表达的试剂盒,所述试剂盒含有第四方面中所定义的核酸分子或第四方面中所定义的载体。
58、本技术提供的促进目的蛋白可溶性表达方法,其核心在于对促溶标签的设计:本技术一些实施方式中通过对具有折叠调控潜力的热休克蛋白hsp70进行结构拆分与功能筛选,从二级结构特征与氨基酸理化性质进行设计筛选。在结构层面,优选来源于热休克蛋白hsp70中参与atp结合、底物蛋白结合或核酸相互作用的功能区域,并进一步筛选富含α螺旋结构的结构域。由于α螺旋结构具有良好的结构稳定性及表面暴露特性,有利于形成稳定的分子间相互作用,并可在融合表达过程中为新生肽链提供有利的折叠微环境,从而降低错误折叠和蛋白聚集风险。在理化性质方面,优选富含带电氨基酸(asp、glu、lys、arg和his)、亲水氨基酸(asp、glu、lys、arg、his、asn、gln、ser、thr、tyr和cys)以及酸性氨基酸(asp和glu)的序列作为候选标签。其中,较高比例的带电及亲水氨基酸能够增强融合蛋白与水分子的相互作用,提高蛋白表面的水化能力,降低疏水暴露导致的非特异性聚集;富集的酸性氨基酸则能够提高标签整体负电荷密度,增强静电排斥作用,进一步抑制蛋白聚集,提高融合蛋白的可溶性。同时,所述标签避免引入连续长疏水片段,在保持较高亲水性的同时兼顾结构稳定性。
59、基于上述定向设计获得的促溶标签分子量小、结构简单且具有良好表达适配性,将其可操作地连接至目的蛋白的n端和/或c端,即可提高目的蛋白的正确折叠比例和可溶性表达水平。该融合策略无需改变目的蛋白核心编码序列或关键功能区域,避免因序列改造带来的目的蛋白功能改变或结构不稳定风险;融合构建方式模块化程度高,可直接兼容现有表达载体体系,构建流程简便,适于快速筛选和工业放大生产。相较于共表达分子伴侣或融合大分子标签的方式,本技术经精简设计的促溶标签长度较短、代谢负担较低,有利于维持宿主细胞的正常生长状态和整体蛋白合成能力,在保证目的蛋白可溶性显著提升的同时兼顾表达总量,有助于实现目的蛋白产量与折叠效率的协同优化。
60、并且,本技术实施方式提供的促溶标签在序列组成、长度及融合位置方面具有较高设计灵活性,可根据不同甜蛋白的结构特征及表达行为进行优化设计。该模块化融合策略无需改变甜蛋白核心编码序列,可直接兼容现有原核表达体系,适于规模化生产与工业应用。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com