
工程化G蛋白及其在靶向GPCR的药物筛选中的应用的制作方法
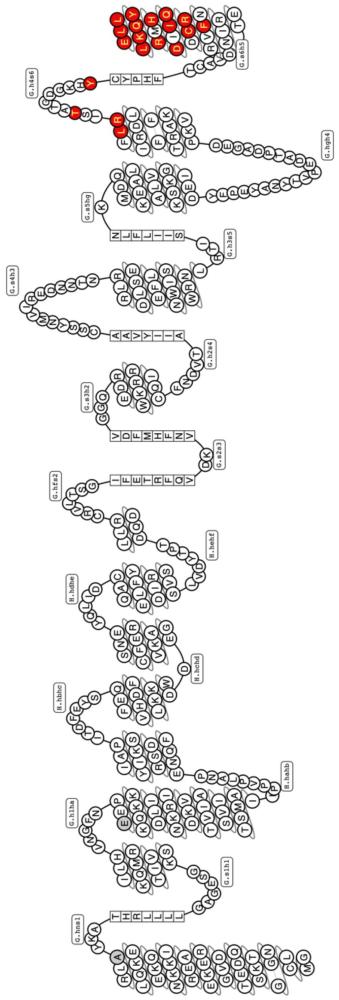
本发明涉及生物医药领域,具体涉及工程化g蛋白及其在靶向gpcr的药物筛选中的应用。
背景技术:
1、g蛋白是一种异源三聚体g蛋白,由α、β和γ亚基组成。其中α亚基在人体中有16个不同的基因亚型,而β和γ亚基分别有5个和12个基因亚型。
2、gpcr是一种动态的膜蛋白受体。在细胞膜中,它们不断变化,导致了不同的瞬时构象状态。较高浓度的激动剂可以将这种平衡转移到识别所需转导蛋白的特定状态。激动剂与其配体结合口袋(orthosteric binding site)的结合会导致分子内相互作用网络发生一系列变化,最终将受体的胞质位点重新排列成所需的活性构象。gpcr通过引起构象变化催化α亚单位的gtpase结构域上gdp与gtp的交换来激活g蛋白。然后,这种活化的g蛋白与下游效应器分子(例如效应蛋白)相互作用,触发各种细胞反应。gpcr/g蛋白复合物形成后,gα的c端折叠成螺旋结构(α5),并插入活化受体的跨膜束胞质腔中。由于α5和α1之间存在变构连接,α1螺旋失去结构完整性,导致gdp结合位点不稳定。这种对gdp结合位点的破坏降低了对gdp的亲和力并导致其从复合物中解离。细胞内较高的gtp浓度确保随后gtp结合并触发激活的gtp结合型gα和gβγ亚单位与受体的解离,从而启动信号级联反应。
3、效应蛋白可以是酶、离子通道或其他细胞信号转导蛋白。gpcr与g蛋白之间的选择性识别是许多信号级联的关键步骤。由此产生的细胞反应取决于所结合的g蛋白类型,因此这种蛋白质-蛋白质结合事件直接影响机体的生理功能。通过解析gpcr/g蛋白结构获得的知识能够更好地理解受体和g蛋白如何相互激活和相互作用。例如,第一个与同源gαs蛋白结合的活性gpcr结构揭示了gα的gtpase结构域中可能参与调节gpcr-g蛋白选择性的特定区域。
4、常用的gpcr药物筛选方法有第二信使的检测、钙离子荧光染料检测、camp浓度测试、β-arrestin募集、gtpγs结合和erk1/2磷酸化。其中第二信使的检测,比如camp和钙离子,可以很快的得到相关药物的筛选参数。但是由于这些方法成本高昂,所对应的仪器也是非常昂贵。而erk1/2磷酸化实验对应的是相对比较下游的信号检测,而且实验方法也限制了大规模的药物筛选。gtpγs结合实验则是利用同位素的信号检测,涉及到放射性,所以实验的安全性和大规模实验都受到了限制。
5、2017年sosei heptares公司申请得到了mini-g蛋白的专利(wo2017/129998a1),使得gpcr药物筛选的流程更加便利。mini-g蛋白是一种亲本异源三聚体g蛋白α(gα)亚基的突变体,所述突变体缺乏所述亲本gα亚基的螺旋结构域的至少一个螺旋;并能够在异源三聚体g蛋白β(gβ)亚基和异源三聚体g蛋白γ(gγ)亚基不存在的情况下与gpcr结合;另外具有与所述亲本异源三聚体gα亚基的氨基酸序列相比包含一个或多个突变的氨基酸序列,所述突变选自缺失、取代和插入。
6、在人类中,存在着超过800种不同的gpcr,而gα蛋白亚型只有16种。每个受体通常会与不止一种类型的gα相互作用,确定决定选择性蛋白质-蛋白质结合的分子机制仍然具有挑战性。现有的针对gpcr-g蛋白药物筛选技术都是利用gpcr和人工的g蛋白(比如minig蛋白)的互作,而采取的生物荧光共振能量转移(bioluminescence resonance energytransfer,bret)技术来检测。现阶段针对gpcr靶标的药物筛选的检测方法已采取生物荧光共振能量转移(bioluminescence resonance energy transfer,bret)技术。bret的工作原理涉及两个关键组分:供体和受体。供体通常是一种发光蛋白(例如荧光素酶),而受体是一种不发光的蛋白。当供体和受体靠近时,能量从供体转移到受体,导致受体发出光。具体来说,bret的工作原理如下:
7、a.供体的激发:首先,供体(发光蛋白)被激发,通常是通过添加外部的底物(例如共价连接的底物或者荧光素底物)。这导致供体发出光子。
8、b.受体的激发:当供体和受体靠近时,如果它们之间存在相互作用,那么能量将通过非辐射性能量转移(fret)或受体吸收光子的方式转移到受体。这导致受体发出光子。
9、c.检测:通过检测受体发出的光子,可以确定供体和受体之间的相互作用程度。这种光子的能量和强度可以用来评估分子之间的距离和相互作用的强度。
10、总的来说,bret利用供体和受体之间的能量转移来间接检测分子相互作用。这种方法的优点是无需外部光源(与fret相比),可以在活细胞中进行实时检测,并且可以用于定量和定位研究。
11、现有技术所存在的问题在于:
12、1、以gpcr和人源的g蛋白来进行药物筛选费时费力。
13、2、尽管bret是一种广泛应用于生物成像和蛋白质相互作用研究的强大技术,但它也存在一些缺陷和限制,包括:
14、a.信号背景噪音:bret实验可能受到背景噪音的影响,这些噪音可能来自于细胞中的自发发光或非特定的光谱干扰,这可能降低信号的准确性和灵敏度。
15、b.质控和标准化:bret实验的标准化和质控可能具有挑战性,因为不同的细胞类型、实验条件和荧光素底物的选择都可能影响结果的可重复性和比较性。
16、c.深度限制:由于光的衰减,bret信号的检测深度受到限制。在较深的组织内,信号可能被衰减,使得bret在体内应用上有一定的局限性。
17、d.动力学测量的限制:bret信号的动力学范围可能受到限制,因为它受到供体和受体浓度之间的关系以及底物的限制等因素的影响。
18、e.受限于分子标记的选择:bret实验通常需要使用特定的荧光素底物或者标记蛋白,这可能会影响到分子相互作用的动力学行为,并且可能需要适应于特定的实验条件。
19、所以,一般采用的是利用gpcr和人工的g蛋白的结合,来测试不同小分子对这种结合活性的影响。从而判断小分子是否对gpcr下游信号通路有作用。但是这种方法中gpcr和人工g蛋白的结合活性其实是不太高,所有在信号检测时有一定的限制,这给小分子药物筛选带来了不利影响。因此,有必要开发与gpcr结合更加紧密的人工g蛋白。
技术实现思路
1、本发明所要解决的技术问题是现有靶向gpcr的药物筛选缺少低成本、高灵敏度的g蛋白,提供了一种工程化g蛋白及其在靶向gpcr的药物筛选中的应用。本发明的工程化g蛋白保留了与gpcr结合和启动信号传导的关键结构域,同时缺失β和γ亚基,使其体积更小,并且可能更易于操作。实验表明本发明的工程化g蛋白具有与gpcr靶点更强的结合活性,这为之后的药物筛选提供了有力的保障。
2、本发明通过以下技术方案解决上述技术问题。
3、本发明第一方面提供一种工程化g蛋白,所述工程化g蛋白具有与seq id no: 1相比包含r17k、r36k、s49t、v61l、n211d、d212a、v213r、i218l和r223k中的一个或多个氨基酸残基差异的氨基酸序列;或,
4、所述工程化g蛋白具有与seq id no: 2相比包含r14a、d59q、k177d、r208k、i217l、r223k和v228l中的一个或多个氨基酸残基差异的氨基酸序列;或,
5、所述工程化g蛋白具有与seq id no: 3相比包含d93a、a206i、i209v、r214a、q218e、r219k、h221n和r223k中的一个或多个氨基酸残基差异的氨基酸序列。
6、g蛋白具有非常高的序列同一性,特别是在同一家族内。人们一直认为氨基酸序列决定了g蛋白亚型对gpcr的选择性。根据目前的认知,每个g蛋白家族都存在保守氨基酸模式,这些模式可以被许多不同类型的gpcr识别,并与每个受体上的不同残基相互作用。这可以解释gpcr的g蛋白结合口袋中缺乏清晰的常见氨基酸模式以及它们通过多种g蛋白类型传递信号的能力。在g蛋白上,最著名的选择性位点是gαgtpase结构域的c端α5螺旋。在每个gα蛋白家族中,这种结构域的四个c端残基(即所谓的c端“钩”结构)上都存在特定的氨基酸模式。α5插入gpcr胞质结合位点,自然会与受体形成最大的接触界面,构成gpcr-gα蛋白的结合“核心”。许多研究表明α5末端几个氨基酸(即“钩”残基)在gpcr的识别和选择性中起着重要作用。例如,研究表明仅替换gα蛋白c端的3到5个残基就可以改变它们对gpcr识别的偏好。此外,螺旋插入gpcr的角度似乎在选择性偶联中也发挥着作用。除了这个“核心”相互作用之外,其他研究还探索了其他可能的gpcr/g蛋白接触位点(即“边缘位置”)的重要性,这些位置与受体细胞内环2和3接触。
7、在同一原理下,发明人分析了相关哺乳动物的g蛋白序列,并设计相关的g蛋白(alpha-g蛋白),该alpha-g蛋白缺失了与异源三聚体g蛋白β(gβ)亚基和异源三聚体g蛋白γ(gγ)结合的序列,并保留了其与gpcr靶点结合的螺旋结构域。通过序列比对和实验设计,得到了和靶点gpcr有更好反应的alpha-g蛋白。
8、在一些实施方案中,所述工程化g蛋白具有与seq id no: 1相比包含r17k、r36k、s49t、v61l、n211d、d212a、v213r、i218l和r223k中的8个或9个氨基酸残基差异的氨基酸序列。
9、在一些实施方案中,所述工程化g蛋白具有与seq id no: 2相比包含r14a、d59q、k177d、r208k、i217l、r223k和v228l中的6个或7个氨基酸残基差异的氨基酸序列。
10、在一些实施方案中,所述工程化g蛋白具有与seq id no: 3相比包含d93a、a206i、i209v、r214a、q218e、r219k、h221n和r223k中的7个或8个氨基酸残基差异的氨基酸序列。
11、在一些实施方案中,所述工程化g蛋白具有与seq id no: 1相比存在r17k、r36k、s49t、v61l、n211d、d212a、v213r、i218l和r223k中的8个或9个氨基酸残基差异的氨基酸序列。
12、在一些实施方案中,所述工程化g蛋白具有与seq id no: 2相比存在r14a、d59q、k177d、r208k、i217l、r223k和v228l中的6个或7个氨基酸残基差异的氨基酸序列。
13、在一些实施方案中,所述工程化g蛋白具有与seq id no: 3相比存在d93a、a206i、i209v、r214a、q218e、r219k、h221n和r223k中的7个或8个氨基酸残基差异的氨基酸序列。
14、在一些实施方案中,所述工程化g蛋白具有如seq id no: 4-30任一项所示的氨基酸序列。
15、在一些实施方案中,所述工程化g蛋白的氨基酸序列具有以下任一项特征:
16、1)与seq id no: 1相比存在r17k、r36k、s49t、v61l、n211d、d212a、v213r、i218l和r223k的氨基酸残基差异;
17、2)与seq id no: 1相比存在r36k、s49t、v61l、n211d、d212a、v213r、i218l和r223k的氨基酸残基差异;
18、3)与seq id no: 1相比存在r17k、s49t、v61l、n211d、d212a、v213r、i218l和r223k的氨基酸残基差异;
19、4)与seq id no: 1相比存在r17k、r36k、v61l、n211d、d212a、v213r、i218l和r223k的氨基酸残基差异;
20、5)与seq id no: 1相比存在r17k、r36k、s49t、n211d、d212a、v213r、i218l和r223k的氨基酸残基差异;
21、6)与seq id no: 1相比存在r17k、r36k、s49t、v61l、d212a、v213r、i218l和r223k的氨基酸残基差异;
22、7)与seq id no: 1相比存在r17k、r36k、s49t、v61l、n211d、v213r、i218l和r223k的氨基酸残基差异;
23、8)与seq id no: 1相比存在r17k、r36k、s49t、v61l、n211d、d212a、i218l和r223k的氨基酸残基差异;
24、9)与seq id no: 1相比存在r17k、r36k、s49t、v61l、n211d、d212a、v213r和r223k的氨基酸残基差异;
25、10)与seq id no: 1相比存在r17k、r36k、s49t、v61l、n211d、d212a、v213r和i218l的氨基酸残基差异;
26、11)与seq id no: 2相比存在r14a、d59q、k177d、r208k、i217l、r223k和v228l的氨基酸残基差异;
27、12)与seq id no: 2相比存在d59q、k177d、r208k、i217l、r223k和v228l的氨基酸残基差异;
28、13)与seq id no: 2相比存在r14a、k177d、r208k、i217l、r223k和v228l的氨基酸残基差异;
29、14)与seq id no: 2相比存在r14a、d59q、r208k、i217l、r223k和v228l的氨基酸残基差异;
30、15)与seq id no: 2相比存在r14a、d59q、k177d、i217l、r223k和v228l的氨基酸残基差异;
31、16)与seq id no: 2相比存在r14a、d59q、k177d、r208k、r223k和v228l的氨基酸残基差异;
32、17)与seq id no: 2相比存在r14a、d59q、k177d、r208k、i217l和v228l的氨基酸残基差异;
33、18)与seq id no: 2相比存在r14a、d59q、k177d、r208k、i217l和r223k的氨基酸残基差异;
34、19)与seq id no: 3相比存在d93a、a206i、i209v、r214a、q218e、r219k、h221n和r223k的氨基酸残基差异;
35、20)与seq id no: 3相比存在a206i、i209v、r214a、q218e、r219k、h221n和r223k的氨基酸残基差异;
36、21)与seq id no: 3相比存在d93a、i209v、r214a、q218e、r219k、h221n和r223k的氨基酸残基差异;
37、22)与seq id no: 3相比存在d93a、a206i、r214a、q218e、r219k、h221n和r223k的氨基酸残基差异;
38、23)与seq id no: 3相比存在d93a、a206i、i209v、q218e、r219k、h221n和r223k的氨基酸残基差异;
39、24)与seq id no: 3相比存在d93a、a206i、i209v、r214a、r219k、h221n和r223k的氨基酸残基差异;
40、25)与seq id no: 3相比存在d93a、a206i、i209v、r214a、q218e、h221n和r223k的氨基酸残基差异;
41、26)与seq id no: 3相比存在d93a、a206i、i209v、r214a、q218e、r219k和r223k的氨基酸残基差异;和,
42、27)与seq id no: 3相比存在d93a、a206i、i209v、r214a、q218e、r219k和h221n的氨基酸残基差异。
43、在一些实施方案中,与seq id no: 1相比存在r17k、r36k、s49t、v61l、n211d、d212a、v213r、i218l和r223k的氨基酸残基差异的序列为seq id no: 4。
44、在一些实施方案中,与seq id no: 2相比存在r14a、d59q、k177d、r208k、i217l、r223k和v228l的氨基酸残基差异的序列为seq id no: 5。
45、在一些实施方案中,与seq id no: 3相比存在d93a、a206i、i209v、r214a、q218e、r219k、h221n和r223k的氨基酸残基差异为seq id no: 6。
46、在一些实施方案中,所述工程化g蛋白具有与seq id no: 4相比包含k17r、k36r、t49s、l61v、d211n、a212d、r213v、l218i和k223r中的一个或多个氨基酸残基差异的氨基酸序列。
47、所述工程化g蛋白具有与seq id no: 5相比包含a14r、q59d、d177k、k208r、l217i、k223r和l228v中的一个或多个氨基酸残基差异的氨基酸序列。
48、所述工程化g蛋白具有与seq id no: 6相比包含a93d、i206a、v209i、a214r、e218q、k219r、n221h和k223r中的一个或多个氨基酸残基差异的氨基酸序列。
49、本发明第二方面提供一种分离的核酸,所述分离的核酸编码如本发明第一方面所述的工程化g蛋白。
50、本发明第三方面提供一种重组载体,所述重组载体包含本发明第二方面所述的分离的核酸。
51、本发明第四方面提供一种转化体,所述转化体为包含如本发明第一方面所述的分离的核酸或者如本发明第二方面所述的重组载体的宿主细胞。
52、在一些实施方案中,所述转化体表达如本发明第一方面所述的工程化g蛋白。
53、本发明第五方面提供一种制备g蛋白的方法,所述方法包括培养如本发明第四方面所述的转化体,并从培养物中获得所述g蛋白。
54、本发明第六方面提供一种组合物,所述组合物包含一种或多种如本发明第一方面所述的工程化g蛋白。
55、在一些实施方案中,所述组合物还包含gpcr。
56、本发明第七方面提供如本发明第一方面所述的工程化g蛋白、如本发明第二方面所述的分离的核酸、如本发明第三方面所述的重组载体、如本发明第四方面所述的转化体或者如本发明第六方面所述的组合物在药物筛选、g蛋白配体筛选、评价g蛋白与gpcr的结合活性或互作中的应用。
57、本发明第八方面提供一种筛选靶向gpcr的药物的方法,所述方法包括:
58、将待测药物与如本发明第一方面所述的工程化g蛋白接触,并检测待测药物与所述工程化g蛋白的相互作用的步骤。
59、在一些实施方案中,所述待测药物为蛋白质。
60、在一些实施方案中,所述相互作用包括:结合活性、构象变化、信号通路的抑制或激活。
61、在一些实施方案中,所述方法还包括对所述待测药物或所述工程化g蛋白进行标记的步骤。
62、在一些实施方案中,所述检测通过bret或nanobit进行。
63、本发明第九方面提供一种试剂或试剂盒,所述试剂或试剂盒包含如本发明第一方面所述的工程化g蛋白、如本发明第二方面所述的分离的核酸、如本发明第三方面所述的重组载体、如本发明第四方面所述的转化体和如本发明第六方面所述的组合物中的一种或多种。
64、在一些实施方案中,所述试剂或试剂盒用于检测gpcr的活性;或,所述试剂或试剂盒用于评估gpcr受体与候选小分子的结合程度。
65、本发明第十方面提供如本发明第一方面所述的工程化g蛋白、如本发明第二方面所述的分离的核酸、如本发明第三方面所述的重组载体、如本发明第四方面所述的转化体和如本发明第六方面所述的组合物中的一种或多种在制备试剂或试剂盒中的应用。
66、在一些实施方案中,所述试剂或试剂盒用于检测gpcr的活性;或,所述试剂或试剂盒用于评估gpcr受体与候选药物的结合活性。
67、之后实验进一步证明设计的alpha-g蛋白对靶标gpcr有更好的响应。另外,为了对bret感应器进行改进,采用纳米生物荧光共振能量转移实验(nanoluc binarytechnology, nanobit)进行实验。
68、nanobit是基于bioluminescence resonance energy transfer(bret)的一种改进版本。nanobit实验通常利用nanoluc蛋白质作为报告基因,能够产生非常强的生物发光信号。在nanobit实验中,通常会将要研究的两个蛋白质分别与nanoluc的两个亚基结合,形成nanobit复合物。当这两个蛋白质之间相互作用时,nanobit复合物会聚集在一起,使得nanoluc的两个亚基也靠近,从而产生强烈的生物发光信号。通过检测这种发光信号的强弱,可以判断蛋白质之间的相互作用程度。nanobit实验在生物医学研究中被广泛应用,特别是用于筛选药物、研究信号通路和蛋白质相互作用等方面。
69、在符合本领域常识的基础上,上述各优选条件,可任意组合,即得本发明各较佳实例。
70、本发明所用试剂和原料均市售可得。
71、本发明的积极进步效果在于:
72、本发明的alpha-g蛋白对靶标gpcr有更好的响应。为了通过对bret的感应器的改进,将其改进成为纳米生物荧光共振能量转移实验(nanoluc binary technology,nanobit)。本发明的alpha-g蛋白针对靶标gpcr进行药物筛选,相比于现有技术更加快速,更加省钱,更加灵敏。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com