
AAT-Fc融合蛋白的制作方法
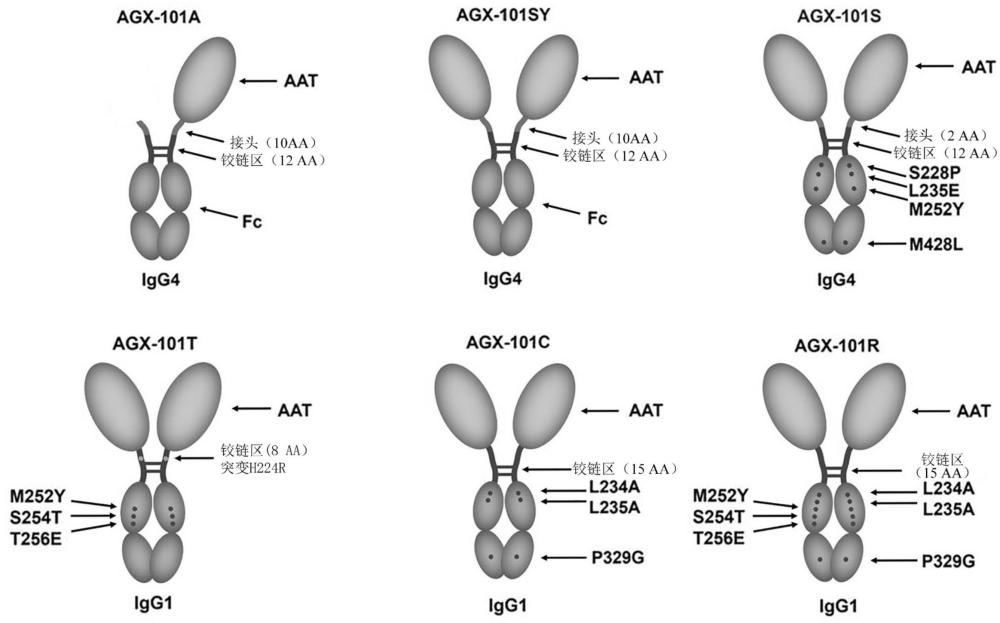
本发明公开了一种融合蛋白,该融合蛋白包含免疫球蛋白igg fc结构域和α1-抗胰蛋白酶(aat)多肽。本发明还公开了一种治疗或预防病症或疾病的方法,该方法包括向对象施用包含免疫球蛋白igg fc结构域和α1-抗胰蛋白酶(aat)多肽的融合蛋白。
背景技术:
1、α1-抗胰蛋白酶(aat)是一种蛋白酶抑制剂,在全身具有多种作用。例如,aat通过抑制中性粒细胞蛋白酶来保护肺部,但是aat具有许多其他非蛋白水解功能,具有抗炎、抗病毒和稳态作用。大约1/1600至1/5000人中就有1人具有纯合z突变,该突变引起aat错误折叠,在(主要)肝细胞中积累和aat的低循环水平,从而造成aat缺乏症(aatd)。aatd典型地是一种中性粒细胞炎症性疾病,该疾病具有侵袭性和破坏性的先天免疫反应,促成肺气肿和其他病理改变。aatd是最常见的遗传疾病之一,但是相当程度未被充分认识(crossley等人,alpha-1 antitrypsin deficiency and accelerated aging: a new model for anold disease?, june 2019, drugs & aging 36:823-840)。用于治疗aatd的最先进的临床疗法是一种包含aat多肽和igg4 fc结构域的融合蛋白,如wo2013/003641中所述。
2、aat构建体也可用于治疗神经系统疾病或病症以及获得性炎性疾病。例如,用血浆来源的aat进行治疗已被证明在小鼠模型中治疗腓骨肌萎缩症(cmt)是有效的(wo2023247736)。
3、神经系统疾病或病症是能够显著影响外周神经系统(pns)和/或中枢神经系统(cns)的疾病或病症。在过去的十年中,神经炎症在我们理解神经系统疾病方面变得越来越核心。炎症本身可以直接或间接引发疾病,但是它无疑有助于疾病在整个pns和cns中的发病机理。外周疾病,如吉兰-巴雷综合征(gbs)(chang等人,2012)、腓骨肌萎缩症(hoyle等人,2015)、神经病理性疼痛、纤维肌痛和其他外周神经病(pns)(martin-aguilar、pascual-goni和querol,2019)以及中枢疾病,包括帕金森病(pd)和运动神经元病(marogianni等人,2020)、阿尔茨海默病(ad)(hampel等人,2020)和其他痴呆、多发性硬化(ms)(baecher-allan, kaskow, and weiner 2018; matthews 2019)、肌萎缩侧索硬化(als)、缺血和创伤性脑损伤、抑郁症和自闭症谱系障碍,均与激活的小胶质细胞驱动的机制有关(skaper等人,2018)。
4、遗传性外周神经病构成了一组高度多样化的疾病,其最常见的形式统称为腓骨肌萎缩症(cmt),在世界范围内的患病率为1/2500,并且具有高度遗传异质性(涉及>100种不同的基因)(bird, t. d., 1993, genereviews (r))。在这一广泛的遗传模式可能性中,cmt1a是最常见的形式,占1型cmt的80%。其特征在于pmp22基因的染色体内重复(stavrou,sargiannidou等人,2021)。外周神经病的主要致病成分是髓鞘的损伤,无论是其在遗传形式(cmt1a-f和-x)中异常发育(髓鞘形成障碍)之后,还是在获得性形式(急性/慢性炎性脱髓鞘性多神经病;aidp/cidp)中的直接损伤。
5、髓鞘由pns中的施万细胞(scs)产生,对于神经中电冲动的正确传递至关重要。在髓鞘正常调控所需的复杂神经元/神经胶质交叉通讯中(rao和pearse 2016),若干种不同的信号通路参与其中。这些包括生长因子、整合素和细胞粘附分子,但是更重要的是,通过erbb2/3受体的关键神经调控蛋白1 iii型(nrg1-iii)信号(taveggia, c.,等人, 2005,neuron 47(5): 681-694.)及其蛋白水解脱落酶调控剂,肿瘤坏死因子-α–转化酶tace(也称为adam-17)(fleck, d.等人, 2016, j biol chem 291(1): 318-333)。尽管目前正在探索多种多样的尖端治疗策略(crispr/cas9编辑、基于病毒的基因递送、sirna纳米颗粒),但是没有一种成功完成临床试验的iii期,并且cmt没有实际的治疗方法(fridman, v. andm. a. saporta, 2021, neurotherapeutics 18(4): 2236-2268.)。此外,这些策略中很少靶向nrg1/ebrb2/3/tace通路,尽管抑制tace已被证明能促进髓鞘形成。tace/adam-17是一种跨膜蛋白,该跨膜蛋白包含一个胞外锌依赖性蛋白酶结构域。在cmt1a的背景下,已知adam-17通过以不依赖配体的方式切割表皮生长因子结构域中的nrg1-iii,对scs介导的髓鞘形成具有抑制作用(la marca, r., 2011, nat neurosci 14(7): 857-865.)。文献中关于人蛋白酶aat的作用报道了相互矛盾的证据。具体而言,在2013年,aat被证明不与tace/adam-17相互作用(van't wout e. f.等人, 2014, hum mol genet.; 23(4):929-4),这与2010年较早的一篇报道相矛盾,该报道声称aat确实与tace/adam-17相互作用,并且以剂量依赖性方式抑制其活性(bergin, d. a.等人, 2010, j clin invest 120(12): 4236-4250.)。
6、由神经系统疾病引起的各种损伤越来越被认为是世界性的公共卫生挑战,其负担预计在未来几十年内增加。
7、许多cns和pns神经退行性疾病的共同生物学特征是由于前馈循环(也称为“细胞因子风暴”)中细胞因子释放的协调而引起的持续和急性炎症反应。因此,减轻炎症反应是治疗策略的核心目标。然而,其多种介导因子背后的炎症机制的微妙之处尚未完全了解。
8、仍然需要具有改善的药物特性的治疗性aat-fc融合蛋白。
9、此外,需要对神经系统疾病或病症以及遗传性疾病和获得性炎性疾病的改善疗法。
技术实现思路
1、本发明提供了一种融合蛋白,该融合蛋白包含免疫球蛋白igg fc结构域和α1-抗胰蛋白酶(aat)多肽,其中aat多肽共价融合至igg fc结构域的n-末端或c-末端。
2、融合蛋白还包含一个或多个降低融合蛋白免疫原性和/或增加融合蛋白血清半衰期的特征。例如,融合蛋白可以包含特征(a)至(c)中的任一项或其任意组合:(a) fc结构域包含对应于l234a或f234a、l235a和p329g的突变(“lalapg突变”);(b) fc结构域包含对应于m252y、s254t和t256e的突变(“yte突变”);和/或(c) 融合蛋白包含fc结构域与aat多肽之间的接头,其中接头包含至少5个氨基酸,任选地其中接头是甘氨酸-丝氨酸接头和/或包含seq id no: 24的氨基酸序列。
3、本发明人出人意料地发现,包含特征(a)、(b)和/或(c)的融合蛋白与不包含这些特征的融合蛋白相比,具有降低的免疫原性。例如,本发明的融合蛋白与seq id no: 20或34(如wo2013/003641中所述)的融合蛋白(其是目前临床上最先进的aat-fc构建体)相比,可以具有降低的免疫原性,而没有任何adam-17抑制活性的显著损失。包含yte突变或lalapg和yte突变组合的本发明的融合蛋白与不包含这些突变的等效融合蛋白或仅包含lalapg突变的融合蛋白相比,具有降低的免疫原性。特别地,包含lalapg和yte突变组合的融合蛋白具有特别低的免疫原性。
4、降低的免疫原性是有利的,因为它降低了患者中副作用的风险,并且允许安全地使用更高剂量的融合蛋白,从而增加治疗的效力。这一结果在包含igg1 fc结构域的本发明的融合蛋白的情况下尤为令人惊讶,因为文献表明igg1 fc结构域比igg4 fc结构域(例如存在于seq id no: 20或34中的igg4 fc结构域)更具免疫原性(参见例如wang w,maliepaard jcl, damelang t, vidarsson g, heck ajr, reiding kr. human iggsubclasses differ in the structural elements of their n-glycosylation. acscent sci. 2024 oct 10;10(11):2048-2058 and lai pk, ghag g, yu y, juan v,fayadat-dilman l, trout bl. differences in human igg1 and igg4 s228pmonoclonal antibodies viscosity and self-interactions: experimentalassessment and computational predictions of domain interactions. mabs. 2021jan-dec;13(1):1991256)。特别地,与igg4 fc结构域相比,igg1 fc结构域的免疫原性增加可以归因于以下因素中的一种或多种:
5、- igg1的fc区与激活型fc受体(例如fcγriiia)的结合与igg4相比更强;
6、- igg4更有效地结合fcγriib抑制性受体,这可以抑制免疫激活。这种减少的激活使得igg4免疫原性更低,并且不太可能诱导炎症反应;
7、- igg4的独特之处在于它具有进行“fab臂交换”的倾向,其中不同igg4分子的重链互换,产生具有不同抗原结合臂的抗体。这降低了fc区的同质性,这可以有助于降低被免疫系统识别为外来物的可能性。另一个方面,igg1具有更稳定的结构,并且不进行这种fab臂交换,使其更容易识别,这可以引发细胞因子反应的上调。
8、此外,本发明人已经出人意料地发现,包含lalapg和yte突变组合的融合蛋白与不包含这种突变组合的等效融合蛋白相比,或与仅包含yte突变的融合蛋白相比,以及与seqid no: 20或34的融合蛋白相比,具有增加的半衰期。增加的半衰期可以减少给药频率和降低给药剂量,从而提高患者的依从性并且降低治疗成本。
9、最后,本发明人已经出人意料地发现,包含lalapg和yte突变组合的融合蛋白与不包含这些突变组合的等效蛋白相比,在纯化后显示出增加的产量。
10、因此,在一个方面,本发明提供了一种融合蛋白,该融合蛋白包含:
11、(i) 免疫球蛋白igg fc结构域,和
12、(ii) α1-抗胰蛋白酶(aat)多肽,
13、其中aat多肽共价融合至igg fc结构域的n-末端或c-末端,并且其中:
14、(a) fc结构域包含对应于l234a或f234a、l235a和p329g的突变;
15、(b) fc结构域包含对应于m252y、s254t和t256e的突变;和/或
16、(c) 融合蛋白包含fc结构域与aat多肽之间的接头,其中接头包含至少5个氨基酸,任选地其中接头是甘氨酸-丝氨酸接头和/或包含seq id no: 24的氨基酸序列。
17、在第二方面,本发明提供了一种二聚体,该二聚体包含本发明的融合蛋白和第二蛋白。
18、在第三方面,本发明提供了一种载体,该载体包含编码本发明的融合蛋白或二聚体的核酸序列。
19、在第四方面,本发明提供了一种宿主细胞,该宿主细胞包含或表达本发明的融合蛋白、二聚体或载体。
20、在第五方面,本发明提供了一种药物组合物,该药物组合物包含本发明的融合蛋白、二聚体、载体或宿主细胞。
21、在第六方面,本发明提供了本发明的融合蛋白、二聚体、载体、宿主细胞或药物组合物,其用于治疗或预防疾病或病症的方法中。
22、在第七方面,本发明提供了一种治疗或预防疾病或病症的方法,该方法包括向对象施用本发明的融合蛋白、二聚体、载体、宿主细胞或药物组合物。
23、在第八方面,本发明提供了本发明的融合蛋白、二聚体、载体、宿主细胞或药物组合物在制备药物中的用途,所述药物用于治疗或预防疾病或病症的方法中。
24、在第九方面,本发明提供了一种抑制细胞中adam-17的方法,该方法包括使细胞与本发明的融合蛋白、二聚体、载体、宿主细胞或药物组合物接触。
25、在第十方面,本发明提供了一种促进对象中pns的轴突的髓鞘再生和/或阻止其脱髓鞘的方法,该方法包括向对象施用本发明的融合蛋白、二聚体、载体、宿主细胞或药物组合物。
26、在第十一方面,本发明提供了一种生产本发明的融合蛋白或二聚体的方法。
27、在第十二方面,本发明提供了一种纯化本发明的融合蛋白或二聚体的方法。
28、本发明提供了一种用于预防和/或治疗神经系统疾病或病症的融合蛋白,其中所述融合蛋白包含:
29、(i) 免疫球蛋白igg fc结构域、其变体或片段,以及
30、(ii) α1-抗胰蛋白酶(aat)多肽、其变体、同工型和/或片段,
31、其中aat多肽、变体、同工型和/或其片段共价融合至igg fc结构域、其变体或片段的n-末端或c-末端。
32、本发明还提供了一种编码本发明的融合蛋白的核酸序列。
33、本发明提供了一种载体,该载体包含编码本发明中任一项用途的融合蛋白的核酸序列。
34、本发明还提供了一种宿主细胞,该宿主细胞包含或表达本发明用途的融合蛋白或本发明的载体。
35、本发明还提供了一种药物组合物,该药物组合物包含治疗有效量的i)本发明用途的融合蛋白,ii)本发明的载体或iii)本发明的宿主细胞,以及至少一种药学上可接受的赋形剂、稀释剂、载剂、盐和/或添加剂。
36、本发明还提供了一种治疗和/或预防神经系统疾病或病症的方法,该方法包括向有此需要的对象施用本发明的融合蛋白或本发明的药物组合物。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com