
基于TasR的内源性基因转录激活融合蛋白、系统及应用
本发明属于基因工程,尤其涉及一种基于tasr的内源性基因转录激活融合蛋白、系统及应用。
背景技术:
1、转录激活工具是在不改变基因组序列的前提下,通过靶向基因的启动子或增强子区域,上调内源性基因的表达水平。这种工具通常由两部分组成:一是具备dna定位能力的效应蛋白载体,二是负责启动转录的激活结构域。通过这两者的结合,可以模拟细胞内的天然转录过程,实现对特定基因的功能增强或补偿,在疾病治疗、细胞重编程和代谢工程中具有巨大的应用价值。
2、目前,基于crispr技术的转录激活系统(crispra)是该领域的主流。其中,dcas9-vpr是应用最为广泛的代表性工具。其利用催化活性失活的cas9蛋白(dcas9)作为定位支架,通过向导rna(sgrna)指引其结合到靶dna位点。其末端融合了高效的复合激活域vpr(由vp64、p65和rta三个转录激活因子串联而成)。dcas9-vpr通过转录招募,能够将目标基因的表达量提升数十甚至数千倍。典型的spcas9蛋白包含约1368个氨基酸(基因长度约4.1kb),加上大型激活域vpr(约1.2-1.5 kb)及调控元件后,总长度远超腺相关病毒(aav)的包装限度。这迫使研究者必须使用双载体系统,不仅增加了生产成本,也降低了体内的转导效率和稳定。crispr/cas系统必须识别特定的邻近偏好基序(pam)才能结合dna。在基因组某些富含at或特定的调控关键区域,常因缺乏合适的pam序列而导致工具“无法着陆”,限制了全基因组范围内的灵活覆盖。在内源性染色质的紧密结构中,部分效应器由于缺乏额外的dna锚定能力,往往难以稳定结合在目标位点,导致激活效率波动。
3、在临床转化过程中,腺相关病毒(aav)是目前体内给药的首选载体,但其有效载荷能力严格受限,通常小于4.7 kb至5 kb。最常用的spcas9蛋白由1368个氨基酸组成(基因序列约4.1 kb),当其与vpr激活结构域、启动子及sgrna表达单元结合构建转录激活体系时,其总长度远超单个aav的承载限度。为了绕过这一限制,现有技术常采用双载体递送系统(将系统拆分包装在两个独立aav中),但这导致转导效率大幅下降、生产成本倍增,且在体内的重组过程增加了临床应用的复杂性。虽然已有sacas9等紧凑型蛋白被开发,但其在融合大型激活域后,依然难以实现完美的单载体包装。
4、另一方面,传统的crispr/cas系统(包括cas9、cas12等)高度依赖邻近偏好基序(pam)才能结合dna,使得基因组中某些富含at或特定调控区域无法被靶向。即便开发出的tale系统设计灵活,但其重复序列在aav包装过程中极易发生同源重组导致失效。因此,寻找一种既能实现小型化单载体递送,又能摆脱pam限制的全基因组覆盖工具,是当前基因调控领域的紧迫需求。
5、近年来,比较基因组学与结构生物学的深入研究揭示,crispr-cas系统的rna引导dna靶向机制并非自然界唯一的范式。2024年,张锋团队采用基于蛋白质语言模型的创新计算挖掘策略,从宏基因组数据库中识别并报道了一类全新的rna引导系统——tigr-tas系统。该系统广泛存在于细菌和噬菌体基因组中,与已知的crispr-cas系统在序列上无明显同源性,代表了一条独立于crispr的rna引导机制进化路径。
6、tigr-tas系统由两个核心组分构成:(1)tigr阵列——基因组中由重复序列和间隔序列组成的区域,转录后被加工成约36个核苷酸长度的成熟向导rna,称为tigrna;(2)tas效应蛋白——该蛋白家族体积显著小于cas蛋白,平均分子量仅为cas9的约四分之一(约350-500个氨基酸)。根据融合的核酸酶结构域不同,tas蛋白主要分为三类:tasa(仅含nop结构域)、tash(nop结构域融合hnh核酸酶结构域)和tasr(nop结构域融合ruvc核酸酶结构域)。其中,tasr蛋白通过其ruvc结构域实现对dna双链的交错切口切割,产生粘性末端产物,与cas9产生的平末端切割模式形成鲜明对比。
7、与crispr-cas系统不同,tigr-tas系统的tas蛋白在识别和结合dna时完全不依赖pam序列,理论上可靶向基因组中的任意位置,实现了真正的全基因组范围无限制靶向。然而,尽管tigr-tas系统具有上述天然优势,但目前的初步研究表明,天然tasr蛋白在人类细胞中的基因编辑活性极为有限。文献报道显示,tatasr和partasr在多个基因位点诱导的基因编辑平均效率不足3%,最高编辑效率仅为3.6%。这一极低的天然活性严重制约了tigr-tas系统向转录激活等基因调控应用方向的转化。因此,亟需通过蛋白质工程手段对tasr进行系统性改造,以充分挖掘其作为转录激活工具的应用潜力。
8、除了上述天然活性低下的问题外,将tasr蛋白开发为实用的基于tasr的内源性基因转录激活工具还面临以下技术瓶颈:
9、(1)激活结构域的适配问题:天然tasr仅为核酸酶,不具备转录激活功能,需融合外源转录激活结构域(如vpr)以获得激活能力。但如何在不破坏tasr蛋白天然构象和dna结合能力的前提下高效融合激活结构域,尚缺乏系统的实验指导;
10、(2)染色质屏障问题:内源性基因的启动子区域通常位于紧密的染色质结构中,单纯依靠tasr蛋白的dna结合亲和力可能不足以稳定结合在染色质环境下的靶位点,导致激活效率波动甚至失活;
11、(3)改造策略的未知性:tasr蛋白的nop结构域和ruvc结构域在功能上高度耦联,对任一结构域进行突变或融合外源片段都可能影响蛋白的整体构象和功能。如何在保持蛋白正确折叠的前提下实现活性增强,需要精确的分子设计。
技术实现思路
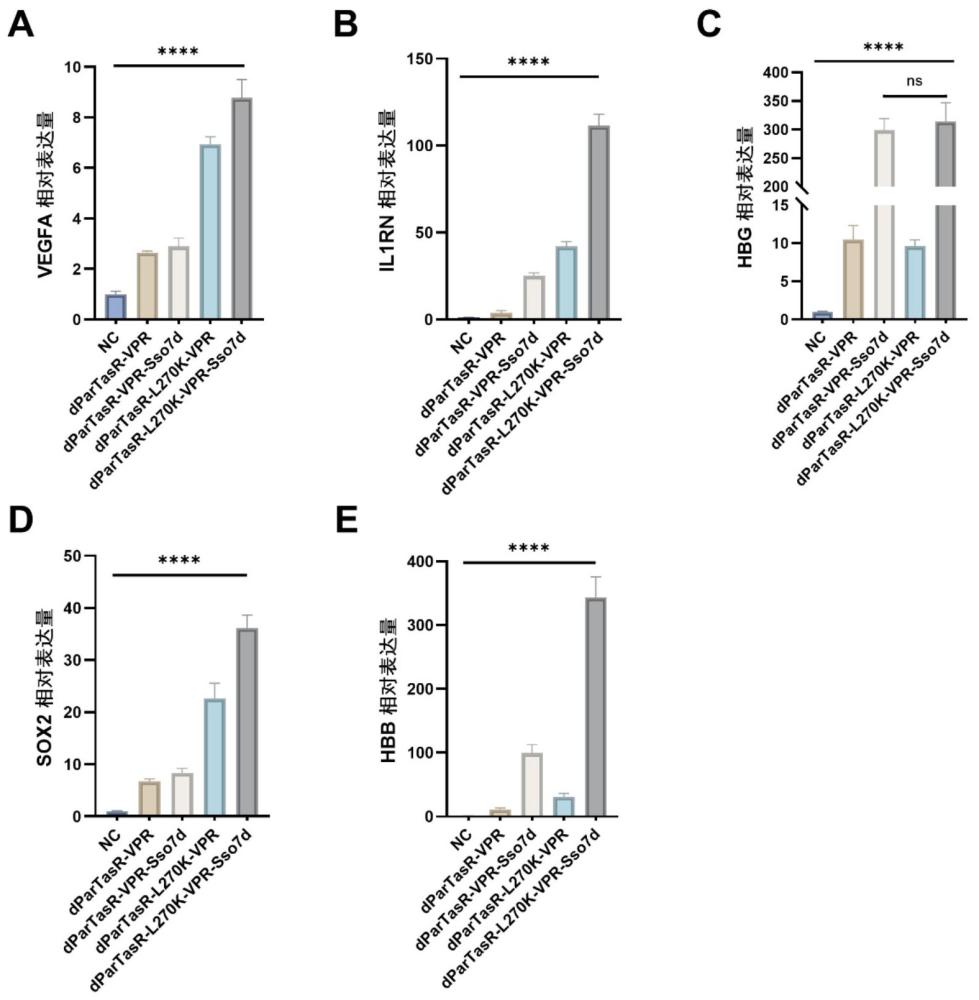
1、本发明的目的在于提供一种基于tasr的内源性基因转录激活融合蛋白、系统及应用,旨在解决背景技术中提出的问题。
2、针对上述问题,本发明通过以下技术方案实现:
3、基于tasr的内源性基因转录激活融合蛋白,其包含partasr蛋白的失活变体、转录激活结构域和非特异性dna结合蛋白;所述partasr蛋白的失活变体包含ruvc结构域的失活突变;所述非特异性dna结合蛋白融合于partasr蛋白的失活变体的c端。
4、进一步,所述partasr蛋白的失活变体还包含nop结构域的增强突变;所述增强突变为对应于partasr蛋白第270位亮氨酸突变为赖氨酸的突变。
5、进一步,所述ruvc结构域的失活突变为对应于partasr蛋白第7位天冬氨酸突变为丙氨酸的突变。
6、进一步,所述转录激活结构域为vpr,其由vp64、p65和rta三个转录激活因子串联组成。
7、进一步,所述非特异性dna结合蛋白为sso7d。
8、进一步,所述融合蛋白的氨基酸序列如seq id no:1所示。
9、本发明的另一个目的在于提供一种编码基因,其用于编码上述的基于tasr的内源性基因转录激活融合蛋白。
10、本发明的另一个目的在于提供一种表达载体,其包含上述的编码基因。
11、本发明的另一个目的在于提供一种基于tasr的内源性基因转录激活系统,其包括:
12、上述的基于tasr的内源性基因转录激活融合蛋白、或上述的编码基因、或上述的表达载体;
13、一种或多种tigrna,所述tigrna用于引导融合蛋白靶向目标基因的启动子或增强子区域。
14、本发明的另一个目的在于提供一种上述的基于tasr的内源性基因转录激活融合蛋白、或上述的编码基因、或上述的表达载体、或上述的基于tasr的内源性基因转录激活系统在制备用于一种或多种基于tasr的内源性基因转录激活的产品中的应用。
15、本发明提供的基于tasr的内源性基因转录激活融合蛋白,利用天然体积仅为cas9约1/4的效应蛋白tasr作为载体,其具备完全不依赖pam序列的特性,能够实现真正的全基因组任意位点靶向。本发明通过对tasr进行关键氨基酸突变(l270k)以增强电荷吸引力,并融合非特异性dna结合蛋白以提升在内源性染色质环境下的结合亲和力,最终构建的融合蛋白,在保持微小尺寸的同时,能显著提升对单个或多个内源性基因位点的激活效能,从而为临床基因治疗提供一种更高效、更便携、无序列限制的基因调控工具。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com