
用于生产糖基化化合物的细胞和方法与流程
本公开总体上涉及糖基化化合物的生产。本发明提供了一种用于对化合物(例如萜类化合物)进行酶促糖基化的方法和重组细胞。
背景技术:
1、植物和微生物的次生代谢途径产生大量的小分子,例如萜类化合物、黄酮类化合物和聚酮类化合物。这些分子绝大多数在自然界中以糖苷形式存在,其中糖残基在分子结构复杂度与生物活性方面起着决定性因素的作用。
2、例如,萜类化合物(也称为类异戊二烯)是次级代谢产物中最大的类别之一,普遍存在于植物中。它们主要作为糖苷存在,其中糖部分附接于它们的核心骨架。它们因其多种工业上期望的特性而被认可,例如甜味剂、风味剂、芳香剂、着色剂、药物和营养保健品。
3、萜类化合物衍生自两种异构的五碳化合物,二甲基烯丙基二磷酸(dmapp)和异戊烯基二磷酸(ipp)。在植物中,dmapp和ipp通过两种不同且独立的生化途径合成,即位于细胞质中的甲羟戊酸(mva)途径和位于质体中的2-c-甲基-d-赤藓糖醇4-磷酸(mep)途径。在下游萜类化合物途径中,dmapp和ipp缩合产生香叶基二磷酸(gpp)、法尼基二磷酸(fpp)、香叶基香叶基二磷酸(ggpp)和香叶基法尼基二磷酸(gfpp)。这些异戊二烯基二磷酸中间体被包括萜烯合酶在内的特定酶转化,以产生各种萜类化合物。根据异戊二烯单元的数量,萜类化合物分为c5半萜类化合物、c10单萜类化合物、c15倍半萜类化合物、c20二萜类化合物、c25二倍半萜类化合物、c30三萜类化合物、c40四萜类化合物和c>40多萜类化合物。
4、萜类化合物的示例包括罗汉果苷,其是c30三萜类化合物,最近作为替代性高强度甜味剂获得了重要商业意义。所述化合物存在于
siraitia grosvenorii(又称和尚果、罗汉果或
luohan guo)的果实中,该植物属于葫芦科(
curcubitaceae)家族,并且几乎只生长在中国广西省。罗汉果苷都具有相同的罗汉果醇(mogrol)骨架,但主要区别在于它们的糖基化模式(包括葡萄糖部分的数量)。在植物中,罗汉果苷的糖基化主要由尿苷-5'-二磷酸(udp)-糖基转移酶(ugt)介导,其使用核苷酸活化的糖作为供体(例如udp-葡萄糖),并且典型地催化β-糖苷键的形成。取决于糖基化模式,不同的罗汉果苷化合物之间的甜味水平和味道特征可以变化。罗汉果苷v是罗汉果中发现最丰富的。据估计,它比蔗糖甜几百倍,而提供的热量可忽略不计。其他罗汉果苷(例如罗汉果苷iv、罗汉果苷iii和罗汉果苷ii)也有助于罗汉果的总体甜味,但这些通常不如罗汉果苷v甜,并且它们的甜味可能伴有异味(例如余味、苦味)。最近,从罗汉果中分离出了赛门苷i(si),并被鉴定为具有甚至优于罗汉果苷v的甜味。制造商经常使用罗汉果苷的组合来实现平衡的甜味特征,同时最大限度地减少任何潜在的异味,从而利用每种化合物的强度。
5、随着开发具有定制性质的新型糖基化化合物的需求不断增加,对所述化合物的糖基化模式进行工程化改造已经受到相当大的兴趣。例如,在用作甜味剂的萜类化合物的背景下,已经探索了所述化合物的工程化糖基化以改变它们的味道特征(例如使其更可口并且更接近食糖的味道),以改善它们的甜味和溶解度和/或有助于它们的稳定性和保质期。最近的一个实例是如wo2018204483 a2、wo2020096905 a1、wo2020096907 a1和xu等人(xu
et al. (2021), food chemistry 359:129938)描述的经修饰的罗汉果苷
。所述化合物称为α-赛门苷i或α-si,是通过在体外对罗汉果苷iiie进行酶促α-糖基化得到的,其中罗汉果苷iiie与可溶性淀粉(作为葡萄糖供体)和包含重组环麦芽糊精葡聚糖转移酶(cgtase)的大肠杆菌(
e. coli)的无细胞裂解物接触。与罗汉果苷iiie相比,α-si显示出增加的甜味强度和改善的味道品质,从而促进α-si作为另一种潜在的低热量甜味剂。xu等人还得出结论,α-糖基化与植物中罗汉果苷形成过程中典型地发生的β-糖基化一样,也可以增强罗汉果苷的甜味。
6、用于对化合物(例如萜类化合物)的糖基化进行工程化改造的两种体外和体内生物催化糖基化工具均已经出现。经纯化的生物催化剂是体外方法中的核心成份。然而,以纯的形式获得生物催化剂是费力且昂贵的,并且有时需要固定化以改善它们的活性和稳定性。此外,在一些情况下,例如在用于罗汉果苷糖基化的ugt的情况下,需要昂贵的活化供体分子(例如udp-葡萄糖)。替代性地,用于萜类化合物的生产和糖基化的体内生物催化糖基化工具也已出现。例如,wo2014/086842、wo2016/038617和wo2016/050890描述了能够产生罗汉果醇和/或罗汉果苷的重组细胞和方法。然而,虽然这些重组微生物生产系统似乎适用于生产各种β-糖基化萜类化合物,但它们不适用于生产α-糖基化萜类化合物。
7、从工业角度来看,鉴于全球工业市场日益增长的兴趣,因此仍然需要更稳健的微生物生产系统,其能够以可持续、受控和商业上可行的方式生产各种糖基化化合物(包括α-糖基化和/或β-糖基化萜类化合物)。
8、附图
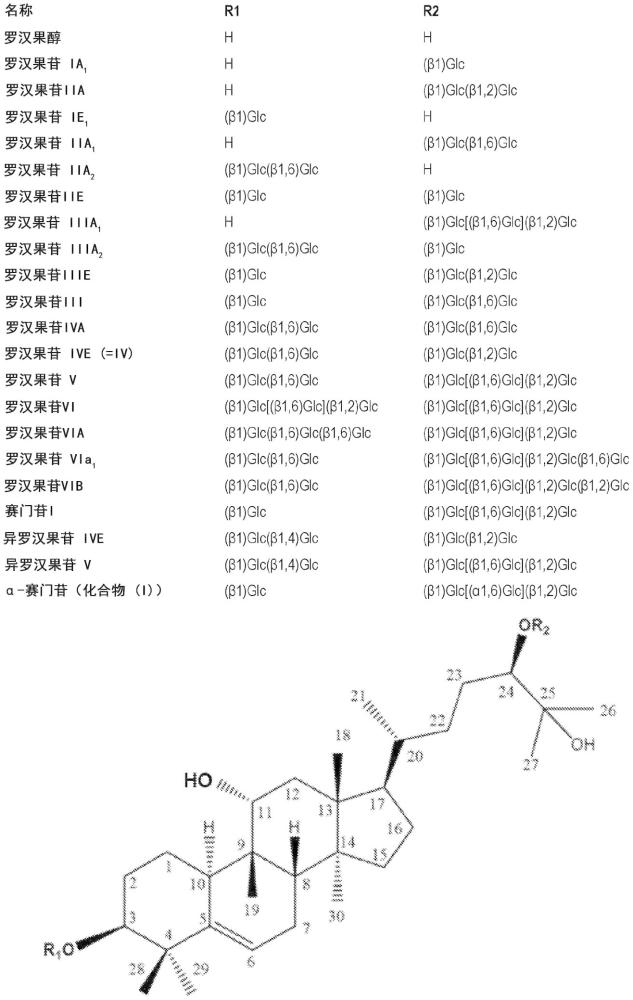
9、图1描绘了若干罗汉果苷化合物的化学结构。
10、图2描绘了从乙酰辅酶a到角鲨烯的生物合成途径。
11、图3描绘了从角鲨烯到罗汉果醇的生物合成途径。
12、图4描绘了从罗汉果醇到罗汉果苷的生物合成途径。
13、图5描绘了从角鲨烯开始生产罗汉果苷的生物合成途径中的若干罗汉果苷前体的化学结构。
14、图6描绘了在根据本公开的重组细胞中可发生的一个或多个反应的示意图。
15、图7描绘了使用m3e作为底物通过各种dext在体外形成化合物(i)。补充的m3e的一部分似乎转化为未经进一步分析的其他组分,导致质量缺口。
16、图8描绘了使用m3e作为底物通过各种截短的dext在体外形成化合物(i)。参考dext(即每个物种中截短最少的dext变体)的化合物(i)生产水平被设定为100%。
17、图9描绘了在存在和不存在α-葡萄糖苷酶的情况下通过各种dext在体外形成化合物(i)。在没有(-)和有(+)α-葡萄糖苷酶(右旋糖酐酶)的情况下处理样品以除去任何α-糖基化化合物(i)。未测量非特异性m3e糖基化和聚α-糖基化化合物(i),这解释了分析中的质量缺口。
18、图10描绘了通过工程化的dext在体外形成化合物(i)。未分析非特异性α-糖基化和聚α-糖基化化合物(i),这解释了分析中的质量缺口。
19、图11描绘了通过
yarrowia lipolytica sir001(其中没有yl-bgl2过表达)和sir002(具有yl-bgl2过表达)生产m3e和赛门苷。
20、图12描绘了使用细胞内(a)、细胞外膜锚定(b)和细胞外(c)定位的dext突变体在体内产生化合物(i)。菌株在不存在(-)或存在(+)蔗糖的情况下培养。化合物(i)产生水平是相对于无蔗糖补充的培养物中产生的m3e水平(其被设定为100%)的。
21、图13描绘了使用细胞外定位的dext变体与(+)过表达的α-糖苷酶(agl)组合或不与(-)过表达的α-糖苷酶(agl)组合在体内产生化合物(i)。包含agl基因的菌株的化合物(i)产生水平是相对于没有过表达的agl的菌株中产生的化合物(i)形成水平(其被设定为100%)的。
22、图14描绘了通过没有异源蔗糖合成基因过表达和具有异源蔗糖合成基因过表达的mog生产菌株原位生产蔗糖。
23、图15描绘了缺乏(-)或包含(+)异源蔗糖合成基因的dext过表达菌株的mog3e和化合物(i)产生。数值相对于没有原位蔗糖合成基因的菌株的m3e产生水平。未测量非特异性m3e糖基化和聚α-糖基化化合物(i),这解释了分析中的质量缺口。
24、序列描述
25、序列的描述列于表1中。
26、
27、
28、
29、
技术实现思路
1、本公开在此提供一种将糖基从糖基供体转移到糖基受体的方法,包括:在合适的条件下使糖基供体和糖基受体与重组细胞接触,所述重组细胞包含、(过)表达或能够(过)表达编码至少一种(异源)酶的多核苷酸,所述(异源)酶能够催化糖基从所述糖基供体转移到所述糖基受体,其中在合适的条件下的所述接触使得所述至少一种(异源)酶能够催化在转移的糖基和所述糖基受体之间糖苷键(例如糖苷键)的形成;从而产生经修饰的糖基受体。典型地,在合适条件下的所述接触允许所述重组细胞表达所述至少一种异源酶。
2、本公开的另一方面在此提供一种生产经修饰的糖基受体的方法,包括:在合适的条件下使糖基供体和糖基受体与重组细胞接触,所述重组细胞包含、(过)表达或能够(过)表达编码至少一种(异源)酶的多核苷酸,所述(异源)酶能够催化糖基从所述糖基供体转移到所述糖基受体和/或其前体,其中在合适条件下的所述接触包括在所述糖基供体和所述糖基受体和/或其前体的存在下在合适的培养基中培养所述重组细胞,可选地,其中在合适条件下的所述接触允许所述重组细胞表达至少一种(异源)酶,其中在合适的条件下的所述接触使得所述至少一种(异源)酶能够催化在转移的糖基和所述糖基受体之间糖苷键(优选地糖苷键)的形成;从而产生经修饰的糖基受体,并且可选地,分离由此产生的经修饰的糖基受体。
3、本公开的另一方面在此提供一种生产经修饰的糖基受体的方法,包括:在合适的条件下使糖基供体和糖基受体与重组细胞接触,所述重组细胞包含、(过)表达或能够(过)表达编码至少一种异源酶的多核苷酸,所述(异源)酶能够催化糖基从所述糖基供体转移到所述糖基受体,其中在合适条件下的所述接触包括使所述重组细胞、所述糖基供体和所述糖基受体和/或其前体在反应混合物中接触,其中在合适的条件下的所述接触使得所述至少一种(异源)酶能够催化在转移的糖基和所述糖基受体之间糖苷键(优选地糖苷键)的形成;从而产生经修饰的糖基受体,并且可选地,分离由此产生的经修饰的糖基受体。可选地,在合适条件下的所述接触允许所述重组细胞表达所述至少一种异源酶。
4、糖苷键典型地是α-糖苷键。经修饰的糖基受体(例如经修饰的萜类化合物)典型地是α-糖基化的糖基受体(例如α-糖基化的萜类化合物)。
5、用于产生经修饰的糖基受体的本公开的方法可以是发酵、生物转化或其组合。
6、在所述方法中,至少一种异源酶可以是胞内酶和/或胞外酶。
7、在所述方法中,重组细胞典型地是活细胞或完整细胞。
8、典型地,在根据本公开的方法中,“在合适的条件下使糖基供体和糖基受体与重组细胞接触”可以如下地发生:
9、a) 所述糖基供体和所述糖基受体在所述重组细胞内部(胞内)发生接触;和/或
10、b) 所述糖基供体和所述糖基受体在所述重组细胞外部(胞外)发生接触。
11、还公开了:
12、-用于在根据本公开的方法中使用的重组细胞,例如包含至少一种异源多核苷酸的重组细胞,所述异源多核苷酸编码至少一种能够催化转糖基化(例如转葡糖基化)反应的酶,所述转糖基化反应是例如糖基从糖基供体(例如蔗糖)转移到糖基受体(例如萜类化合物,诸如罗汉果苷),其中所述重组细胞在能够水解所述糖基供体的酶(例如转化酶)方面是缺陷型的,并且可选地其中所述细胞在β-葡聚糖酶方面是缺陷型的,可选地,其中所述细胞包含至少一种编码α-葡萄糖苷酶的多核苷酸序列和/或至少一种编码β-葡萄糖苷酶的多核苷酸。典型地,至少一种能够催化转糖基化反应的酶是能够催化来自糖基供体(例如蔗糖)的糖基与糖基受体(例如萜类化合物,诸如罗汉果苷)之间的α-糖苷键的酶。
13、-一种反应混合物,其包含根据本公开的重组细胞。
14、-一种培养基,其包含根据本公开的重组细胞。
15、-一种发酵液,其包含根据本公开的重组细胞。
16、-一种通过根据本公开的方法获得或能够获得的组合物。
17、-一种食物产品、饮料、宠物食品、饲料、口服组合物或药物组合物,其包含根据本公开的所述的组合物。
18、-根据本公开的重组细胞用于产生经修饰的糖基受体(例如经修饰的萜类化合物,诸如经修饰的罗汉果苷),例如α-糖基化糖基受体(例如α-糖基化萜类化合物,诸如α-糖基化罗汉果苷)的用途。
19、在本公开的一个实施方式中,α-糖基化糖基受体是α-糖基化罗汉果苷,更特别是α-1,6-糖基化罗汉果苷iiie。
20、优选地,α-糖基化罗汉果苷是具有以下结构的化合物(i)(cas 2419125-32-7):
21、
22、一般定义
23、为了能够更容易地理解本公开,首先对某些术语和方法进行定义。如本技术中所使用的,除非本文另外明确提供,否则以下术语中的每一个应具有以下阐述的含义。附加的定义在本技术全文中列出。如有冲突,以本技术(包括定义)为准。除非上下文另有要求,否则单数术语应包括复数,复数术语应包括单数。出于所有目的,本文提及的所有出版物、专利和其他参考文献通过引用整体并入本文,如同每个单独的出版物或专利申请被具体地且单独地指明通过引用并入一样。
24、除非另有定义,否则本文使用的所有技术和科学术语具有与本公开相关领域的普通技术人员通常理解的相同的含义。
25、尽管与本文所述的方法和材料类似或等同的方法和材料可以用于本公开的实践或测试中,但是在下文中描述了合适的方法和材料。材料、方法和示例仅是说明性的,而不是限制性的。本公开的其他特征和优点将从具体实施方式和权利要求书中变得明显。
26、在整个本公开中,词语“包含”、“包括”和“具有”以及变体(诸如“含有”)应被解释为包括性的。也就是说,在上下文允许的情况下,这些词语旨在表达可能包括未具体叙述的其他元素或整数。
27、如本公开和权利要求书中所使用的,单数形式“一个”、“一种”和“所述”以及不使用数量词的情形包括复数形式,除非上下文另外明确指出。作为示例,“an element(一个要素)”可指一个要素或多于一个要素,即“至少一个要素”。
28、术语“约”是指对于如本领域普通技术人员所确定的特定值或组成在可接受的误差范围内的值或组成,这将部分地取决于如何测量或确定值或组成,即测量系统的限制。例如,根据本领域的实践,“约”可以意指在1个或多于1个标准偏差内。或者,“约”可以意指至多20%的范围。此外,特别是关于生物系统或过程,这些术语可以表示高达一个数量级或高达5倍的值。当在申请和权利要求书中提供特定值或组成时,除非另有说明,否则“约”或“基本上包含”的含义应假定在该特定值或组成的可接受误差范围内。
29、除非具体说明或从上下文中明显可见,否则如本文所用,术语“或”应理解为包括性的。本文中诸如“a和/或b”的短语中使用的术语“和/或”旨在包括“a和b”、“a或b”、“a”和“b”两者。同样,在诸如“a、b和/或c”的短语中使用的术语“和/或”旨在涵盖以下实施方式中的每一个:a、b和c;a、b或c;a或c;a或b;b或c;a和c;a和b;b和c;a(单独);b(单独);和c(单独)。
30、如本文所定义的“细胞”是适于遗传操纵的有机体,并且可以以可用于工业生产目标产物的细胞密度培养的生物体。合适的生物体可以是微生物,例如可以维持在发酵装置中的微生物。关于本公开,应当理解,细胞(例如微生物、真菌、藻类或植物)还包括具有相同生理特性的此类物种的同义词或基本同义词,如由原核生物的国际命名法(internationalcode of nomenclature of prokaryotes)或藻类、真菌和植物的国际命名法(墨尔本编码)(international code of nomenclature for algae, fungi, and plants (melbournecode))所定义的。细胞可以是自然界中发现的细胞或在遗传操纵或经典诱变后衍生自亲本细胞的细胞。
31、根据本文在细胞的背景下公开的各个方面和实施方式,本发明优选地不包括用于克隆人的方法、用于修饰人的种系遗传身份的方法和/或用于工业或商业目的的人胚胎的用途。
32、“核酸分子”或“多核苷酸”(术语在本文中可互换使用)由核苷酸序列表示。
33、“多肽”由氨基酸序列表示。
34、当用于提及多核苷酸或多肽时,术语“表达”是指多肽产生中涉及的任何步骤,包括但不限于转录、转录后修饰、翻译、翻译后修饰和分泌。当用于提及基因时,术语“组成型表达”是指其中基因表达受允许连续基因转录的组成型启动子控制的情况。当用于涉及基因时,术语“诱导型表达”是指调节基因表达的方式,其中称为诱导物的分子通过以下方式来调节基因的表达:a)结合基因启动子阻遏物蛋白或b)结合基因启动子激活物分子,因此允许rna聚合酶进行基因转录。
35、“基因的表达”包括“异源表达”和“过表达”,并且涉及基因的转录和mrna翻译成多肽(例如酶)。过表达是指通过转基因细胞或生物体中的mrna、多肽和/或酶活性水平测量的基因产物的产生,其超过了具有相似遗传背景的非转化细胞或生物体中的产生水平。
36、本文中,“基因”被定义为包含开放阅读框(orf)及其转录控制序列的多核苷酸。orf是基因上编码多肽(例如酶)并且将被转录和翻译成所述多肽的多核苷酸区域。
37、如本文所用,术语“控制序列”是指参与调节编码序列在特定生物体中或体外的表达的组分。控制序列的示例是转录起始序列、终止序列、启动子、前导序列、信号肽、前肽、前前肽或增强子序列;shine-delgarno序列、阻遏物或激活物序列;有效的rna加工信号,例如剪接和聚腺苷酸化信号;稳定细胞质mrna的序列;增强翻译效率的序列(例如核糖体结合位点);增强蛋白质稳定性的序列;以及当需要时,增强蛋白质分泌的序列。
38、如本文所用,术语“可操作地连接”是指多核苷酸要素(包含例如编码序列或另一多核苷酸序列)以功能关系的连接。当将多核苷酸置于与另一多核苷酸的功能关系中时,多核苷酸是“可操作地连接”的。例如,如果启动子序列或增强子序列影响编码序列的转录,则启动子序列或增强子序列可操作地连接至该编码序列。
39、如本文所用,术语“启动子”是指起到控制一个或多个基因转录的功能的多核苷酸片段,其位于基因的转录起始位点的转录方向的上游,并且在结构上通过以下来识别:存在dna依赖性rna聚合酶的结合位点、转录起始位点和任何其他多核苷酸片段,所述多核苷酸片段包括但不限于转录因子结合位点、阻遏物和激活物蛋白结合位点,以及本领域技术人员已知的直接或间接地起作用以调节来自启动子的转录量的任何其他核苷酸序列。“组成型”启动子是在大多数环境和发育条件下都有活性的启动子。“诱导型”启动子是在可被调节的特定环境或发育条件下具有活性的启动子。
40、当用于指示给定(重组)多核苷酸(诸如dna或rna)或多肽与给定宿主生物体或宿主细胞(诸如本文公开的细胞)之间的关系时,术语“同源的”或“内源的”应理解为意指在自然界中多核苷酸或多肽分子由相同物种(诸如相同品种或菌株)的宿主细胞或生物体产生。
41、当关于多核苷酸(例如dna或rna)或多肽使用时,术语“异源的”是指不作为宿主细胞(例如本文公开的细胞)的一部分天然存在的多核苷酸或多肽。换句话说,异源多核苷酸或多肽对于其被引入的细胞而言不是内源性的,而是已从另一细胞获得或合成或重组产生的。
42、如本文所用,术语“天然存在的”是指在自然界中以其相关形式发生或存在的过程、事件或产物。相比之下,“非天然存在的”是指其存在或形成涉及人为的过程、事件或产物。术语“非天然存在的”在本文中与“人造的”同义。通常,关于多肽或核酸的术语“天然存在的”可以与术语“野生型”或“天然的”互换使用。它是指分别具有与自然界中发现的氨基酸序列或多核苷酸序列相同的氨基酸序列或多核苷酸序列的多肽或编码多肽的核酸。天然存在的多肽包括天然多肽,例如在特定细胞中天然表达或发现的那些多肽。天然存在的多核苷酸包括天然多核苷酸,例如在特定细胞的基因组中天然发现的那些多核苷酸。另外,野生型或天然存在的序列可以指衍生出变体或合成序列的序列。
43、术语“衍生自”还包括术语“起源于”、“获得自”、“可获得自”、“分离自”和“产生自”,并且通常指示一种指定材料在另一种指定材料中找到其起源或具有可参考另一种指定材料描述的特征。如本文所用,“衍生自”细胞的物质(例如,核酸分子或多肽)优选意指该物质是该微生物的天然物质。
44、术语“重组”与“遗传修饰的”同义。当关于多核苷酸或多肽使用时,术语“重组”表示如果与其天然形式相比,该多核苷酸或多肽在其序列中已经通过人为干预而被修饰。当提及细胞时,术语“重组”指示如果与其天然形式相比,该细胞在其序列中已经通过人为干预而被遗传修饰或用一种或多种多核苷酸转化/转染。一种或多种多核苷酸的存在改变微生物产生一种或多种产物的能力。
45、如本文所用,“重组细胞”定义为这样的细胞,其优选地是用如本文别处所定义的一种或多种多核苷酸进行遗传修饰或转化/转染的。一种或多种此类多核苷酸的存在改变了微生物产生一种或多种产物的能力。未经转化/转染或遗传修饰的细胞不是重组细胞,并且典型地不包含一种或多种使细胞能够产生产物的多核苷酸。因此,非经转化/非转染的细胞通常是不天然产生产物的细胞,尽管如此,天然产生产物并且已经如本文公开的那样进行修饰的细胞被认为是如本文公开的重组细胞。
46、当用于提及细胞时,术语“在多肽(例如酶)(的产生)方面是缺陷型的”典型地意指细胞包含修饰(优选地在其基因组中),当在相同条件下分析时,如果与未被修饰的亲本细胞相比,所述修饰导致多肽(例如酶)的产生减少或不产生。替代性地,或除此之外,细胞包含修饰,当在相同条件下分析时,如果与未被修饰的亲本细胞相比,该修饰导致衍生自本文所描述多肽的多肽具有降低的活性或没有活性(该活性可以是酶活性或其他生物活性)。在此上下文中,当以下情况时,细胞在如本文所述的多肽(的产生)方面是缺陷型的:当在相同条件下分析时,如果与未被修饰的细胞相比,a)其产生较少的如本文所定义的多肽或其不产生如本文所定义的多肽;和/或b)从编码所述多肽的基因转录的mrna具有降低的表达水平或具有降低的翻译水平;和/或c)其产生活性降低或无活性的多肽。
47、在细胞中在如本文所定义的多肽的产生方面的缺陷可以通过如下进行测量:如果与在其基因组中没有被修饰的亲本细胞相比,通过确定由在其基因组中修饰的细胞产生的相关多肽的量和/或(比)活性来测量,和/或通过确定从编码多肽的基因转录的(游离)mrna的量来测量,和/或通过确定由在其基因组中修饰的细胞中由多肽产生的产物的量来测量,和/或通过基因或基因组测序来测量。在所述多肽的生产方面的缺陷可以使用技术人员可用的任何测定来测量,例如转录谱分析、northern印迹、rt-pcr、q-pcr和western印迹。
48、在本公开的上下文中,当用于提及细胞时,术语“在多肽(例如酶)(的产生)方面是缺陷型的”还可以意指细胞天然缺乏所述多肽(例如酶)。例如,
yarrowia lipolytica天然地不能代谢蔗糖,因为它缺乏裂解二糖所需的转化酶(或在裂解二糖所需的转化酶方面是缺陷型的)。
49、措辞“在相同条件下测量”或“在相同条件下分析”意指在相同条件下培养经修饰的细胞和未修饰的细胞,并且与未修饰的细胞相比,在经修饰的细胞和未修饰的细胞中分别使用相同的条件(优选地通过使用相同的测定和/或方法,更优选在相同的实验内)测量其中经修饰的细胞缺乏或过表达的多肽的量和/或活性。
50、如本文所定义,“能够催化糖基从糖基供体(例如蔗糖)转移到糖基受体(例如萜类化合物)的酶”是指能够催化转糖基化反应的酶。所述酶优选属于糖苷水解酶家族70(gh70)、糖苷水解酶家族13(gh13)和/或糖苷水解酶家族77(gh77)。gh70酶参与α-葡聚糖的合成,α-葡聚糖是由α-连接的葡萄糖单元组成的多糖。gh70酶的实例包括葡聚糖蔗糖酶(e.c. 2.4.1.5),其是从蔗糖合成各种葡聚糖的酶。gh13酶包括转糖苷酶。gh13酶的实例包括环麦芽糊精葡聚糖转移酶或cgtase(e.c. 2.4.1.19),其典型地裂解底物(例如淀粉)中的α-1,4-葡糖苷连接键以在受体分子(例如萜类化合物)中产生新的α-1,4-葡糖苷键。gh77家族与gh13家族有关。
51、在本公开的上下文中,术语“糖基化”或“糖基化反应”是指酶催化的反应,其中糖基(典型地通过此类糖基中的异头碳)共价连接至另一分子(即糖基受体)的羟基或其他官能团;从而导致糖苷键的形成。根据官能团的不同,存在不同类型的糖基化,包括n-糖基化、s-糖基化和o-糖基化。在本公开的上下文中,糖基化典型地是o-糖基化,并且糖苷键典型地是o-糖苷键。
52、术语“转糖基化”或“转糖基化反应”是指特定类型的糖基化反应,其涉及将糖基从一个分子(即,糖基供体,诸如蔗糖)转移到含有羟基或其他官能团的另一个分子(即,糖基受体,诸如萜类化合物);从而导致糖苷键的形成。酶促转糖基化可以由糖基转移酶和糖苷水解酶(也称为糖苷酶)催化。
53、术语“糖基”在本文中用于指糖分子(例如葡萄糖分子)或糖部分(例如葡萄糖部分)。
54、在本公开的上下文中,术语“糖基供体”、“糖基供体分子”、“供体分子”、“糖供体”、“葡萄糖供体”、“糖供体分子”、“葡萄糖供体分子”可以互换使用。“糖基供体”在本文中用于指在糖基化反应(例如,转糖基化反应)中提供糖基的分子。糖基供体可以是活化的供体(即糖核苷酸,例如udp-葡萄糖或gdp-甘露糖)或非活化的糖(即具有一个或多个糖苷键的糖或聚糖,例如蔗糖、乳糖、淀粉)。
55、术语“糖基受体”或“糖基受体分子”或“受体分子”(例如萜类化合物或糖基化萜类化合物)在本文中用于指在糖基化反应(例如转糖基化反应)过程中接收糖基的分子。在糖基化反应中,糖基受体通常含有能够与糖基反应的官能团(例如羟基)。所得反应在糖基供体和糖基受体之间形成糖苷键。
56、术语“糖苷键”,特别是“o-糖苷键”,在本文中用于指在糖基供体(例如葡萄糖部分的c1)的异头碳原子与糖基受体分子(通常是另一种糖(例如葡萄糖)或非糖部分(例如罗汉果骨架))的氧原子之间形成的一种类型的共价键。所述糖苷键典型地通过当糖分子的异头碳上的羟基与受体分子的羟基或羧基反应(导致水分子的消除)时的缩合反应形成。
57、形成的糖苷键的具体类型取决于连接中涉及哪个羟基(-oh)基团和异头碳的取向。两种常见类型的糖苷键是α-糖苷键和β-糖苷键。在“α-糖苷键”中,糖分子的异头碳上的-oh基团取向在环的平面下方。这导致连接的取代基向下突出。在“β-糖苷键”中,糖分子的异头碳上的-oh基团取向在环的平面上方。这导致连接的取代基向上突出。
58、在α-x,y-糖苷键中,数字x和y是指糖苷键中涉及的碳原子。例如,在α-1,6-糖苷键中,该键可以在一个糖分子的1位(c1;x=1)处的异头碳和另一个糖分子的6位(c6;y=6)处的碳上连接的羟基之间形成,其中该键呈α构型。
59、在本公开的上下文中,术语“萜类化合物”、“类萜类化合物”、“类异戊二烯”、“类异戊二烯化合物”、“萜烯”、“萜烯化合物”在本文中可互换使用。“萜类化合物”是指衍生自两种异构的五碳化合物(二甲基烯丙基二磷酸(dmapp)和异戊烯基二磷酸(ipp))的化合物。在植物中,dmapp和ipp通过两种不同且独立的生化途径合成,即位于细胞质中的甲羟戊酸(mva)途径和位于质体中的2-c-甲基-d-赤藓糖醇4-磷酸(mep)途径。在下游萜类化合物途径中,dmapp和ipp缩合产生异戊二烯基二磷酸底物,例如香叶基二磷酸(gpp)、法尼基二磷酸(fpp)、香叶基香叶基二磷酸(ggpp)和香叶基法尼基二磷酸(gfpp)。这些异戊二烯基二磷酸(prenyl diphosphate)中间体被萜烯合酶利用以产生各种萜类化合物。根据异戊二烯单元的数量,萜类化合物分为c5半萜类化合物、c10单萜类化合物、c15倍半萜类化合物、c20二萜类化合物、c25二倍半萜类化合物、c30三萜类化合物、c40四萜类化合物和c>40多萜类化合物。萜类化合物的示例包括罗汉果苷,其是c30三萜类化合物,最近作为替代性高强度甜味剂获得了重要商业意义。
60、术语“罗汉果苷”和“罗汉果苷化合物”在本文中可互换使用,并且是指c30三萜糖苷家族。罗汉果苷的非限制性示例性实例包括诸如罗汉果苷v、赛门苷i、罗汉果苷ive、异罗汉果苷v、罗汉果苷iiie、11-脱氧-罗汉果苷v、11-氧代-罗汉果苷v、罗汉果苷vi、罗汉果苷iva、罗汉果苷iia、罗汉果苷iia1、罗汉果苷iia2、罗汉果苷ia、11-氧代-罗汉果苷vi、11-氧代-罗汉果苷iiie、11-氧代罗汉果苷ive、罗汉果苷ie、罗汉果醇、11-氧代罗汉果醇、罗汉果苷iie、罗汉果苷iiia2和罗汉果苷iii,它们已从罗汉果(
siraitia grosvenorii)(swingle)的果实中鉴定出,其负责果实的甜味。
61、在本公开的上下文中,术语“经修饰的糖基受体”(例如“经修饰的萜类化合物”或“经修饰的罗汉果苷”)是指用至少一个另外的糖基基团修饰的糖基受体(例如萜类化合物或罗汉果苷)。糖基受体可以在多个位置处被修饰。修饰可以涉及不同类型的糖苷键(例如α-糖苷键和/或β-糖苷键)。
62、如本文所用,术语“异戊二烯基二磷酸”与“异戊二烯基焦磷酸”可互换使用。
63、“甲羟戊酸盐/酯途径”(“mevalonate pathway”)或“甲羟戊酸途径”(也称为“类异戊二烯途径”或“hmg-coa还原酶途径”)是存在于真核生物、古菌和一些细菌中的必需代谢途径。甲羟戊酸途径始于乙酰-coa,并产生两个五碳结构单元,称为异戊烯基焦磷酸(isopentenyl pyrophosphate,ipp)和二甲基烯丙基焦磷酸(dmapp)。关键酶是乙酰乙酰-coa硫化酶(图2中表示为aact)、hmg-coa合酶(图2中表示为hmgs)、hmg-coa还原酶(图2中表示为hmgr)、甲羟戊酸激酶(图2中表示为mvk)、磷酸甲羟戊酸激酶(图2中表示为pmvk)、甲羟戊酸二磷酸脱羧酶(图2中表示为mdd)和异戊烯基二磷酸异构酶(图2中表示为ipi)。
64、术语“萜烯合酶”是指催化异戊二烯基二磷酸底物(例如香叶基二磷酸(gpp)、法尼基二磷酸(fpp)、香叶基香叶基二磷酸(ggpp)和香叶基法尼基二磷酸(gfpp))的环化的酶,导致形成各种(多)环萜烯结构。萜烯合酶根据其产生的产物类型分为不同的类型。例如,单萜合酶产生单萜,倍半萜合酶产生倍半萜,并且二萜合酶产生二萜。根据结构和催化性质,萜烯合酶也可以分为两类,即i型和ii型。i型酶具有催化所需的高度保守的ddxxd基序(α结构域)和不太保守的nse/dte基序金属(mg2+或mn2+)结合结构域。ii型酶在n-端附近具有dxdd基序(β结构域),这对于ggpp的质子化和环化以转化为二磷酸铜酰/环状二萜二磷酸至关重要。发现另一个保守基序r(r)x8w位于许多tps基因n端的下游。萜烯合酶也根据其基因结构进行分类,其中i类包含12-14个内含子,ii类包含9个内含子,iii类包含6个内含子。根据最近基于序列相似性和功能特征的分类,tps基因家族可以进一步分类为八个亚家族,即tps-a、tps-b、tps-c、tps-d、tps-e、tps-f、tps-g和tps-h,其中tps-c属于ii型tps,其他属于i型。
65、当提及化合物时,术语“前体”是在代谢途径或合成过程中在另一种化合物之前的化合物。换句话说,前体分子可以通过一个或多个化学反应步骤和/或一个或多个生物(例如酶促)过程步骤转化为另一分子。例如,罗汉果苷iie是罗汉果苷iiie的前体。
66、在本公开的上下文中,术语“接触”是指生物催化剂(例如酶、细胞)、糖基供体和糖基受体之间的相互作用或缔合。接触过程涉及生物催化剂与糖基供体和糖基受体的物理缔合,其方式允许催化反应发生。
67、在本公开的上下文中,术语“活细胞”(诸如本文所公开的)是指由称为细胞膜的选择性可渗透脂质双层界定的生命单位,其将其内部(“细胞内”)环境与外部(“细胞外”)环境分开。细胞含有遗传物质,典型地是dna,其编码细胞结构和功能的指令。遗传物质在真核细胞中被组织成膜结合的细胞核内的染色体中,或者存在于原核细胞中的类核区域中。执行基本细胞功能、对刺激作出反应和维持一定程度的代谢活动的能力被认为是活状态的指示。为了清楚起见,“活细胞”不是裂解的细胞、不是死细胞、不是粗细胞提取物、不是无细胞提取物。“活细胞”可以是“增殖细胞”或“静息细胞”。“活细胞”可以是“未受损细胞”或“透化细胞”。
68、术语“增殖细胞”在本文中是指正在经历细胞分裂的细胞,其中单个亲本细胞分裂以产生两个或更多个子细胞的过程。
69、术语“静息细胞”在本文中是指处于非分裂或静止状态的细胞。静息细胞是活细胞,这意味着它们是活的,并且当条件变得更有利时能够恢复生长(即增殖状态)。
70、术语“未受损细胞”在本文中是指这样的细胞,其具有未受干扰且完全功能性的细胞膜,保持其天然屏障特性。换句话说,未受损细胞保持其天然膜的完整性。
71、在本公开的上下文中,当提及细胞时,术语“透化”、“渗透化”、“细胞膜的改变”(alteration of the cell membrane)等在本文中是指其细胞膜已被有意或无意地改变以允许在正常情况下不会穿过膜的某些物质通过的细胞。在本公开的上下文中,细胞的透化可以促进特定分子(例如糖基供体(例如蔗糖)和/或萜类化合物)进入或离开细胞内部或外部。在本公开的上下文中,“透化细胞”是活细胞。使细胞透化的方法是本领域熟知的。
72、在本公开的上下文中,术语“胞外”或“细胞外部”可以互换使用。当提及多肽(例如酶)和/或任何其他分子(例如糖基供体,诸如蔗糖;糖基受体,诸如萜类化合物)时,术语“胞外”指示所述多肽和/或分子位于细胞外部,所述细胞是完整细胞。该空间通常被认为是在细胞的质膜和/或细胞壁之外,并且被流体(例如培养基、发酵液、反应缓冲液)占据。所述胞外多肽和/或分子可以被胞外地提供(即供料)给细胞。例如,可以将所述胞外多肽和/或分子添加到存在细胞的流体(或液体)中,例如添加到培养基、发酵液、反应缓冲液中。替代性地或另外地,所述胞外多肽和/或分子可以由细胞产生并且随后分泌或转运到细胞外部。例如,当“胞外”是指由细胞表达的多肽时,所述多肽可以“在细胞外部游离地(即,完全释放)分泌”或“展示在细胞的表面处”。术语“胞外”与“胞内”或“细胞内部”形成对比。
73、当涉及多肽(例如酶)时,术语“分泌”是指细胞将所述多肽释放到胞外环境中或将其转运到特定细胞隔室的过程。蛋白质可以通过各种机制分泌到细胞外部。在本公开的上下文中,多肽可以被分泌“在细胞外部游离”或“展示在细胞的表面处”。
74、当提及多肽(例如酶)时,术语“展示在细胞的表面处”或“表面展示”表示所述多肽呈现并锚定在细胞的胞外表面上。为此,将编码目标多肽的基因与编码表面展示锚定蛋白的基因融合。这种锚定蛋白典型地是细胞包膜的组分,其促进蛋白质附着到细胞表面。使用转化(对于细菌和酵母)或转染(对于哺乳动物细胞)将工程化融合基因导入细胞(例如细菌、酵母或哺乳动物细胞)中。细胞表达融合蛋白,导致锚定蛋白和目标多肽的同时表达。锚定蛋白引导目标多肽在细胞表面上的展示。
75、当提及多肽(例如酶)时,术语“细胞外部游离”与“展示在细胞的表面处”是截然不同的。所述多肽不含表面展示锚定蛋白。所述多肽可与细胞的胞外表面相互作用,但不锚定于如上定义的所述表面。
76、在本公开的上下文中,术语“胞内”和“细胞内部”可以互换使用。当提及多肽(例如酶)和/或任何其他分子(例如糖基供体,诸如蔗糖;糖基受体,诸如萜类化合物)时,术语“胞内”指示所述多肽和/或分子位于细胞内部,所述细胞是完整细胞。术语“胞内”与“胞外”是截然不同的。
77、在本公开的上下文中,当提及表达酶的细胞(例如本文公开的细胞)时,术语“完整细胞”和“完整细胞生物催化剂”可以互换使用,并且是指用作进行特定生化反应的催化剂的活细胞,通常是微生物,例如细菌或酵母。通常,完整细胞生物催化剂包含用于将底物转化为所需产物的单一或多种酶。所述完整细胞生物催化剂可被遗传修饰或选择以进行特定反应,例如产生所期望的产物或前体。完整细胞可用于发酵过程和/或生物转化过程。
78、如本文所用的术语“生物转化”、“生物转化过程”等是指其中化合物(例如萜类化合物)被活生物体修饰的过程。这可以涉及在化合物中引入、修饰或去除特定基团(例如,糖基基团),从而产生经修饰的化合物(例如,经修饰的萜类化合物)。
79、如本文所用的术语“发酵过程”、“发酵”(“fermentation”)、“发酵”(fermenting)等是指使用微生物(例如细菌、酵母或真菌)将碳源(例如碳水化合物)转化为所期望的产物(例如经修饰的萜类化合物)的过程。碳源典型地用作微生物用于生长和能量生产的底物。碳源的选择取决于微生物和所期望的最终产物。葡萄糖是发酵中最常用的碳源之一,因为它是可以很容易地被许多微生物代谢的简单的糖。
80、“分批发酵”在本文中定义为这样的发酵,其中在发酵开始时添加所有营养物并且发酵过程继续直到获得所期望的产物或停止发酵。
81、“补料分批发酵”或“半分批发酵”是这样的发酵,其中在开始时将初始生长培养基添加到生物反应器中(类似于间歇过程),但在培养期间间歇或连续地将另外的营养物、底物或原料引入生物反应器中,并且其中期望的产物保留在生物反应器中直到运行结束。
82、“连续发酵”是这样的发酵,其中将营养物连续地添加到发酵中并且其中从生物反应器中连续地去除所期望的产物或发酵液。
83、如本文所用,术语“培养基”和“生长培养基”可互换使用,指支持细胞生长的液体或固体。通常,培养基可以包含碳源(例如葡萄糖、果糖、蔗糖、木糖、甘油、植物生物质、纤维素、半纤维素、果胶、鼠李糖、半乳糖、岩藻糖、麦芽糖、麦芽糖糊精、核糖、核酮糖或淀粉、淀粉衍生物、乳糖、脂肪酸、甘油三酯中的一种或多种)。典型地,培养基还可包含氮源(例如尿素),或铵盐(例如硫酸铵、氯化铵、硝酸铵或磷酸铵)。培养基可进一步包含微量金属、维生素、盐、氨基酸等。痕量金属可以是二价阳离子,包括但不限于mn2+、mg2+、fe2+、cu2+等。
84、术语“发酵液”是含有发酵过程中使用的营养物和微生物的液体培养基。
85、如本文所用,在酶促反应(使用例如酶、完整细胞、细胞裂解物、细胞提取物)的上下文中,术语“反应混合物”是指参与反应的所有组分的组合。除其他外,反应典型地涉及酶、底物、缓冲溶液、盐和离子、产物。
86、当提及如本文所用的产物时,术语“分离的”或“回收的”是指从产生产物的细胞、发酵液、培养基、粗制无细胞的提取物和/或反应混合物中去除或分离的产物。
87、如本文所用,当提及产物时,“纯化的”意指相对于通常与所示化合物一起发现的其它化合物(例如,在其天然环境中),产物以更高的量存在。
88、如本文所述的“纯化”可以指从细胞裂解物和/或上清液中提取产物的方法,其中细胞正在分泌产物。如本文所述的“裂解物”包含细胞壁和细胞膜破裂后细胞的细胞内容物,并且可以包括例如蛋白质、糖和罗汉果苷。纯化可以包括硫酸铵沉淀以除去蛋白质、盐析以除去蛋白质、疏水分离(hplc)和使用亲和柱。鉴于通过本文的方法产生的产物,考虑了亲和介质用于用吸附树脂去除特定的罗汉果苷。
89、如本文所述的“hplc”是可用于分离溶解在溶液中的化合物的一种液相色谱形式。在不进行限制的情况下,hplc仪器可以包括流动相储存器、泵、注射器、分离柱和检测器。然后可以通过将样品混合物注射到柱上来分离化合物。由于流动液相和固定相之间的分配行为的差异,混合物通道中的不同组分可以以不同的速率通过柱。可以使用若干种柱。在不进行限制的情况下,柱可以是正相柱、反相柱、尺寸排阻型柱和离子交换柱。
90、如本文所用,“甜味剂”、“甜味风味剂”、“甜味风味实体”、“甜化合物”或“甜味化合物”是指在受试者中引起可检测甜味的化合物或其生理上可接受的盐。如本文所用,“甜味修饰剂”是指增强、修饰或改善甜味感知的化合物或其生理上可接受的盐。
91、细胞的“基因组修饰”在本文中定义为导致细胞基因组中的多核苷酸改变的任何事件。修饰被解释为一个或多个修饰。可以通过例如经典菌株改良(诸如随机诱变然后选择)来引入修饰。修饰可以通过在多核苷酸中引入(插入)、取代(或氨基酸替换)或移除(缺失)一个或多个核苷酸来完成。这种修饰可以例如在多核苷酸的转录或翻译所需的调控元件或编码序列中。例如,可以插入或移除核苷酸以导致终止密码子的引入、起始密码子的移除或编码序列的开放阅读框的改变或移码。编码序列或其调控元件的修饰可以通过定点诱变或随机诱变、dna改组方法、dna重组方法、基因合成(参见例如young和dong(2004),nucleic acids research 32,(7)电子访问http://nar.oupjournals.org/cgi/reprint/32/7/e59,或gupta等人(1968), proc. natl. acad. sci usa, 60: 1338-1344;scarpulla等人(1982), anal. biochem. 121: 356-365;stemmer等人(1995), gene 164:49-53)或根据本领域已知方法的pcr产生的诱变来完成。随机诱变程序的实例是本领域熟知的,例如化学(例如ntg)诱变或物理(例如uv)诱变。定向诱变程序的实例是quickchange®定点诱变试剂盒(stratagene cloning systems,la jolla,ca),‘the altered sites®ii in vitro mutagenesis systems’(promega corporation)或通过使用gene. 1989 apr15;77(1):51-9. (ho sn, hunt hd, horton rm, pullen jk, pease lr “site-directedmutagenesis by overlap extension using the polymerase chain reaction”)中所述的使用pcr或如“molecular biology: current innovations and future trends.”(eds.a.m. griffin and h.g. griffin. isbn 1-898486-01-8;1995 horizon scientificpress, po box 1, wymondham, norfolk, u.k.)中所述的pcr的重叠延伸。
92、基因组中的修饰可以通过将经修饰的细胞的多核苷酸序列与未经修饰的细胞的多核苷酸序列进行比较来确定。多核苷酸的测序和基因组测序可以使用本领域技术人员已知的标准方法进行,例如使用sanger测序技术和/或下一代测序技术如illumina ga2、roche 454等,如elaine r. mardis (2008), next-generation dna sequencingmethods, annual review of genomics and human genetics, 9: 387-402. (doi:10.1146/annurev.genom.9.081307.164359)中所综述的。
93、示例性修饰方法基于基因替换、基因缺失或基因破坏的技术。
94、例如,在替换多核苷酸、多核苷酸构建体或表达盒的情况下,可以在待替换的靶基因座处引入适当的多核苷酸。合适的多核苷酸可以存在于克隆载体上。示例性整合克隆载体包含dna片段,该dna片段与多核苷酸同源和/或与待替换基因座侧翼的多核苷酸具有同源性,以靶向克隆载体整合至该预定基因座。为了促进靶向整合,可以在转化微生物之前将克隆载体线性化。在一些实施方式中,进行线性化,使得克隆载体的至少一个或任一个末端侧翼为由与待替换的多核苷酸(或侧翼序列)同源的多核苷酸序列。该过程称为同源重组,该技术也可用于实现(部分)基因缺失或基因破坏。
95、例如,对于基因破坏,对应于内源性多核苷酸的多核苷酸可以被替换为缺陷型多核苷酸,即不能产生(完全功能的)蛋白质的多核苷酸。通过同源重组,缺陷型多核苷酸替换内源性多核苷酸。可能期望缺陷型多核苷酸还编码标记物,其可用于选择其中多核苷酸已被修饰的转化体。
96、替代性地,可以通过使用与编码所述多肽的多核苷酸互补的多核苷酸的已建立的反义技术来进行修饰,由此修饰的细胞具有如本文公开的多肽中的缺陷。更具体地说,可以通过引入具有与编码所述多肽的多核苷酸序列互补的序列的多核苷酸来减少或消除重组细胞对编码本文公开的多肽的多核苷酸的表达,该多核苷酸可以在重组细胞中转录并且能够与重组细胞中产生的编码所述多肽的mrna杂交。在允许互补反义多核苷酸与所述多肽杂交的条件下,翻译的蛋白质的量因此减少或消除。表达反义-rna的实例示于appl.environ. microbiol. 2000 feb; 66(2):775-82(characterization of a foldase,protein disulfide isomerase a, in the protein secretory pathway ofaspergillus niger. ngiam c, jeenes dj, punt pj, van den hondel ca, archer db)或(zrenner r, willmitzer l, sonnewald u. analysis of the expression of potatouridinediphosphate-glucose pyrophosphorylase and its inhibition by antisenserna. planta. (1993); 190(2):247-52)中。
97、此外,多肽的修饰、下调或灭活可以通过rna干扰(rnai)技术(fems microb.lett. 237 (2004): 317-324)获得。在该方法中,将编码要影响表达的多核苷酸的多肽(例如转化酶)的相同有义和反义部分被相继克隆,其间具有核苷酸间隔区,并插入表达载体中。这种分子被转录后,小核苷酸片段的形成将导致mrna的靶向降解,这将受到影响。特异性多肽mrna的消除可以是不同程度的。在wo2008/053019、wo2005/05672a1、wo2005/026356a1、oliveira等人“efficient cloning system for construction of genesilencing vectors in aspergillus niger” (2008) appl. microbiol. andbiotechnol. 80 (5): 917-924和/或barnes等人“sirna as a molecular tool for usein aspergillus niger” (2008) biotechnology letters 30 (5): 885-890中描述的rna干扰技术可用于下调、修饰或灭活多核苷酸。
98、为了增加所引入的酶在如本文所公开的细胞中以活性形式表达的可能性,相应的编码多核苷酸可以适于将密码子使用优化到所选修饰细胞的密码子使用。编码酶的多核苷酸对所选细胞的密码子使用的适应性可以表示为密码子适应指数(cai)。密码子适应指数在本文中被定义为基因的密码子使用相对于高表达基因的密码子使用的相对适应性的量度。每个密码子的相对适应性(w)是每个密码子的使用与相同氨基酸最丰富密码子的使用的比率。cai指数被定义为这些相对适应性值的几何平均值。排除非同义密码子和终止密码子(取决于遗传密码)。cai值范围为0至1,较高的值表示较高比例的最丰富密码子(参见sharp和li(1987),nucleic acids research 15:1281-1295;还参见:jansen等(2003),nucleic acids res.31(8):2242-51)。经适应的多核苷酸可以具有至少0.2、0.3、0.4、0.5、0.6或0.7的cai。
99、本文公开的细胞可以用多核苷酸进行遗传修饰,所述多核苷酸使用本领域技术人员熟知的密码子对优化技术适应所述细胞的密码子使用。密码子对优化是用于在细胞中产生多肽的方法,其中编码多肽的多核苷酸已相对于其密码子使用,特别是所使用的密码子对进行修饰,以获得编码多肽的多核苷酸的表达量提升和/或多肽的产量提高。密码子对被定义为编码序列中一组连续的两个三联体(密码子)。
100、如本文所公开的细胞体内酶活性的进一步提高可以通过众所周知的方法如易出错pcr或定向进化获得。在wo03010183和wo03010311中描述了定向进化的一种示例性方法。
101、如本文所用,术语“标记物”是指编码允许选择或筛选含有标记物的重组微生物的性状或表型的基因。标记物基因可以是抗生素抗性基因,由此可以使用适当的抗生素从未转化的细胞中选择转化的细胞。替代性地,或者也使用非抗生素抗性标记物,例如营养缺陷标记物(ura3、trp1、leu2)。用多核苷酸构建体转化的重组细胞可以是无标记物基因的。ep-a-0 635 574中公开了构建无重组标记物基因的重组细胞的方法,并且基于双向标记物的使用。替代性地,可筛选标记物(例如绿色荧光蛋白(green fluorescent protein)、lacz、荧光素酶、氯霉素乙酰基转移酶、β-葡萄糖醛酸酶)可掺入本文公开的多核苷酸构建体中,从而允许筛选转化的细胞。wo0540186中描述了用于引入异源多核苷酸的示例性无标记物方法。
102、“序列同一性”在本文中被定义为通过比较序列所确定的两个或更多个氨基酸(多肽或蛋白质)序列或两个或更多个核酸(多核苷酸)序列之间的关系。通常,在所比较的序列的整个长度上比较序列同一性或相似性。为本公开内容的目的,为了确定两条氨基酸序列或两条核酸序列的序列同源性或序列同一性的百分比,将序列比对以达到最佳比较目的。为了优化两个序列之间的比对,可以在所比较的两个序列中的任一个中引入间隙。这种比对可以在被比较的序列的全长上进行。或者,可以在较短的长度上进行比对,例如在约20、约50、约100或更多个核酸/碱基或氨基酸上进行。序列同一性是在所报告的比对区域上在两个序列之间相同匹配的百分比。
103、序列的比较和两个序列之间的序列同一性百分比的确定可以使用数学算法来实现。本领域技术人员将意识到这样的事实:若干不同的计算机程序可用于比对两个序列并确定两个序列之间的同一性(kruskal, j. b. (1983) an overview of sequencecomparison in d. sankoff and j. b. kruskal, (ed.), time warps, string editsand macromolecules: the theory and practice of sequence comparison, pp. 1-44addison wesley)。在两个氨基酸序列之间或两个核苷酸序列之间的序列同一性百分比可以使用用于比对两个序列的needleman和wunsch算法来确定(needleman, s.b.和wunsch,c. d. (1970) j. mol. biol. 48, 443-453)。氨基酸序列和核苷酸序列都可以通过算法进行比对。needleman-wunsch算法已经在计算机程序needle中实现。为了本公开的目的,使用来自emboss软件包的needle程序(版本2.8.0或更高版本,emboss:the europeanmolecular biology open software suite (2000) rice, p. longden, i. andbleasby, a. trends in genetics 16, (6) pp276—277, http://emboss.bioinformatics.nl/)。对于蛋白质序列,eblosum62用于置换矩阵(substitutionmatrix)。对于核苷酸序列,使用ednafull。使用的任选参数是10的间隙开放罚分和0.5的间隙延伸罚分。技术人员将理解,所有这些不同的参数将产生稍微不同的结果,但是当使用不同的算法时,两个序列的总体同一性百分比不会显著改变。
104、在通过如上所述的程序needle比对之后,查询序列与本公开的序列之间的序列同一性百分比计算如下:比对中显示两个序列中相同氨基酸或相同核苷酸的相应位置的数目除以(比对的总长度减去比对中的间隙(gaps)的总数)。如本文所定义的同一性可以通过使用nobrief选项从needle获得,并且在程序的输出中被标记为“最长同一性”。
105、如本文所公开的核酸和蛋白质序列还可以用作“查询序列”,以执行针对公共数据库的搜索,例如鉴定其他家族成员或相关序列。这样的搜索可以使用altschul等人(1990)j. mol. (1990) biol. 215:403-10的blastn和blastx程序(2.0版)进行。可以用blastn程序进行blast核苷酸搜索,分数=100,字长=12,以获得与本公开的核酸分子同源的核苷酸序列。可以用blastx程序进行blast蛋白质搜索,分数=50,字长=3,以获得与本公开的蛋白质分子同源的氨基酸序列。为了获得用于比较目的的带间隙的(gapped)比对,可以使用gapped blast,如altschul等人(1997) nucleic acids res. 25(17): 3389-3402中所描述。当使用blast和gapped blast程序时,可以使用相应程序(例如,blastx和blastn)的默认参数。参见美国国家生物技术信息中心(national center for biotechnologyinformation)的主页http://www.ncbi.nlm.nih.gov/。
106、在本公开的上下文中,术语“功能同源物”、“功能等同物”和“功能变体”可以互换使用。多肽的功能性同源物是至少一种在生物学功能和/或一种活性上与该多肽相同的多肽。通常,功能性同源物与多肽的氨基酸序列具有一定水平的序列相似性或同一性,典型地与多肽的氨基酸序列具有至少50%的序列同一性,或与多肽的氨基酸序列具有至少55%、至少60%、至少65%、至少70%、至少75%、至少80%、至少85%、至少90%、或至少91%、至少92%、至少93%、至少94%、至少95%、至少96%、至少97%、至少98%或至少99%的序列同一性。与多肽的氨基酸序列相比,多肽的功能性同源物的氨基酸序列可以包含一个或多个氨基酸取代、缺失或添加。
107、多肽的功能性同源物(也表示为参考多肽)可以是天然存在的多肽,例如所述多肽的同源物、直系同源物或旁系同源物。可以通过分析核苷酸和多肽序列比对来鉴定功能同源物。例如,对核苷酸或多肽序列的数据库进行查询可以鉴定参考多肽的同源物。序列分析可以涉及基本的局部比对搜索工具,例如使用参考多肽的氨基酸序列的非冗余数据库的蛋白质blast、核苷酸blast、smartblast分析。在一些情况下,氨基酸序列是从核苷酸序列推导出来的,并且在这种情况下可以使用blastx。数据库中与参考多肽具有大于40%的序列同一性的那些多肽是用于进一步评估作为多肽的功能同源物的适用性的候选物。氨基酸序列相似性允许保守的氨基酸取代,例如用一个疏水残基取代另一个疏水残基或用一个极性残基取代另一个极性残基。如果需要,可以对这样的候选物进行人工检查,以便缩小待进一步评估的候选物的数量。人工检查可以通过选择那些看起来具有存在于参考多肽中的结构域(例如,保守的功能域)的候选物来进行。在一些实施方式中,基于表达水平而不是通过使用blast分析从转录组数据鉴定核酸和多肽。保守区域可以通过定位参考多肽的一级氨基酸序列内的区域来鉴定,该区域是重复序列,形成某种二级结构(例如,螺旋和β折叠),建立带正电荷或负电荷的结构域,或代表蛋白质基序或结构域。例如,interpro数据库(参见paysan-lafosse t, blum m, chuguransky s, grego t, pinto bl, salazar ga,bileschi ml, bork p, bridge a, colwell l, gough j, haft dh, letun i,marchler-bauer a, mi h, natale da, orengo ca, pandurangan ap, rivoire c,sigrist cja, sillitoe i, thanki n, thomas pd, tosatto sce, wu ch, bateman a.,2023, “interpro in 2022”. nucleic acids research,51: d418-d427)通过将蛋白质分类为家族并预测结构域和重要位点来提供蛋白质的功能分析,并且可用于确定参考多肽中的保守区域。保守区域也可以通过比对来自密切相关物种的相同或相关多肽的序列来确定。密切相关的物种优选来自同一科。在一些实施方式中,来自两种不同物种的序列的比对足以鉴定此类同源物。
108、替代性地,可以使用本领域技术人员已知的多种技术合成地生产功能性同源物。例如,多肽的潜在功能同源物的氨基酸序列可以使用本领域技术人员已知的蛋白质工程工具来产生,例如定向进化(arnold, f. h. 2001.“combinatorial and computationalchallenges for biocatalyst design.” nature 409:253–257;powell, k. a., s. w.ramer, s. b. del cardayre, w. p. c. stemmer, m. b. tobin, p. f. longchamp,and g. w. huisman. 2001. “directed evolution and biocatalysis.” angewandtechemie-international edition 40:3948–3959;rohlin, l., m. k. oh, and j. c.liao. 2001. “microbial pathway engineering for industrial processes:evolution, combinatorial biosynthesis and rational design.”current opinion inmicrobiology 4:330–335)和/或理性设计(li, q. s., u. schwaneberg, m. fischer,j. schmitt, j. pleiss, s. lutz-wahl, and r. d. schmid.2001. “rationalevolution of a medium chain-specific cytochrome p-450 bm-3 variant.”biochimica et biophysica acta-protein structure and molecular enzymology1545:114–121;looger, l. l., m. a. dwyer, j. j. smith, and h. w. hellinga.2003. “computational design of receptor and sensor proteins with novelfunctions.” nature 423:185–190;voigt, c. a., s. l. mayo, f. h. arnold, and z.g. wang. 2001. “computational method to reduce the search space for directedprotein evolution.”proceedings of the national academy of sciences of theunited states of america 98:3778–3783)和/或设计的发散进化(yoshikuni, y., t.e. ferrin, and j. d. keasling.2006. “designed divergent evolution of enzymefunction.” nature 440:1078–1082)。用于修饰编码本文所述的功能性多肽的基因的技术是已知的,并且尤其包括定向进化技术、定点诱变技术和随机诱变技术,并且可用于以期望的方式增加多肽的比活性、改变底物特异性、改变表达水平、改变亚细胞位置或修饰多肽-多肽相互作用。这类经修饰的多肽被认为是功能性同源物。术语“功能性同源物”有时应用于编码功能性同源多肽的核酸。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com