
小麦来源叶黄素酰基转移酶在解脂耶氏酵母合成酯化虾青素中的应用
本发明属于基因工程,具体涉及小麦来源叶黄素酰基转移酶在解脂耶氏酵母合成酯化虾青素中的应用。
背景技术:
1、虾青素是一种含有羟基和酮基的酮式类胡萝卜素,广泛应用于营养健康、功能食品、化妆品和水产养殖等领域。天然来源的虾青素常以脂肪酸酯形式存在。相较于游离虾青素,酯化虾青素具有更好的热稳定性、光稳定性和氧化稳定性,并更适合在疏水性脂质环境中储存。因此,直接通过工程微生物合成酯化虾青素具有明确的产品和工艺价值。
2、解脂耶氏酵母(yarrowia lipolytica)具有较强的乙酰辅酶a和脂质代谢能力,能够形成脂滴并适于高密度培养,是合成虾青素及其他脂溶性天然产物的重要底盘。但大多数人工构建的虾青素生产微生物首先得到的是游离虾青素,要获得酯化虾青素,还需要引入能够在宿主胞内真正发挥作用的酰基转移酶。
3、当前已有裂殖壶菌二酰甘油酰基转移酶(dgat)在解脂耶氏酵母中合成酯化虾青素的相关报道(专利cn202210056142.4、cn202511125356.2),然而,已报道工程化酯化路线的依赖单一酶家族,难以覆盖不同底盘和生产条件,且该类酶本身通常参与三酰甘油合成,过表达时可能同时改变宿主脂质组装并消耗脂酰供体,产生不利的代谢竞争。因此,寻找蛋白家族、催化机制和酰基供体偏好不同的替代酯化酶,有助于扩展酯化虾青素的酶元件库,并为后续酰基组成调控和底盘适配提供更多选择。
4、小麦(triticum aestivum)来源的叶黄素酰基转移酶(xat)属于gdsl酯酶/脂肪酶家族,其酰基转移方式与典型依赖脂酰-coa的dgat类酶不同。然而,植物中能够酯化叶黄素并不等同于其能够在异源酵母中识别虾青素并完成酯化。
技术实现思路
1、本发明的目的在于提供小麦来源叶黄素酰基转移酶在解脂耶氏酵母合成酯化虾青素中的应用。
2、本发明所述的小麦来源叶黄素酰基转移酶的氨基酸序列如seq id no.40所示。
3、进一步地,上述应用的具体方法为:将小麦来源叶黄素酰基转移酶整合到合成游离虾青素的解脂耶氏酵母菌株的基因组中。
4、本发明提供一种合成酯化虾青素的解脂耶氏酵母工程菌,其基因组中整合了上述小麦来源叶黄素酰基转移酶。
5、进一步地,上述合成酯化虾青素的解脂耶氏酵母工程菌为解脂耶氏酵母工程菌株yla13,其是以解脂耶氏酵母po1f为出发菌株,经过以下基因改造获得的解脂耶氏酵母工程菌:整合大肠杆菌(escherichia coli)来源的乙酰辅酶a乙酰转移酶atob基因和内源erg13、hmg1、erg8、erg12、erg19、idi、zwf、gnd基因,整合3个拷贝的卷枝毛霉(mucorcircinelloides)来源的番茄红素环化酶基因carrp和3个拷贝的八氢番茄红素脱氢酶基因carb,整合红法夫酵母(phaffia rhodozyma)来源的ggpp合酶基因xdggpps,并将红法夫酵母来源的ggpp合酶基因xdggpps的启动子替换为pgap、终止子替换为tcyc1,整合副球菌属(paracoccus)来源的β-胡萝卜素酮化酶基因crtw,整合两个拷贝的雨生红球藻(haematococcus pluvialis)来源的羟化酶基因crtz,整合红法夫酵母来源的番茄红素环化酶基因crtyb,敲除菌丝形成相关基因mhy1和色氨酸合成相关基因trp1,整合小麦来源叶黄素酰基转移酶基因xat。
6、本发明所述的atob基因的核苷酸序列如seq id no.45所示, carrp基因的核苷酸序列如seq id no.1所示,carb基因的核苷酸序列如seq id no.2所示,xdggpps基因的核苷酸序列如seq id no.7所示,crtw基因的核苷酸序列如seq id no.10所示,crtz基因的核苷酸序列如seq id no.11所示,crtyb基因的核苷酸序列如seq id no.16所示,启动子pgap的核苷酸序列如seq id no.26所示,终止子tcyc1的核苷酸序列如seq id no.29所示。
7、本发明还提供上述合成酯化虾青素的解脂耶氏酵母工程菌的构建方法,具体步骤如下:
8、(1)先将大肠杆菌来源的乙酰辅酶a乙酰转移酶atob基因和内源erg13、hmg1、erg8、erg12、erg19、idi、zwf、gnd基因随机整合到解脂耶氏酵母菌株po1f中,获得解脂耶氏酵母工程菌s0;
9、(2)先将卷枝毛霉来源的番茄红素环化酶基因carrp和八氢番茄红素脱氢酶基因carb以及红法夫酵母来源的ggpp合酶基因xdggpps整合到解脂耶氏酵母工程菌s0中,再整合2个拷贝的卷枝毛霉来源的番茄红素环化酶基因carrp和2个拷贝的八氢番茄红素脱氢酶基因carb,获得β-胡萝卜素生产菌株ylb9;
10、(3)将副球菌属来源的β-胡萝卜素酮化酶基因crtw和雨生红球藻来源的羟化酶基因crtz整合到β-胡萝卜素生产菌株ylb9中,获得能够生产虾青素的工程菌株yla1;
11、(4)将雨生红球藻来源的羟化酶基因crtz和红法夫酵母来源的番茄红素环化酶基因crtyb整合到工程菌株yla1中,获得工程菌株yla5;
12、(5)将工程菌株yla5中红法夫酵母来源的ggpp合酶基因xdggpps的启动子替换为pgap,终止子替换为tcyc1,获得工程菌株yla8;
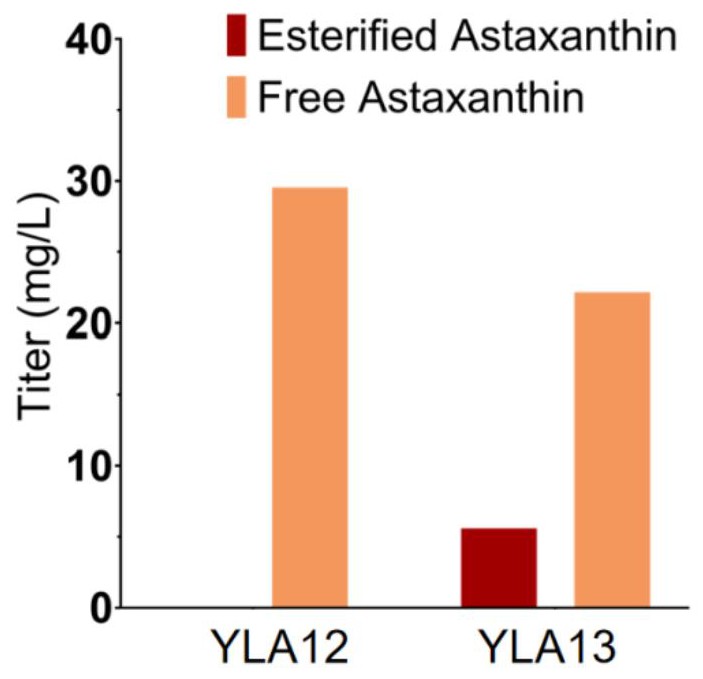
13、(6)在工程菌株yla8中敲除菌丝形成相关基因mhy1,获得工程菌株yla9;
14、(7)在工程菌株yla9中回收ura3标记,获得工程菌株yla10;
15、(8)在工程菌株yla10中敲除色氨酸合成相关基因trp1,获得工程菌株yla12;
16、(9)将小麦来源叶黄素酰基转移酶基因xat和ura3营养标记整合到工程菌株yla12中,获得工程菌株yla13。本发明提供上述解脂耶氏酵母工程菌在生物合成酯化虾青素中的应用。
17、进一步地,上述应用的具体方法为:将解脂耶氏酵母工程菌接种至ypd培养基中进行发酵,合成酯化虾青素。
18、本发明所述的ypd培养基为解脂耶氏酵母培养中常规使用的ypd培养基,培养基组成为:2%葡萄糖、2%蛋白胨和1%酵母提取物。
19、与现有技术相比,本发明具有以下优点:
20、本发明首次发现小麦来源xat基因不仅能够在植物体系中参与叶黄素类物质的酰基转移,而且能够在解脂耶氏酵母这一异源微生物宿主中识别虾青素并催化其酯化。本发明将小麦来源xat基因异源表达于能够合成游离虾青素的解脂耶氏酵母后,发酵提取物的hplc图谱中出现出发菌株不存在的酯化虾青素特征峰,证明xat酶在解脂耶氏酵母胞内具有可检测的虾青素酯化活性,进一步酶解酯键并检测产量发现,酯化虾青素占总虾青素占比约20%。由于xat酶属于gdsl酯酶/脂肪酶家族,与现有裂殖壶菌dgat2类虾青素酯化酶在蛋白家族和酰基转移方式上不同,为解脂耶氏酵母中酯化虾青素生产开发了新的酯化酶选择。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com