
一种核黄素生产菌株及其构建方法与应用
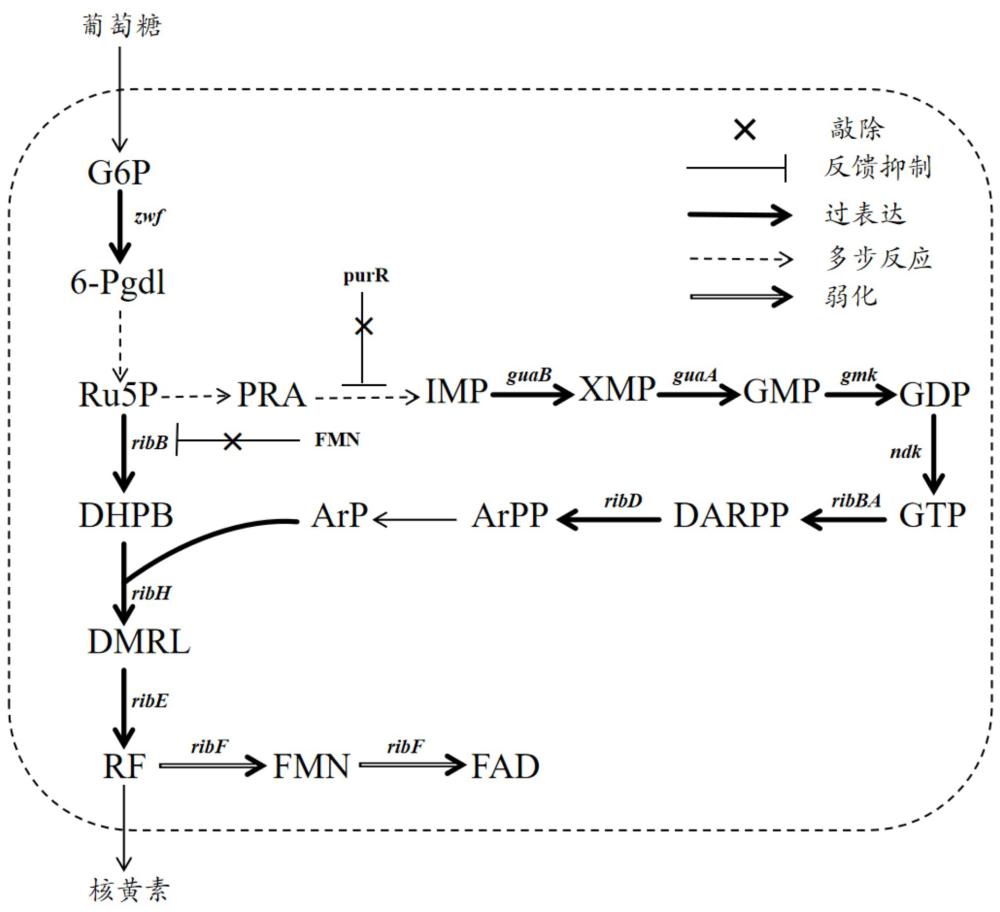
本发明涉及生物技术及发酵工程,尤其是一种核黄素生产菌株及其构建方法与应用。
背景技术:
1、核黄素是生物必需的营养素,能作为fmn、fad辅酶参与体内氧化还原反应,驱动糖、脂、蛋白质的能量代谢;还能维护动植物、微生物的黏膜和上皮组织健康,助力视觉感光物质合成,辅助其他b族维生素活化;此外它能通过抗氧化功能减少生物细胞的氧化损伤,是微生物生长代谢的关键因子,更是动物饲料核心添加剂。
2、目前核黄素(维生素b2)已完全实现微生物发酵法生产,全球年产量超8000吨。工业生产的核心主流菌株为棉阿舒囊霉(产核黄素酵母菌/丝状真菌)和枯草芽孢杆菌,二者占据全球绝大多数产能。其中棉阿舒囊霉生长周期长,设备周转率低,且菌种易退化。枯草芽孢杆菌多携带抗生素抗性基因,存在耐药基因扩散风险。大肠杆菌凭借成熟的遗传操作体系成为科研层面的核心模式菌株,其生长速率快,理论产能极高,且培养成本低,条件适配性广,有望用于构建一株遗传背景清晰、产量较为可观的核黄素生产菌株。
技术实现思路
1、本发明所要解决的技术问题在于提供一种核黄素生产菌株。
2、本发明所要解决的另一技术问题在于提供上述核黄素生产菌株的构建方法。
3、本发明所要解决的另一技术问题在于提供上述核黄素生产菌株的应用。
4、为解决上述技术问题,本发明的技术方案是:
5、一种核黄素生产菌株,命名为菌株rf-08,是以大肠杆菌
e.coliw3110作为底盘菌株利用代谢工程手段进行基因编辑获得的:敲除了嘌呤阻遏蛋白基因
purr、3,4二羟基-2-丁酮-4-磷酸合酶基因
ribb前的fmn核糖开关,上调了鸟苷酸激酶基因
gmk、核苷二磷酸激酶基因
ndk、鸟苷酸合成酶基因
guaa、次黄嘌呤核苷酸脱氢酶基因
guab的转录水平,异源表达了来源于枯草芽孢杆菌
bacillus subtilis(核黄素工程菌株
b.subtilis168atcc 23857)的嘧啶脱氨酶基因
ribd、核黄素合成酶基因
ribe、三磷酸鸟苷环化水解酶ⅱ基因
ribba、二氧四氢嘌呤合成酶基因
ribh和嘌呤操纵子基因
pur(
ekbcsqlfmnhd)、来源于
corynebacterium glutamicum k051菌株的葡萄糖-6磷酸脱氢酶基因
zwf,动态调控了双功能核黄素激酶基因
ribf的表达。
6、优选的,上述核黄素生产菌株,在出发菌株
e.coli.w3110中引入异源的
b.subtilis 168菌株嘌呤操纵子基因
pur(
ekbcsqlfmnhd),由ptrc启动子启动;敲除嘌呤阻遏蛋白基因
purr;过表达来源于bacillus subtilis
168的核黄素生物合成基因
ribd、
ribe、
ribba和
ribh,由同一pt7启动子启动转录;过表达鸟苷酸激酶基因
gmk和核苷二磷酸激酶基因
ndk,由ptrc启动子启动;过表达鸟苷酸合成酶基因
guaa和次黄嘌呤核苷酸脱氢酶基因
guab,由ptrc启动子启动;敲除3,4二羟基-2-丁酮-4-磷酸合酶基因
ribb前的fmn核糖开关,由ptrc启动子启动;把fmn核糖开关偶联启动子整合到双功能核黄素激酶基因
ribf前;过表达来源于
corynebacterium glutamicum k051的葡萄糖-6磷酸脱氢酶基因
zwf,由ptrc启动子启动。
7、优选的,上述核黄素生产菌株,所述大肠杆菌
e.coli.w3110为野生型大肠杆菌
e.coli w3110atcc 27325。
8、优选的,上述核黄素生产菌株,过表达鸟苷酸激酶基因
gmk和核苷二磷酸激酶基因
ndk的具体方式为:将鸟苷酸激酶基因
gmk和核苷二磷酸激酶基因
ndk以串联方式排列,基因之间通过rbs(核糖体结合位点)连接,并由ptrc启动子驱动转录形成多顺反子表达单元。
9、优选的,上述核黄素生产菌株,所述嘌呤操纵子基因
pur(
ekbcsqlfmnhd)的核苷酸序列如序列表seq id no.1所示(嘌呤操纵子基因
pur(
ekbcsqlfmnhd)中各基因的ncbi-geneid分别为:
pure:939481;
purk:936039;
purb:936048;
purc:939389;
purs:936041;
purq:938760;
purl:939233;
purf:936046;
purm:936044;
purn:936045;
purh:936053;
purd:938741);嘌呤阻遏蛋白基因
purr的核苷酸序列如序列表seq id no.2所示;嘧啶脱氨酶基因
ribd的核苷酸序列如序列表seq id no.3所示(
ribd;ncbi-geneid:936002);核黄素合成酶基因
ribe的核苷酸序列如序列表seq id no.4所示(
ribe;ncbi-geneid:936004);三磷酸鸟苷环化水解酶ⅱ基因
ribba的核苷酸序列如序列表seq id no.5所示(
ribba;ncbi-geneid:936003);二氧四氢嘌呤合成酶基因
ribh的核苷酸序列如序列表seq id no.6所示(
ribh;ncbi-geneid:936005);鸟苷酸激酶基因
gmk的核苷酸序列如序列表seq id no.7所示(
gmk;ncbi-geneid:946130);核苷二磷酸激酶基因
ndk的核苷酸序列如序列表seq idno.8所示(
ndk;ncbi-geneid:945611);鸟苷酸合成酶基因
guaa的核苷酸序列如序列表seqid no.9所示(gua
a;ncbi-geneid:945609);次黄嘌呤核苷酸脱氢酶基因
guab的核苷酸序列如序列表seq id no.10所示(
guab;ncbi-geneid:945608);fmn核糖开关的核苷酸序列如序列表seq id no.11所示;葡萄糖-6磷酸脱氢酶基因
zwf的核苷酸序列如序列表seq idno.13所示(zwf;ncbi-geneid:12067307);3,4二羟基-2-丁酮-4-磷酸合酶基因
ribb的核苷酸序列如序列表seq id no.16所示(
ribb;ncbi-geneid:946746);双功能核黄素激酶基因
ribf的核苷酸序列如序列表seq id no.17所示(
ribf;ncbi-geneid:944873);rbs的核苷酸序列如序列表seq id no.18所示。
10、优选的,上述核黄素生产菌株,所述fmn核糖开关偶联启动子的核苷酸序列如序列表seq id no.12所示;ptrc启动子的核苷酸序列如序列表seq id no.14所示;pt7启动子的核苷酸序列如序列表seq id no.15所示。
11、上述核黄素生产菌株的构建方法,在出发菌株
e.coliw3110基础上进行定向改造,分为如下三个模块:
12、(1)增加前体物ru5p和gtp产量和提高还原力:敲除嘌呤阻遏蛋白基因
purr;提高嘌呤操纵子基因
pur(
ekbcsqlfmnhd)的转录水平;提高鸟苷酸激酶编码基因
gmk的转录水平;提高核苷二磷酸激酶编码基因
ndk的转录水平;提高鸟苷酸合成酶基因
guaa的转录水平;提高次黄嘌呤核苷酸脱氢酶基因
guab的转录水平;提高葡萄糖-6磷酸脱氢酶基因
zwf的转录水平;
13、(2)增加核黄素产量:引入外源的嘧啶脱氨酶基因
ribd、核黄素合成酶基因
ribe、三磷酸鸟苷环化水解酶ⅱ基因
ribba、二氧四氢嘌呤合成酶基因
ribh;敲除3,4 二羟基-2-丁酮-4-磷酸合酶基因
ribb前的fmn核糖开关;
14、(3)减少核黄素分解:用fmn核糖开关偶联启动子替换双功能核黄素激酶基因
ribf的原有启动子,即构建携带fmn响应型核糖体开关的启动子调控
ribf基因表达;所述
ribf的原有启动子的核苷酸序列如序列表seq id no.19所示。
15、优选的,上述核黄素生产菌株的构建方法,具体步骤如下:
16、(1)通过在
e.coliw3110的基因组
yjiv位点引入异源的嘌呤操纵子基因
pur(
ekbcsqlfmnhd),由ptrc启动子启动,增强嘌呤代谢途径的碳代谢流;
17、(2)敲除嘌呤阻遏蛋白基因
purr,加强嘌呤代谢;
18、(3)在基因组molr位点整合来源于
bacillus subtilis 168的嘧啶脱氨酶基因
ribd、核黄素合成酶基因
ribe、三磷酸鸟苷环化水解酶ⅱ基因
ribba和二氧四氢嘌呤合成酶基因
ribh,所述基因按照天然基因簇顺序串联排列,并由同一pt7启动子驱动转录形成多顺反子表达单元,强化核黄素的生物合成途径;
19、(4)通过在基因组
yeel位点整合鸟苷酸激酶基因
gmk和核苷二磷酸激酶基因
ndk,由ptrc启动子启动,强化嘌呤代谢;
20、(5)通过在基因组
ycjv位点整合鸟苷酸合成酶基因
guaa和次黄嘌呤核苷酸脱氢酶基因
guab,所述基因按照天然基因簇顺序串联排列,由ptrc启动子启动,强化嘌呤代谢;
21、(6)敲除
3,4二羟基-2-丁酮-4-磷酸合酶基因ribb前的fmn核糖开关,解除fmn对
3,
4二羟基-2-丁酮-4-磷酸合酶基因ribb的反馈抑制;
22、(7)把fmn核糖开关偶联启动子整合到双功能核黄素激酶基因
ribf前,替换其原有启动子,实现对核黄素分解途径的自适应调控,在降低核黄素降解的同时维持细胞内fmn水平,避免其不足对菌体生长造成影响;
23、(8)通过在基因组
yghe位点整合来源于
corynebacterium glutamicum k051的葡萄糖-6磷酸脱氢酶基因zwf,由ptrc启动子启动,使碳代谢流更多的流向磷酸戊糖途径。
24、上述核黄素生产菌株在生产核黄素中的应用。
25、优选的,上述应用,在摇瓶或发酵罐中采用发酵方法生产核黄素。
26、优选的,上述应用,使用发酵罐进行发酵,具体步骤如下:
27、(1)菌种活化:将菌种从甘油管接至斜面培养基活化培养11-13h;将菌种从斜面培养基中接至茄形瓶培养基中继续活化扩大培养10-12h,培养温度:37℃;
28、(2)种子培养:培养过程ph维持在7.0±0.2,温度维持在37±0.2℃,溶氧维持在35%-50%,培养至od600nm为20时转接发酵罐中进行发酵培养;
29、(3)发酵培养:将种子液接种至发酵培养基中进行发酵培养,发酵培养过程中控制ph7.0±0.2,温度维持在37±0.2℃,溶氧维持在30%-50%;培养过程中通过流加葡萄糖溶液维持发酵过程菌体所需的碳源,期间通过添加氨水来调节ph,使ph维持在7.0±0.2。
30、优选的,上述应用,采用的斜面培养基为:葡萄糖2g/l,氯化钠2.5g/l,酵母浸粉5g/l,蛋白胨10g/l,琼脂粉25g/l,kh2po41.5g/l,mgso4·7h2o 0.2g/l,其余为水。
31、优选的,上述应用,采用的种子培养基为:葡萄糖30g/l,酵母浸粉8g/l,蛋白胨2g/l,柠檬酸2g/l,(nh4)2so41g/l,mgso4·7h2o 1.5g/l,kh2po41.5g/l,feso4·7h2o 10mg/l,mnso45mg/l,vb1、vb3、vb5、vb12各1mg/l,vh 1mg/l,其余为水。
32、优选的,上述应用,采用的发酵培养基为:葡萄糖30g/l,酵母浸粉5g/l,蛋白胨2g/l,柠檬酸2g/l,(nh4)2so42g/l,mgso4·7h2o 2g/l,kh2po44g/l,feso4·7h2o 20mg/l,mnso410mg/l,vb1、vb3、vb5、vb12各2mg/l,vh 2mg/l,其余为水。
33、上述培养基均可采用标准方法制备获得。
34、有益效果:
35、上述核黄素生产菌株,以野生型
e.coli.w3110为底盘微生物,在其中引入异源嘌呤操纵子基因
pur(
ekbcsqlfmnhd),通过基因组整合过表达核黄素生物合成途径关键酶基因
ribd、
ribe、
ribba、ribh、gmk、ndk、guaa、guab、zwf,解除
3,4二羟基-2-丁酮-4-磷酸合酶
基因ribb的反馈抑制,并构建携带fmn响应型核糖体开关的启动子动态调控核黄素激酶基因
ribf表达,实现对核黄素分解途径的自适应调控,在降低核黄素降解的同时维持细胞内fmn水平,避免其不足对菌体生长造成影响;所构建的菌株遗传背景清晰、无质粒、可持续改造,通过该菌株发酵生产核黄素,无需添加抗性物质,具有良好的核黄素合成能力,操作简单、能以廉价碳源从头合成核黄素,有效提高了核黄素合成效率,生产成本低,性能稳定;采用分批补料发酵法在5l发酵罐中发酵36h,核黄素产量可达到15.6g/l,大幅提升了核黄素生产水平,具有较好的工业应用前景。具体来讲:
36、(1)通过敲除嘌呤阻遏蛋白基因
purr,引入嘌呤操纵子基因
pur(
ekbcsqlfmnhd),提高鸟苷酸激酶编码基因
gmk、核苷二磷酸激酶编码基因
ndk、鸟苷酸合成酶基因
guaa、次黄嘌呤核苷酸脱氢酶基因
guab、葡萄糖-6磷酸脱氢酶基因
zwf的转录水平,为核黄素合成提供了大量前体和还原力;
37、(2)引入外源的嘧啶脱氨酶基因
ribd、核黄素合成酶基因
ribe、三磷酸鸟苷环化水解酶ⅱ基因
ribba、二氧四氢嘌呤合成酶基因
ribh,极大的提高了核黄素合成能力,敲除3,4二羟基-2-丁酮-4-磷酸合酶基因
ribb前的fmn核糖开关,解除核黄素分解产物fmn对核黄素合成的反馈抑制效果,提高核黄素合成效率;
38、(3)在
e.coli w3110中双功能核黄素激酶基因
ribf主要参与核黄素的分解途径,通过把fmn核糖开关偶联启动子整合到双功能核黄素激酶基因
ribf前,替换其原有启动子,实现对核黄素分解途径的自适应调控,在降低核黄素降解的同时维持细胞内fmn水平,避免其不足对菌体生长造成影响,从而提高核黄素产量。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com