
一种β-胡萝卜素羟化酶的智能设计与优化方法及其在虾青素和堇菜黄素生物合成中的应用
本发明涉及微生物技术和分子生物学领域,涉及一种β-胡萝卜素羟化酶的智能设计与优化方法及其在虾青素和堇菜黄素生物合成中的应用,具体涉及
pantoea ananatis来源β-胡萝卜素羟化酶crtz相关突变体的设计方法,及其在酵母中合成3,3'-羟化类胡萝卜素及下游产物虾青素、堇菜黄素中的应用。
背景技术:
1、类胡萝卜素是一类广泛存在于植物、藻类、真菌及细菌中的天然脂溶性色素,具有重要的生理功能和广泛的应用价值。其中,叶黄素类化合物(xanthophylls)因具有优异的抗氧化活性、生物安全性及营养保健功能而受到广泛关注。虾青素(astaxanthin)、堇菜黄素(violaxanthin)和玉米黄素(zeaxanthin)是其中最具代表性的高附加值产品,在食品着色剂、膳食补充剂、动物饲料、医药保健品及化妆品等领域具有广阔的市场需求。
2、β-胡萝卜素羟化酶(crtz)是虾青素等类胡萝卜素生物合成途径中的关键酶之一,主要负责催化β-胡萝卜素分子两端3位和3'位碳原子的羟基化反应,从而生成玉米黄素等羟基化类胡萝卜素产物。进一步与β-胡萝卜素酮化酶或玉米黄素环氧化酶协同作用,可实现虾青素、堇菜黄素等高价值类胡萝卜素的生物合成。因此,crtz的催化性能直接影响整个类胡萝卜素合成途径的代谢通量分配和最终产物积累水平。
3、目前工业上虾青素主要来源于雨生红球藻等天然生物资源,玉米黄素主要通过万寿菊花瓣提取获得,堇菜黄素则由于其在植物中作为光合作用调控成分,具有不稳定、含量低等问题,暂无稳定商品化来源。上述叶黄素类化合物普遍存在培养周期长、生产成本高、受环境因素影响明显以及产品质量稳定性差等问题,严重限制其商业化生产。随着合成生物学和代谢工程技术的发展,利用工程微生物,尤其是酵母细胞工厂,进行类胡萝卜素绿色生物制造已成为重要的发展方向。相比天然提取法,微生物发酵法具有生产周期短、原料来源稳定、易于规模化放大和环境友好等优势。
4、然而,在现有类胡萝卜素生产体系中,crtz仍然是限制目标产物积累的重要因素之一。一方面,部分来源的crtz催化活性有限,导致β-胡萝卜素无法充分转化,从而在细胞内大量积累;另一方面,crtz还存在一定程度的催化杂泛性,现有报道的pacrtz能够对已经发生羟基化修饰的中间产物继续进行过度氧化反应,生成玫红黄素(rhodoxanthin)等3-(,3’-)酮基化副产物。这类副反应不仅消耗代谢通量,而且降低目标产物纯度,增加后续分离纯化成本,最终影响整个生物制造过程的经济性。
5、因此,开发兼具高催化活性和高底物专一性的新型crtz突变体,在保证β-胡萝卜素高效转化的同时抑制过度氧化副反应,对于提高虾青素、堇菜黄素等类胡萝卜素产品的生物制造效率具有重要意义。
技术实现思路
1、针对现有技术中β-胡萝卜素羟化酶催化效率不足、底物专一性较差以及副产物生成较多等问题,本发明提供了一种β-胡萝卜素羟化酶的智能设计与优化方法及其在虾青素和堇菜黄素生物合成中的应用,基于该方法可得到高活性、低杂泛性的β-胡萝卜素羟化酶突变体。通过对
pantoea ananatis来源的crtz进行智能设计和定向改造,获得了一系列兼具高催化效率和高反应专一性的工程化酶突变体,从而实现虾青素等类胡萝卜素合成途径的优化调控。
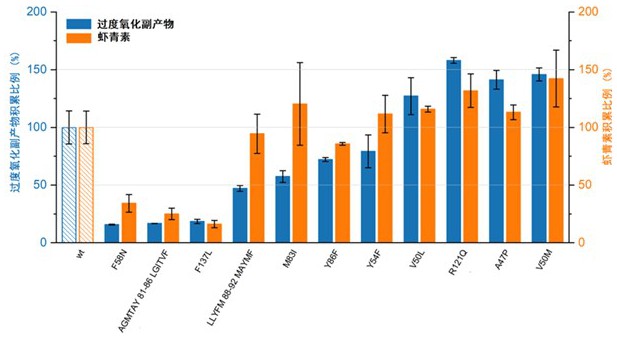
2、本发明首先利用蛋白结构预测和分子对接分析技术,对β-胡萝卜素与crtz活性中心之间的相互作用模式进行研究,识别β-胡萝卜素羟化酶中影响底物结合和催化反应的重要氨基酸残基。随后利用跨物种基序模式(结合不同物种来源β-胡萝卜素羟化酶的进化保守性分析),筛选出多个可能影响酶活性及底物专一性的关键位点,并针对这些位点构建单点突变、片段替换以及多位点组合突变体。通过在虾青素、堇菜黄素生产体系中的功能验证,系统评价不同β-胡萝卜素羟化酶突变体对β-胡萝卜素转化效率、虾青素、堇菜黄素积累水平及副产物形成情况的影响。
3、第一方面,本发明提供了一系列β-胡萝卜素羟化酶突变体。所述突变体是以
pantoea ananatis 来源的crtz为亲本,其氨基酸序列上至少包含一个或多个选自下表1中的一次或多次氨基酸替换:
4、表1
5、
6、进一步地,所述的氨基酸替换具体为选自以下关键位点的氨基酸替换:a47p、v50l、v50m、y54f、m83l、y86f和r121q。
7、在一些实施方案中,所述突变体包含以上氨基酸突变的叠加组合,具体见下表2:
8、表2
9、
10、在优选的实施方案中,所述突变体包含以下核心叠加组合:
11、m83i+y54f+v50l或m83i+v50l+a47p。
12、进一步地,所述β-胡萝卜素羟化酶crtz编码基因经过密码子优化,序列如seq idno.1所示,本技术的突变体均是在此序列的基础上进行突变后得到的。出发菌株为一株已经导入除crtz外的虾青素完整生物合成途径的酵母菌株,以及一株已经导入除crtz外的堇菜黄素完整生物合成途径的酵母菌株。
13、第二方面,本发明提供了核酸,所述核酸编码上述的突变体。
14、第三方面,本发明提供了载体,所述载体用于酵母细胞工厂,包含上述核酸。
15、第四方面,本发明提供了宿主细胞,所述宿主细胞能够功能性表达上述的核酸,或能通过转化导入上述载体,最终实现功能性表达。
16、第五方面,本发明提供了一种虾青素的制备方法,所述方法包含使用上述的核酸、载体以及宿主细胞。
17、第六方面,本发明提供了一种堇菜黄素的制备方法,所述方法包含使用上述的核酸、载体以及宿主细胞。
18、第七方面,本发明提供了一种高活性、低杂泛性的β-胡萝卜素羟化的智能设计与优化方法,所述方法包含以下步骤:
19、(1)结构预测与分子对接:获取β-胡萝卜素羟化酶的三维结构模型,通过分子对接和共折叠预测,对β-胡萝卜素与crtz活性中心之间的相互作用模式进行研究,识别β-胡萝卜素羟化酶中影响底物结合和催化反应的重要氨基酸残基;
20、(2)保守性分析:结合不同物种来源β-胡萝卜素羟化酶的进化保守性进行多序列比对,分析保守区域和变异区域,筛选候选突变位点;
21、(3)rosetta筛选:对所述候选突变位点构建突变策略,并评估各突变策略对蛋白质自身稳定性的影响,筛选出自由能变化δδg<2 reu的突变策略,得到候选突变体;
22、(4)酵母验证:将候选突变体在酵母(已经导入除crtz外的虾青素完整生物合成途径的酵母菌株和已经导入除crtz外的堇菜黄素完整生物合成途径的酵母菌株)中进行表达,测定目标产物与副产物的积累水平,从而筛选出最优突变体,即为优化后的β-胡萝卜素羟化酶。
23、与现有技术相比,本发明具有以下有益效果:
24、首先,本发明以植物中的β-胡萝卜素羟化酶具有相对低杂泛性、高稳定性为切入点,通过结构指导的蛋白质工程改造策略结合序列比对,提出了一系列新颖的理性设计方案,并由此获得了一系列催化性能优异的crtz突变体,为虾青素和堇菜黄素等类胡萝卜素代谢工程提供了新的关键功能元件。其次,本发明所获得的突变体能够显著提高β-胡萝卜素向羟基化产物的转化效率,有效缓解底物积累问题,提高代谢通路整体通量利用效率。再次,本发明所获得的突变体能够降低对羟基化产物的进一步氧化作用,显著减少3,3’-酮基化副产物生成,提高虾青素和堇菜黄素的纯度。此外,通过多位点协同优化策略,实现了酶活性与反应专一性的平衡提升,克服了传统蛋白质工程改造中活性提高往往伴随副反应增加的问题。最后,本发明所获得的突变体能够直接应用于酵母及其他工业微生物底盘的类胡萝卜素生物制造过程,对于虾青素、堇菜黄素、玉米黄素及其他3,3'-羟基化类胡萝卜素的绿色高效生产具有重要应用价值和产业化前景。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com