
用于免疫治疗的同种异体且高活性的T细胞的工程化方法与流程
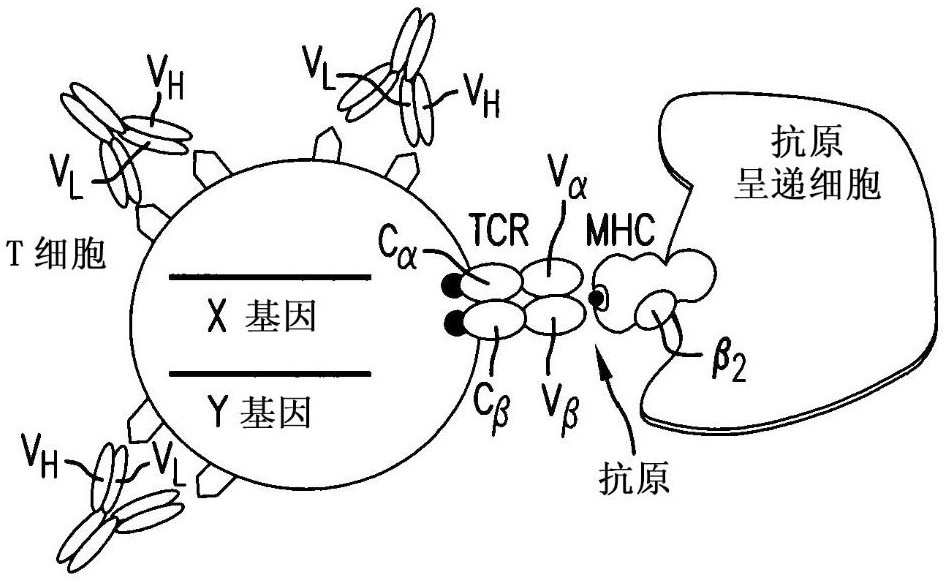
本发明涉及用于开发免疫治疗用工程化非同种异体反应性(非同种反应性、非同种异型反应性,non-alloreactive)t细胞的方法,并且更具体地涉及用于改造(改变,modify)t细胞的方法,该方法通过同时失活编码t细胞受体的基因和至少一种免疫检查点基因(immune checkpoint gene)以释放免疫反应的潜能。这种方法涉及使用特定的罕见切割核酸内切酶(rare cutting endonuclease),具体地为tale-核酸酶 (tal效应子核酸内切酶)和编码此种多肽的多核苷酸,以精确地靶向t细胞中的关键基因的筛选,所述t细胞可从供体获得或从原代细胞的培养物获得。本发明还涉及可以带入到此种工程化的t细胞中的其它属性,诸如pretcrα (“ptα”)及其功能性衍生物、嵌合抗原受体(car)、多链car,并且涉及它们用于增强免疫治疗的效果(功效)的用途。本发明打开了通向治疗癌症和病毒感染的标准且实惠的过继免疫治疗(adoptive immunotherapy)策略的道路。
背景技术:
1、涉及在体外生成的自体抗原特异性t细胞的转移的过继免疫治疗是一种具有前景的用于治疗病毒感染与癌症的策略。用于过继免疫治疗的所述t细胞可以通过经由基因工程的抗原特异性t细胞的扩增或t细胞的重定向来生成(park, rosenberg et al. 2011)。转移病毒抗原特异性t细胞是一种用于治疗移植相关性病毒感染和罕见病毒相关性恶性肿瘤的业已成熟的程序。类似地,肿瘤特异性t细胞的分离和转移已经表明在黑素瘤的治疗中的成功性。
2、通过基因转移转基因t细胞受体和嵌合抗原受体(car)已经成功地生成了t细胞的新型特异性(jena, dotti et al. 2010)。car是由与单个融合分子中的一个或多个信号结构域相关的靶向部分组成的合成受体。通常,car的结合部分由单链抗体(scfv)的抗原结合结构域组成,所述单链抗体包含由柔性接头接合的单克隆抗体的轻且可变的片段。还已经成功地使用了基于受体或配体结构域的结合部分。第一代car的信号结构域来源于cd3ζ(cd3zeta)或fc受体γ链的胞质区。已经证明第一代car成功地重定向了t细胞细胞毒性,但是它们在体内未能提供延长的扩增和抗肿瘤活性。来自包括cd28、ox-40 (cd134)和4-1bb(cd137)的共刺激分子的信号结构域已经被单独的添加(第二代)或组合添加(第三代)以增强car改变的t细胞的存活并且提高增殖。car已经成功地允许t细胞重定向至由包括淋巴瘤和实体瘤的各种恶性肿瘤表达在肿瘤细胞表面上的抗原(jena, dotti et al. 2010)。
3、当前的car结构均建立在这样的设计上,其中所有相关的结构域均被包含在单个多肽中。这种设计需要信号结构域的系列附加,因此需要从它们天然的近膜位置移动一些结构域。因此,其中配体和信号结构域是分开的结构可以允许提高置于它们正常的近膜位置中的不同链上的共刺激结构域的功能,而不是与一些位于血浆膜远端的结构域附加在一起。天然受体,对于ige具有高亲和力的受体(fcεri),可以提供此种结构。存在于肥大细胞和嗜碱细胞(basophils)上的fcεri以高亲和力结合ige。fcεri是一种由配体结合α亚基、β亚基和两信号转导γ亚基的同源双体(同型二聚体,homodimer)组成的四聚体受体复合物(metzger, alcaraz et al. 1986)。fcεri α结构域由含有两个结合ige的ig-样结构域的细胞外结构域、跨膜结构域和短胞质尾组成。β亚基含有四个将氨基和羧基末端胞质尾分开的跨膜片段。γ链主要由跨膜区和含有一个基于免疫受体酪氨酸的活化基序(itam)的胞质尾组成(cambier 1995)。tcr复合物的ζ链紧密地与γ链相关并且可以替换fcεri的γ链(howard, rodewald et al. 1990)。
4、使用过继免疫治疗来治疗患者的当前协议以自体细胞转移为基础。在这种方法中,从患者中回收t淋巴细胞,体外基因改造或筛选,如果需要体外培养以扩增数目并且最后注入到患者中。除了淋巴细胞输注之外,可以支持t细胞的植入或它们参予免疫反应的其它方式来操纵宿主,例如预调节(pre-conditioning)(放疗或化疗)和施用淋巴细胞生长因子(诸如il-2)。每位患者接收使用该患者自身的淋巴细胞单独设计的治疗(即,自体治疗)。自体治疗面临向实际应用的巨大技术和后勤障碍,它们的生成需要昂贵的专用设备和专业人员,它们必须在患者确诊后短时间内生成,并且在许多情况下,患者的预治疗导致退化的免疫功能,由此该患者的淋巴细胞可能功能不佳并且以非常低的数目存在。由于这些障碍,每位患者的自体细胞制剂是有效的新产品,导致有效性和安全性的大幅变化。理想地,可能想要使用标准疗法,其中可以预先制备同种异体治疗细胞,其特点是详细且可以立即施用给患者。“同种异体”是指所述细胞获自属于同一物种但基因相异的个体。但是,使用同种异体细胞目前具有许多缺点。在免疫功能正常的(免疫活性的,immune-competent)宿主中,同种异体细胞迅速被排斥,这是一种称为宿主抗移植物排斥反应(hvg)的过程,并且这大幅地限制了转移细胞的效能。在免疫无能的宿主中,同种异体细胞能够移植,但是它们的内源性tcr特异性将宿主组织识别为外来的,导致移植物抗宿主病(gvhd),这可能导致严重的组织损伤和死亡。为了有效地利用同种异体细胞,这些问题均必须克服。
5、在免疫功能正常的宿主中,同种异体细胞被宿主的免疫系统迅速的排斥。已经证明,存在于非辐照血液制品中的同种异体的白细胞会持续不超过5至6天(boni, muranskiet al. 2008)。因此,为了防止同种异体细胞的排斥反应,必须有效地抑制宿主的免疫系统。在治疗上广泛地将糖皮质激素类固醇类用于免疫抑制(coutinho和chapman 2011)。这一类类固醇激素结合至存在于t细胞的胞液中的糖皮质激素受体(gr),导致向核中的移位以及特异性dna基序的结合,所述特异性dna基序调节许多涉及免疫过程的基因的表达。使用糖皮质激素类固醇类对t细胞的治疗导致降低水平的细胞因子的产生,引起t细胞无反应性并且干扰t细胞活化。阿仑单抗也称为campath1-h,是一种靶向cd52(一种12个氨基酸的糖基磷脂酰基-肌醇-(gpi)连接的糖蛋白)的人源化单克隆抗体(waldmann和hale 2005)。在t和b淋巴细胞上高水平表达cd52,且在单核细胞上则低水平表达,而在粒细胞和骨髓前体上则不存在。使用阿仑单抗(一种靶向cd52的人源化单克隆抗体)的治疗已经证明引发了循环淋巴细胞和单核细胞的快速耗尽。其被频繁地用在t细胞淋巴瘤的治疗中并且在某些情况下作为移植用调理方案的一部分。但是,在过继免疫治疗的情况下,免疫抑制药物的使用还对引入的治疗t细胞具有不利影响。因此,为了在这些条件下有效地使用过继免疫治疗方法,所引入的细胞需要耐受免疫抑制治疗。
6、另一方面,t细胞受体(tcr)是参与响应于抗原的呈递而活化t细胞的细胞表面受体。tcr一般由α和β两个链组成,它们组装以形成异源二聚体并且与cd3-转导亚基联合以形成存在于细胞表面上的t细胞受体复合物。tcr的每个α和β链由免疫球蛋白样n末端可变区(v)和恒定区(c)、疏水性跨膜结构域和短的胞质区组成。对于免疫球蛋白分子,所述α和β链的可变区由v(d)j重组生成,在t细胞的群体中产生较大多样性的抗原特异性。但是,与识别完整抗原的免疫球蛋白相反,t细胞是由与mhc分子相关的经加工的肽片段而活化的,通过t细胞向抗原识别引入一个额外的维度,称为mhc限制。通过t细胞受体对供体和接受者之间的mhc差异的识别,导致t细胞增殖和gvhd的潜在发展。已经证明,tcr的正常表面表达依赖于复合物的所有七个组分的协同合成以及组装(ashwell和klusner 1990)。tcrα或tcrβ的失活能够导致tcr从t细胞表面的消除,防止识别同种异体抗原并由此防止gvhd。但是,tcr破坏导致cd3信号组分的消除并且改变进一步t细胞扩增的方法。
7、t细胞介导的免疫包含在微调免疫反应的共刺激信号和抑制信号之间的平衡调控的多个连续的步骤。被称为免疫检查点的抑制信号对于自身耐受的维护是至关重要的并且还限制免疫介导的附属组织(侧支组织,collateral tissue)损伤。免疫检查点蛋白质的表达可以由肿瘤下调。肿瘤增选这些抑制路径的能力代表了免疫抵抗力的重要机制并且限制免疫治疗的成功。激活治疗性t细胞免疫反应的有前景的方法之一是封锁这些免疫检查点(pardoll 2012)。免疫检查点代表了对癌症中功能性细胞免疫的活化的显著障碍,特异于t细胞上的抑制配体的拮抗抗体包括ctla4和程序性死亡-1 (pd-1),是临床中被评估的靶向剂的实例。
8、细胞毒性t淋巴细胞相关抗原4(ctla-4; 也被称为cd152)下调t细胞活化的幅度,并且使用拮抗剂ctla4抗体(易普利姆玛(lipilimumab))的治疗在患有黑素瘤的患者中已经显示出生存益处(robert和mateus 2011)。程序性细胞死亡蛋白1(pd1或pdcd1,也被称为cd279)代表了免疫治疗用的另一种非常有前景的靶(pardoll和drake 2012; pardoll2012)。与ctla-4相反,pd1在对感染的炎症反应时限制t细胞效应子在周围组织中的功能并且限制自身免疫性。使用pd1抗体的一期临床试验显示了肿瘤消退的一些病例(brahmer,drake et al. 2010)。基于最近的研究,多重额外的免疫检查点蛋白代表了治疗封锁(therapeutic blockade)用的有前景的目标。
9、在正常的t细胞中,从前-t细胞受体(ptcr)散发出t细胞受体,所述前t细胞受体是由不成熟的胸腺细胞表达的并且对于t细胞从双阴性(cd4- cd8-)阶段向双阳性(cd4+ cd8+)阶段的发展是至关重要的。在tcrβ基因座的生产性重排中成功的前-t细胞表达功能性tcrβ链,其与不变的pretα(前tα)链和cd3信号组分配对以形成前-tcr复合物。pretcr在细胞表面的表达对于触发β-选择是必要的,该β-选择是诱导发育中的t细胞扩增的一个过程,其增强tcrβ基因座的等位基因排斥并且导致在tcrα基因座处引入重排(von boehmer2005)。在生产性tcrα重排以及ptα被tcrα取代以形成成熟的tcr之后,在结合在胸腺上皮细胞上表达的自肽mhc复合物时,胸腺细胞经历第二步选择,被称为阳性或tcrα/β选择。因此,成熟的t细胞通过它们的tcr识别并且响应抗原/mhc复合物。tcr活化的最直接的后果是,通过缔合的cd3亚基而起始化信号途径,产生多重事件,包括t细胞的克隆扩增、细胞表面上活化标志物的上调和细胞毒作用或细胞因子分泌的引入。
10、因为在胸腺发育的过程中通过与pretα(前tα)配对的tcrβ的选择的性质,在tcrα已经被失活的t细胞中,ptα转基因的异源引入能够导致pretcr(前tcr)的形成。这种ptcr可以非mhc依赖性方式用作t细胞活化或刺激的工具,因此例如在tcrα失活之后允许α/β t细胞的连续扩增。重要的是,就缔合的cd3亚基而言,所述ptcr复合物表现出与tcr相似的生物化学组成(carrasco, ramiro et al. 2001)。此外,与tcr相反,pre-tcr信号可以部分地通过配体独立性事件而发生。ptcr胞外结构域的晶体结构为ptcr信号的可能配体独立性提供了结构基础。所述ptcr已经被证明形成尾二聚体,其中两个ptα-tcrβ杂二聚体缔合(pang,berry et al. 2010)。
11、在本发明中,发明人们已经实现了基因修改的t细胞的生产,其克服了当前免疫治疗策略的限制,允许它们非同种异体且高活性。虽然使用抗体已经实现了免疫检查点的封锁,另一种方式是通过失活t细胞中免疫检查点基因的表达来实现抑制,这允许工程化的同种异体t细胞理想地生产为“现成的(off the shelf)”产物。通过使用靶向tcrα或tcrβ的特异性tale-核酸酶的基因失活再加上编码免疫检查点蛋白(诸如pd1和ctla-1)的基因的失活来使得这成为可能。
12、特别地,tcrα或tcrβ的失活加上来源于同种异体供体的t淋巴细胞中免疫检查点基因的失活,通过消除担负识别mhc差异的tcr而显著地降低了gvhd的风险,同时允许引入的淋巴细胞的增殖和活性。因此,这些修改的同种异体t细胞预计在患者血液中具有高活性,在那里它们可以靶向肿瘤细胞或受感染的细胞。
13、除了同时可以是非同种异体反应性和高活性的基因修改的t细胞的上述构思之外,发明人们通过特异性talc-核酸酶的使用和设计,已经同时失活了t细胞中这些不同的基因,由此获得双突变体。事实上,由于在培养物中生产t细胞和随时间推移将t细胞维持至它们的低转化率的难度、以及在选择工序中的损失,到目前为止尚未在t细胞中实现通过dsb的双基因靶向。这些难度使得成功获得此类细胞的概率较低。
14、因此,本发明的一个显著部分是设计出特异性tale-核酸酶,允许t细胞中dsb事件率较高,其能够被细胞良好地耐受,(特别是在共转染时),能够靶向选择根据本发明所述的基因。通过使用罕见切割核酸内切酶,诸如本文中所描述的tale-核酸酶,显著地提高了在转染的t细胞中获得基因的双失活的概率,由此现在使用标准工序似乎能够经常生产可从供体获得的工程化t细胞。
15、另外,本发明提议了一个实施方式,其中将t细胞工程化以在tcrα被失活时允许增殖。已经经历了tcr亚基失活的t细胞的一个重大问题是,所述细胞不再能通过cd3复合物来扩增。为了克服这一问题,发明人们确实提供了扩增t细胞的方法,所述t细胞中的tcrα已经通过cd3复合物被失活,该方法通过在所述细胞中表达pretα,由此在不存在功能性α/β tcr的条件下修复功能性cd3复合物。
16、最后,使用car进一步转化t细胞以将同种异体细胞特异性地再导向至独立于mhc的肿瘤相关性抗原。具体地,本发明涉及多链car,其中共刺激结构域被置于它们的正常近膜位置,从而提高它们的功能并因此增强存活和提高工程化的t细胞的增殖。因此,本发明提供了允许有效转化过继免疫治疗用同种异体t细胞并且允许它们易于扩增的方法、多肽和多核苷酸。
技术实现思路
1、在一个方面,本发明公开了工程化t细胞(特别是可获自供体的同种异体t细胞)以使得它们适于免疫治疗目的的方法。本发明的方法更具体地通过失活或替换涉及mhc识别和/或免疫检查点蛋白的基因而允许精确修改与免疫治疗相关的细胞的基因组。在某些实施方式中,所修改的与免疫治疗相关的细胞进一步包含外源性重组多核苷酸,其编码用于特异性细胞识别的car。本car是需要串行附加信号结构域的单一融合分子。将信号结构域从它们天然的近膜位置移开可能干扰它们的功能。因此,为了克服这种缺陷,本发明人们设计了来源于fcεri的多链car,以允许所有相关信号结构域的正常近膜位置(juxtamembraneposition)。fcεri α链的高亲和力ige结合结构域被胞外配体结合结构域诸如scfv替换,以将t细胞特异性再导向至细胞靶,并且fcεri β链的n和/或c末端尾部被用来替换正常近膜位置的共刺激信号。
2、在另一个方面中,为了促进其中tcrα已经被失活的t细胞的活化或刺激,将ptα或其功能性变体引入到经工程化的t细胞中。所使用的ptα或其功能性变体可以是全长ptα、剪接变体(saint-ruf, lechner et al. 1998)、已经证明增加pretcr细胞表面表达的c-末端截断形式(carrasco, ramiro et al. 2001)。可以使用其它额外的比所描述的更小或更大的截断体。不同的pretα形式可以进一步包含来自其它分子(cd28、cd137、cd8、tcrα等)的信号部分以促进增殖和存活,或者包含影响其二聚能力的突变诸如先前描述的小鼠中的d22a、r24a、r102a或r117a突变(yamasaki, ishikawa et al. 2006)或者描述的人类中的w46r突变(pang, berry et al. 2010)以降低增殖潜力。car的scfv部分也可以融合到ptα或其功能性变体的胞外结构域,由此将朝向靶抗原的特异性直接与pretcr的增殖活性偶合。
3、在另一方面,本发明涉及所述多肽和多核苷酸,所述多核苷酸编码罕见切割核酸内切酶以精确地靶向上述目标基因,特别是tcrα、tcrβ、免疫检查点基因,由此使得能够基因改造免疫治疗用t细胞。本发明将这些基因中的更具体地特异性靶序列和所设计的分别靶向这些基因的tale-核酸酶。
4、本发明还涉及包含任何本文所描述的蛋白、多肽或载体的分离的细胞或细胞系。在某些实施方式中,本发明的t细胞包含失活的tcrα、tcrβ、免疫检查点基因,以利于它们在免疫治疗中的使用。本发明所述的分离的细胞或细胞系可以进一步包含外源性重组多核苷酸,特别是编码ptα或其功能性变体、car或多链car的多核苷酸。
5、在优选的实施方式中,所述改造的t细胞被用作治疗产品,理想地作为“现成的”产品。
6、在另一方面,本发明涉及用于在患者中治疗或预防癌症或感染的方法,其通过给药可由以上方法获得的工程化的t细胞。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com