
一种D-塔格糖4-差向异构酶突变体及应用的制作方法
本发明涉及异构酶,尤其涉及一种d-塔格糖4-差向异构酶突变体及应用。
背景技术:
1、d-塔格糖(d-tagatose)是一种天然存在的稀有单糖,分子式为c6h12o6,是果糖的c-4差向异构体。其甜度约为蔗糖的92%,但热量仅约1.5kcal/g(蔗糖为4kcal/g),且具有低升糖指数(gi=3)、益生元特性及抗龋齿功能,被美国fda认证为“公认安全物质(gras)”,广泛应用于无糖食品、饮料、医药及功能性保健品领域。然而,d-塔格糖在自然界中含量极低,工业化生产依赖于化学或生物催化转化,其核心挑战在于转化效率低与生产成本高,限制了大规模应用。
2、现有的d-塔格糖制备技术主要包括化学合成法和生物催化法,但均存在显著局限性。化学合成法以乳糖为原料,通过碱异构化生成乳酮糖,再经水解与差向异构化反应制备d-塔格糖。该路线需在高温(>100℃)、强碱性(ph>10)条件下进行,导致副反应频发(如焦糖化产物生成),产物分离纯化流程复杂,且总转化率以乳糖计不足40%。此外,强碱性环境加剧设备腐蚀风险与能源消耗,经济性较差,难以满足工业化生产需求。相比之下,生物催化法依赖l-阿拉伯糖异构酶(l-ai)催化d-半乳糖转化为d-塔格糖,反应条件温和(ph 6-8,温度50-70℃),但天然酶存在多重瓶颈:其一,多数l-ai对底物特异性要求严格,优先作用于纯化后的d-半乳糖,而工业化生产需直接利用乳糖水解产生的d-半乳糖与葡萄糖混合物,导致酶活性和底物利用率降低;其二,天然l-ai的催化效率受限于其较低的底物特异性和热力学平衡,导致d-塔格糖的转化率通常较低,难以满足工业化生产的需求。例如某些来源于嗜热菌(如thermotoga maritima)的l-ai,在优化条件下(ph 7.0,60℃,底物浓度100g/l)转化率仅为15%-18%左右(比如,j agric food chem.2024aug 21;72(33):18585-18593)。若转化率过低,则底物利用率低,分离纯化成本高,不利于规模化生产。其三,天然酶热稳定性不足,在高温或长时间反应中易失活,严重制约连续化生产进程。更为根本的是,现有工艺高度依赖乳糖水解获取d-半乳糖,而乳糖价格波动显著,直接推高d-塔格糖生产成本,迫使行业亟需开发非乳糖底物(如淀粉衍生物)或通过技术创新提升原料利用率。其四,目前现有d-塔格糖4-差向异构酶的反应体系存在一定局限:部分工艺需添加纯化酶,增加生产成本;部分工艺需添加高浓度菌体(约50g/l),导致操作复杂性和成本上升;且反应底物浓度偏低(约300g/l),限制了产率和效率。比如专利cn117511838a一种d-塔格糖的果糖c4差向异构酶重组大肠杆菌湿菌体及d-塔格糖的制备方法中,将d-塔格糖的果糖c4差向异构酶重组大肠杆菌湿菌体加入到底物中进行反应合成d-塔格糖,其中底物的组成为果糖330~380g/l,d-塔格糖的果糖c4差向异构酶重组大肠杆菌湿菌体与底物的加入比为40~60g/l。这些因素均不利于该酶的工业化应用。
3、上述技术缺陷与成本压力共同限制了d-塔格糖的大规模工业化应用,行业迫切需求更高效、低耗且经济可行的制备方案。
技术实现思路
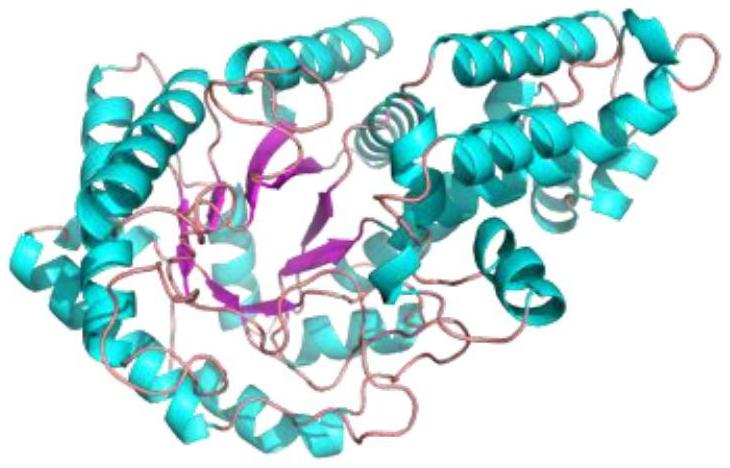
1、为解决上述问题,本发明从来源于kosmotoga olearia的d-塔格糖-二磷酸醛缩酶突变体(命名为d-塔格糖4-差向异构酶)出发,随后对该酶通过半理性方法筛选得到转化率改善的d-塔格糖4-差向异构酶突变体。具体的,首先模拟出d-塔格糖4-差向异构酶蛋白结构,随后进行分子对接,对底物附近5埃范围内的氨基酸进行丙氨酸扫描,根据结合自由能绝对值前10的氨基酸位点进行丙氨酸突变,分别为290k、187g、92d、363r、93h、24v、186g、291v、237f和268h,其中291v位点、24v位点、363r位点显示出较高的转化率,随后对这些位点进行饱和突变,得到了转化率较d-塔格糖4-差向异构酶提高的突变体。
2、本发明中的所述d-塔格糖4-差向异构酶的氨基酸序列如seq id no:2所示,或与seq id no:2所示的序列具有至少80%、至少85%、至少90%、至少95%、至少96%、至少97%、至少98%、至少99%、至少99.5%同一性的氨基酸序列。所述d-塔格糖4-差向异构酶来源于kosmotoga olearia的d-塔格糖-二磷酸醛缩酶。所述d-塔格糖4-差向异构酶具有催化d-己酮糖(如d-塔格糖、d-果糖)的c4差向异构化反应的活性。
3、本发明第一方面,提供一种d-塔格糖4-差向异构酶突变体,其氨基酸序列为(a)-(c)任一种:
4、(a)其氨基酸序列由seq id no:2所示序列突变而来,在选自下组的一个或多个氨基酸残基位点发生突变:第24位、第92位、第93位、第186位、第187位、第237位、第268位、第290位、第291位、第363位;并且具有d-塔格糖4-差向异构酶活性;
5、(b)所述d-塔格糖4-差向异构酶突变体与(a)所述的氨基酸序列具有80%,优选90%,优选95%,优选98%,更优选99%的序列同一性,并且具有(a)所述d-塔格糖4-差向异构酶突变体的功能,其中对应于seq id no:2所示氨基酸序列的第24位、第92位、第93位、第186位、第187位、第237位、第268位、第290位、第291位、第363位氨基酸残基与(a)所述的氨基酸序列中的相同;
6、(c)所述d-塔格糖4-差向异构酶突变体由在(a)所述的氨基酸序列的c末端和/或n末端添加或缺失1-30个,更优选1-10个,还要优选1-6个,最优选1-3个氨基酸残基而组成,并且具有(a)所述d-塔格糖4-差向异构酶突变体的功能,其中对应于seq id no:2所示氨基酸序列的第24位、第92位、第93位、第186位、第187位、第237位、第268位、第290位、第291位、第363位氨基酸残基与(a)所述的氨基酸序列中的相同。
7、本发明一实施方式中,所述突变的氨基酸残基位点包括:第24位、第291位、第363位中一种或几种。
8、本发明一实施方式中,所述d-塔格糖4-差向异构酶突变体的氨基酸序列包含选自下组的一个或多个位点的氨基酸取代:k290a、g187a、d92a、r363a、h93a、v24a、g186a、v291a、f237a、h268a。本发明一实施方式中,所述氨基酸取代选自v291a、v24a、r363a。
9、本发明一实施方式中,所述d-塔格糖4-差向异构酶突变体在选自下组的一个或多个氨基酸残基位点发生定点饱和突变:第24位、第291位、第363位。
10、本发明一实施方式中,所述定点饱和突变包括v291f、v291s、v291y、v291c、v291w、v291h、v291r、v291p、v291q、v291n、v291k、v291m、v291d、v291g、v291e、v291t、v291i、v291l、v24f、v24s、v24y、v24c、v24w、v24h、v24r、v24p、v24q、v24n、v24k、v24m、v24d、v24g、v24e、v24t、v24i、v24l、r363f、r363s、r363y、r363c、r363w、r363h、r363v、r363p、r363q、r363n、r363k、r363m、r363d、r363g、r363e、r363t、r363i、r363l任意一种。优选的,所述定点突变包括v291c、v24f、r363g中至少一种。
11、本发明一实施方式中,所述d-塔格糖4-差向异构酶突变体的突变位点包括以下任意一种:v291c、v24f、r363g、v291c+v24f、v291c+r363g、v24f+r363g、v291c+v24f+r363g。
12、本发明一实施方式中,所述d-塔格糖4-差向异构酶突变体的氨基酸序列如seq idno:4、seq id no:6、seq id no:8、seq id no:10、seq id no:12、seq id no:14、seq idno:16任一所示,或与seq id no:4、seq id no:6、seq id no:8、seq id no:10、seq id no:12、seq id no:14、seq id no:16任一所示序列具有至少80%、至少85%、至少90%、至少95%、至少96%、至少97%、至少98%、至少99%、至少99.5%同一性的氨基酸序列。
13、本发明一实施方式中,相较于d-塔格糖4-差向异构酶,所述d-塔格糖4-差向异构酶突变体具有提高的转化率。
14、本发明一实施方式中,相较于d-塔格糖4-差向异构酶,所述d-塔格糖4-差向异构酶突变体在催化d-果糖转化为d-塔格糖的反应中具有提高的转化率。
15、本发明第二方面,提供一种重组多肽,所述重组多肽包括上述d-塔格糖4-差向异构酶突变体,以及与所述d-塔格糖4-差向异构酶突变体融合的外源多肽。
16、本发明第三方面,提供一种分离的多核苷酸,所述多核苷酸包含编码上述d-塔格糖4-差向异构酶突变体的核苷酸序列,或包含编码上述重组多肽的核苷酸序列。
17、本发明第四方面,提供一种重组表达载体,所述重组表达载体包含上述分离的多核苷酸。
18、在本发明一实施方式中,所述重组表达载体包括但不限于质粒、病毒载体、噬菌体载体、穿梭载体或人工染色体,所述载体适用于在宿主细胞中表达所述d-塔格糖4-差向异构酶突变体。
19、本发明一实施方式中,所述多核苷酸与一个或多个调控序列可操作地连接。本发明一实施方式中,所述调控序列包括但不限于启动子、核糖体结合位点、操纵子、转录终止子以及可选的增强子或沉默子的核苷酸序列,所述调控序列用于在宿主细胞中调控所述d-塔格糖4-差向异构酶突变体的转录、翻译及表达,从而实现突变体酶的有效合成。
20、本发明第五方面,提供一种重组宿主细胞,所述重组宿主细胞包含上述d-塔格糖4-差向异构酶突变体、重组多肽、分离的多核苷酸、重组表达载体。
21、本发明一实施方式中,所述重组宿主细胞包括大肠杆菌、枯草芽孢杆菌、谷氨酸棒杆菌、毕赤酵母、酿酒酵母、乳酸菌中的一种。本发明一实施方式中,所述重组宿主细胞为大肠杆菌。
22、本发明另一方面,还提供一种组合物,包括上述d-塔格糖4-差向异构酶突变体、重组多肽、多核苷酸、重组表达载体、重组宿主细胞,或其组合。
23、本发明第六方面,提供上述d-塔格糖4-差向异构酶突变体、重组多肽、分离的多核苷酸、重组表达载体或重组宿主细胞的以下任一用途:
24、(a)用于催化d-果糖与d-塔格糖的相互转化,或制备催化d-果糖与d-塔格糖相互转化的试剂;
25、(b)用于合成d-塔格糖,或制备合成d-塔格糖的试剂;
26、(c)用于合成d-果糖,或制备合成d-果糖的试剂。
27、本发明第七方面,提供一种合成d-塔格糖的方法,所述方法包括利用上述d-塔格糖4-差向异构酶突变体、重组多肽、分离的多核苷酸、重组表达载体或重组宿主细胞合成塔格糖的步骤。
28、本发明一实施方式中,所述方法还包括纯化或分离所述d-塔格糖的步骤;
29、本发明一实施方式中,在合成塔格糖的步骤中,反应温度为15℃-90℃,反应时间为0.5h以上。
30、本发明一实施方式中,在15℃-90℃的温度下培养重组宿主细胞。例如,可在15℃、16℃、17℃、18℃、19℃、20℃、21℃、22℃、23℃、24℃、25℃、26℃、27℃、28℃、29℃、30℃、31℃、32℃、33℃、34℃、35℃、36℃、37℃、38℃、39℃、40℃、41℃、42℃、43℃、44℃、45℃、46℃、47℃、48℃、49℃、50℃、51℃、52℃、53℃、54℃、55℃、56℃、57℃、58℃、59℃、60℃、61℃、62℃、63℃、64℃、65℃、66℃、67℃、68℃、69℃、70℃、71℃、72℃、73℃、74℃、75℃、76℃、77℃、78℃、79℃、80℃、81℃、82℃、83℃、84℃、85℃、86℃、87℃、88℃、89℃、90℃的温度下培养细胞。
31、本发明一实施方式中,将细胞培养0.5h或更长的时间段。例如,可将细胞培养0.5h-72h,具体地,培养时间可为0.5h、1h、1.5h、2h、3h、4h、6h、8h、10h、12h、16h、20h、24h、28h、32h、36h、40h、44h、48h、60h、72h。在一些实施方式中,将细胞培养6-12h。在一些实施方式中,将细胞培养12-24h。在一些实施方案中,将细胞在70℃的温度下培养6-12h。
32、本发明第八方面,提供一种制备上述d-塔格糖4-差向异构酶突变体的方法,所述方法包括培养上述重组宿主细胞,从重组宿主细胞或其培养物中回收所述塔格糖4-差向异构酶突变体的步骤。
33、相比于现有技术,本发明具有如下有益效果:
34、本发明得到的d-塔格糖4-差向异构酶突变体酶转化率高(由18.23%增长至25.1%),较突变前提高了约37.8%,远超现有技术中单点突变的预期效果(通常较突变前提高5-10%)。
35、一般情况下,在相对较低的细胞密度,可能会限制酶的催化效率,尤其在高底物浓度下;高底物浓度可能导致底物抑制(substrate inhibition),对酶的活性产生负面影响。而本发明中该酶在较低菌体添加量(约25g/l)和较高底物浓度(约700g/l)条件下仍能维持高效催化性能,表明该重组工程菌具有良好的催化活性和稳定性,具有工业应用潜力。
36、本发明的突变位点及氨基酸取代为首次发现,现有技术并未报道;且结构分析和计算模拟(如rosetta、alphafold)无法预测这些非保守位点突变对底物抑制缓解和转化率的显著影响。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com