
重组脂肪酶突变体、编码基因、载体、工程菌及应用
本发明涉及分子生物学与生物,具体地说,涉及利用分子改造技术制备一种具有立体选择性脂肪酶突变体及其编码基因,含有该编码基因的载体、工程菌及其应用。
背景技术:
1、手性化合物广泛存在于药物、农药及精细化学品中。由于不同对映异构体在药理活性、代谢行为及安全性方面可能存在显著差异,获得单一构型或高光学纯度的手性中间体是药物合成中的关键环节。3-(噻吩-2-基硫代)丁酸甲酯经选择性水解可获得(s)-3-(噻吩-2-基硫代)丁酸,该化合物可作为盐酸多佐胺等药物合成的重要手性中间体,其对映体纯度会影响后续药物合成质量。
2、目前该类手性中间体的制备仍较多依赖化学拆分或多步化学合成。上述方法虽然具有一定工艺基础,但通常存在工艺步骤较多、拆分剂或有机溶剂用量较大、后处理负担较重以及环境友好性不足等问题。因此,开发反应条件温和、选择性较好、绿色高效的生物催化拆分方法具有重要应用价值。
3、脂肪酶是一类应用广泛的生物催化剂,能够在温和条件下催化酯类化合物的水解、酯化和转酯化反应,并常用于手性药物中间体的动力学拆分。南极假丝酵母脂肪酶b(candida antarctica lipase b,calb)具有较好的底物适应性和表达基础,但野生型calb在部分体积较大或结构复杂的手性底物拆分中仍可能存在立体选择性不足的问题,限制其进一步应用。
4、为提高calb对3-(噻吩-2-基硫代)丁酸甲酯的选择性,有必要通过蛋白质工程手段对其活性口袋相关位点进行改造,并建立适合突变体表达、纯化和催化应用的工程菌体系,从而获得一种能够用于该底物高效拆分的重组脂肪酶突变体。
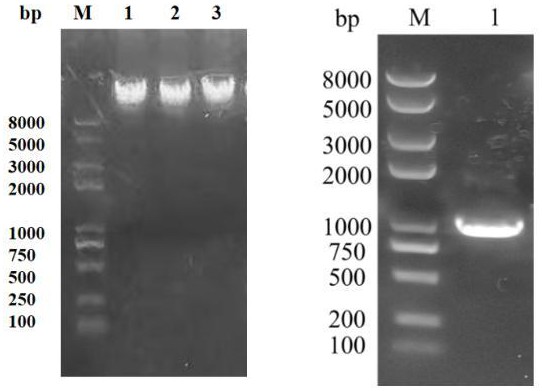
技术实现思路
1、本发明目的是提供一种高立体选择性重组脂肪酶突变体、编码基因、含有该基因的重组载体、该重组载体转化得到的重组基因工程菌,及其在生物法拆分3-(噻吩-2-基硫代)丁酸甲酯中的应用,解决了用野生型重组脂肪酶制备(s)-3-(噻吩-2-基硫代)丁酸、(s)-3-(噻吩-2-基硫代)丁酸过程中ee.值偏低的技术难题。该重组脂肪酶突变体在转化率达到57.4%时,(s)-3-(噻吩-2-基硫代)丁酸的ees达到了86.7%,(r)-3-(噻吩-2-基硫代)丁酸ees仍保持在61.6%以上。
2、本发明采用的技术方案是:
3、本发明提供一种立体选择性重组脂肪酶突变体,所述重组脂肪酶突变体氨基酸序列如seq id no.1 所示。
4、因为氨基酸序列具有特殊性,所有含有与seq id no.1所示氨基酸序列的多肽片段及其变体类型,比如保守性变体、生物活性片段或者衍生物,如果该多肽片段或者是多肽变体与上述氨基酸序列的同源性达到90%以上、而且有相同的酶活性,均属于本发明保护范围之列。具体的,所述改变如氨基酸的插入、缺失、替换;或者所替换的氨基酸具有与原氨基酸相似的结构或化学性质,例如用异亮氨酸替换亮氨酸;也或者是非保守性改变,例如用甲硫氨酸替换成甘氨酸。
5、所述蛋白其产生形式可以是天然蛋白、重组蛋白、合成蛋白,或是使用重组技术从原核或真核宿主中合成。依据重组生产使用的宿主不同,本发明的蛋白其形式可以是糖基化的。本发明的蛋白可以含有或不含有起始的甲硫氨酸残基。
6、本发明还涉及所述重组脂肪酶突变体的编码基因,所述编码基因的脂肪酶序列如seq id no.2 所示:
7、本发明重组脂肪酶突变体的编码基因由如下方法得到:以ppic9k-calb为模板质粒,设计一对突变引物l144y-f(5'-tatgatgcattggctgtctct-3')和l144y-r(5'-gacagccaatgcatcataaggtccagccagaac-3'),在pcr仪上进行全质粒扩增,在calb编码序列中引入l144y突变,得到含有所述重组脂肪酶突变体编码基因的重组质粒ppic9k-calb(l144y)。将测序正确的重组质粒经线性化处理后电转化至毕赤酵母gs115感受态细胞中,经筛选和菌落pcr验证,获得重组毕赤酵母gs115/ppic9k-calb(l144y),所述重组脂肪酶突变体编码基因位于该重组载体内。
8、因为核苷酸序列具有特殊性,所有与seq id no.2所示多核苷酸的变体,只要与该多核苷酸具有超过70%的同源性、功能相同,均属于本发明保护范围之列。所述多核苷酸的变体是指改变其中一个或多个核苷酸的多核苷酸序列。
9、本发明另外涉及包含所述重组脂肪酶突变体编码基因的重组质粒,以及用所述重组质粒转化宿主菌获得的重组基因工程菌gs115/ppic9k-calb-(l144y);所述重组质粒优选以ppic9k为基础表达载体,宿主菌优选毕赤酵母gs115。
10、本发明另外涉及所述重组脂肪酶突变体编码基因在制备重组脂肪酶突变体中的应用,具体所述的应用是:构建含有所述重组脂肪酶突变体基因的重组质粒ppic9k-calb(l144y),将所述重组质粒转化到毕赤酵母gs115中,得到重组毕赤酵母gs115/ppic9k-calb(l144y)。重组毕赤酵母经发酵和甲醇诱导后,所述重组脂肪酶突变体分泌表达至发酵液中;发酵液经离心去除菌体,收集含有重组脂肪酶突变体的发酵上清液,即为上清粗酶液。将所述上清粗酶液经超滤浓缩后,上样至ni-nta亲和层析柱,目的蛋白被柱子吸附,杂蛋白流穿,最后通过洗脱液洗脱得到纯化后的重组脂肪酶突变体纯酶。
11、本发明另外涉及所述重组脂肪酶突变体在拆分3-(噻吩-2-基硫代)丁酸甲酯中的应用。所述应用是以含有重组脂肪酶突变体编码基因的工程菌经发酵培养获得的上清粗酶液,或者所述上清粗酶液经纯化后的纯酶液为催化剂,加入外消旋体3-(噻吩-2-基硫代)丁酸甲酯作为底物,以磷酸盐缓冲液为反应介质,在20-50℃、500-1000rpm条件下进行拆分反应;反应结束后,将反应液分离纯化,获得(s)-3-(噻吩-2-基硫代)丁酸和(r)-3-(噻吩-2-基硫代)丁酸甲酯。
12、进一步地,所述底物在反应介质中的终浓度为0.05-0.30 mol/l,优选为0.15mol/l;反应温度是35-40℃、反应时间10-16h。催化剂加入量以酶活计为20-40u/ml反应体系。
13、本发明所述终产物分离纯化方法为:反应结束后,向反应液中加入12m浓盐酸调节至ph=2.0以终止反应,使产物酸以游离酸形式存在;随后采用有机溶剂正己烷萃取,分离有机相并浓缩,得到目标产物(s)-3-(噻吩-2-基硫代)丁酸。
14、本发明所述上清粗酶液按以下步骤获得:将含有重组脂肪酶突变体所编码基因的工程菌gs115/ppic9k-calb(l144y)接种至bmgy培养基中进行种子培养,优选种子液培养时间为16h;将种子液转接至诱导培养基bmmy中,在30℃条件下培养,并补加甲醇诱导所述重组脂肪酶突变体分泌表达,优选初始诱导ph为5.0,诱导时间为72h;诱导结束后离心去除菌体,收集发酵上清液,即得到含有所述重组脂肪酶突变体的上清粗酶液。进一步进行5l发酵罐放大培养时,在发酵96-120h时酶活力可达到峰值,最高酶活力可达74.6u/ml。
15、本发明所述纯酶液按以下步骤获得:取上述上清粗酶液,经10kda超滤膜或10kda超滤离心管浓缩后,上样至ni-nta亲和层析柱。所述ni-nta亲和层析柱优选采用50mmol/ltris-hcl缓冲液作为基础缓冲液,采用含咪唑和nacl的tris-hcl缓冲液进行洗脱,检测波长为280nm。上样结束后,用平衡缓冲液冲洗未结合杂蛋白至基线平稳,随后采用咪唑浓度梯度洗脱结合蛋白,收集含有所述重组脂肪酶突变体的洗脱组分,经超滤浓缩和脱盐后,得到重组脂肪酶突变体纯酶液。
16、与现有技术相比,本发明的有益效果主要体现在:本发明对野生型脂肪酶calb进行了定点突变,得到了立体选择性提高的突变体。该突变体可通过毕赤酵母gs115分泌表达体系进行高效表达,构建得到gs115/ppic9k-calb(l144y)工程菌;该工程菌发酵上清液经ni-nta亲和层析纯化后可获得重组脂肪酶突变体纯酶。利用所述工程菌发酵上清粗酶液或纯酶液作为生物催化剂拆分外消旋体3-(噻吩-2-基硫代)丁酸甲酯,可获得目标产物(s)-3-(噻吩-2-基硫代)丁酸。在优选反应条件下,底物水解的对映体过量(ees值)可达到86.7%,产物对映体过量(eep值)可达到61.6%,转化率可达到57.0%左右以上。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com