
一种用于全细胞催化合成亚精胺的增强型表面展示工程菌
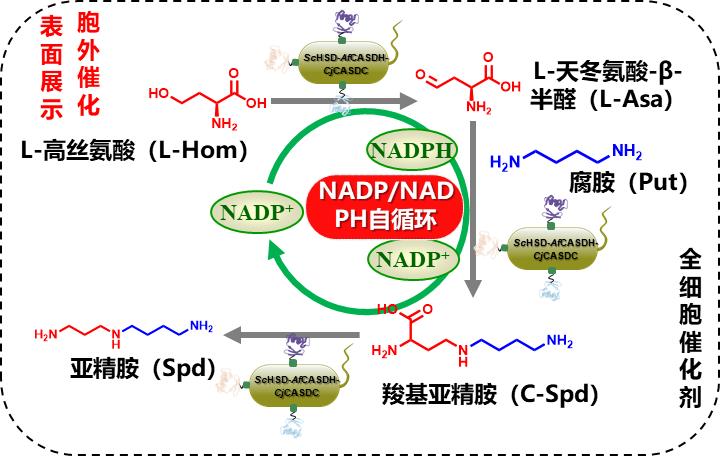
本发明属于合成生物学,具体涉及一种利用基因工程菌生产亚精胺的方法。
背景技术:
1、亚精胺(spermidine)是一种广泛存在于所有生物体中天然的自噬诱导剂,参与细胞dna复制、mrna转录、蛋白质翻译等重要的生命过程,以及机体应激反应保护和新陈代谢稳态等多种病理生理过程,具有抗肿瘤、抗衰老、抗炎、心血管保护和神经调节等多种生物活性功能。亚精胺衍生物因其优异的抗氧化、抗衰老和促进自噬作用,已被应用于医药和化妆品领域,有望为消费者提供更安全、更有效的原料。
2、据报道,亚精胺生物合成途径主要有三种,以s-腺苷甲硫氨酸脱羧酶(dc-adomet)/亚精胺合成酶(spdsy)为主的传统合成途径,以羧基亚精胺脱氢酶(casdh)/羧基亚精胺脱羧酶(casdc)为主的替代合成途径,以及利用羧氨丙基胍丁胺脱氢酶(capadh)/氨丙基胍丁胺脱羧酶(capadc)/尿素水解酶(apauh)为主的capa途径。目前研究集中于利用代谢工程策略改造上述三种胞内代谢途径,以实现亚精胺代谢的最大通量,并结合提供充足的辅因子供应需求、修饰转运途径、启动子过表达、发酵条件的优化等策略以进一步提高亚精胺的产量。然而,上述传统的亚精胺生物合成方法主要以胞内代谢为主,尽管结合改造转运途径,仍然面临亚精胺因转运效率不足而导致的胞内积累、产生毒性等问题。
3、发明人前期研究利用nad(p)依赖型的高丝氨酸脱氢酶(hsd)与nadph依赖型的casdh偶联,构建了辅因子nadph可再生的hsd/casdh/casdc亚精胺合成途径,并进一步解决了底物l-天冬氨酸β-半醛难以获得的困难。然而,其关键的酶casdh,在胞内过表达时因折叠错误而产生包涵体,虽然通过共表达分子伴侣蛋白以及筛选其它来源casdh以解决上述问题,已经初步解决包涵体的问题,仍面临产物合成过量后细胞内累积的问题。进一步研究还发现,通过弱化亚精胺摄入系统potabcd,以及强化表达亚精胺输出蛋白mdtji功能,并未显著提高亚精胺的产量。以胞内代谢为主的全细胞催化发酵,经发酵条件优化后可显著提高产物合成的产量,但仍存在全细胞催化剂可重复利用性低、稳定性差的问题,使得亚精胺的产量难以进一步提升。因此,需要寻求高效的策略以解决亚精胺胞内转运的问题、并提高全细胞催化剂的稳定性和可重复利用性。
4、细菌表面展示技术将功能酶与锚定蛋白融合,并借助锚定结构将其定位于细胞外表面,随后利用酶展示细胞进行催化过程,因催化反应发生在细胞表面,可避免包涵体的产生、克服底物和产物跨膜转运限制问题。
5、近年来,细菌表面展示技术已被广泛应用于生物合成化学品、生物燃料、生物医药中间体及高附加值天然产物的生产领域。研究人员通过将脂肪酶、纤维素酶、醇脱氢酶、转氨酶、羧酸还原酶等功能酶展示于细胞表面,实现了脂肪酸酯、生物柴油、手性醇、氨基酸衍生物等化学品的高效全细胞催化合成,还可以进一步应用于蛋白质或肽文库筛选、环境污染治理及疫苗研发等众多领域。然而,现有表面展示系统在工业化应用过程中仍面临诸多限制。
6、首先,外源蛋白与锚定蛋白直接融合后,常导致融合蛋白空间构象发生改变,影响目标蛋白的正确折叠和活性中心暴露。特别是对于多结构域蛋白、大分子酶以及需要辅因子结合的酶类,其活性往往因空间位阻效应而显著降低。其次,目标蛋白与锚定蛋白之间的直接连接可能干扰ag43乘客结构域的跨膜转运过程,造成部分融合蛋白滞留于周质空间或形成错误折叠结构,从而降低展示效率。此外,多酶级联体系中各酶分子尺寸、结构和表面电荷分布存在显著差异,容易产生相互遮挡现象,导致关键催化位点难以接触底物,限制整体催化效率。研究发现,连接肽(linker肽)作为连接目标蛋白与锚定蛋白的重要元件,其长度、柔性、刚性以及氨基酸组成对融合蛋白的表达、转运、展示效率和催化活性具有决定性作用。目前常用linker肽主要包括柔性连接肽[(ggggs)n]、刚性连接肽[(eaaak)n]以及二者组合形成的混合型linker肽。
7、其次,对于ag43等自转运蛋白而言,其表面展示效率不仅取决于目的蛋白本身,更依赖于外膜β-桶蛋白的正确组装过程。大量研究表明,自转运蛋白最终能否成功定位于细胞表面,需要依赖细胞外膜β-桶组装机器(β-barrel assembly machinery,bam complex)完成β-桶结构插入及乘客结构域(passenger domain)的跨膜转运。大多数表面展示研究主要集中于优化启动子、诱导条件、表达水平或锚定蛋白类型,而很少关注bam复合物对展示效率的决定作用。实际上,当融合蛋白分子量较大、结构复杂或形成多酶融合蛋白时,bam系统容易发生组装效率下降,导致大量融合蛋白滞留于周质空间、发生错误折叠或被蛋白酶降解,最终造成表面展示量降低和催化活性下降。因此,外膜组装能力已成为限制高效表面展示的重要瓶颈之一。因此,通过提高bam复合物对异源融合蛋白的识别、转运和组装效率,是促进膜表面展示效率提高的一种有效的策略。
技术实现思路
1、针对现有技术中的问题,本发明提供一种表面展示细胞催化合成亚精胺的方法,将胞内代谢途径合成转移至胞外催化,有效地解决了工程菌体内亚精胺的累积及转运受限的问题。
2、本发明还提供了一种可以表面展示合成亚精胺的大肠杆菌工程菌,避免了相关酶系因胞内过表达而产生的包涵体,实现相关催化酶的有效可溶性表达。
3、为实现上述目的,本发明采用如下技术方案。
4、一种大肠杆菌,能够表面展示合成亚精胺的酶蛋白,所述酶蛋白选自高丝氨酸脱氢酶(hsd)、羧基亚精胺脱氢酶(casdh)和羧基亚精胺脱羧酶(casdc)中的至少一种;所述酶蛋白通过linker肽与载体蛋白融合表达;且所述大肠杆菌过表达外膜蛋白。
5、在一些实施例中,所述hsd的氨基酸序列如seq id no:1或2所示;所述casdh的氨基酸序列如seq id no:3或4所示;所述casdc的氨基酸序列如seq id no:5所示;所述linker肽的氨基酸序列如seq id no:6所示。
6、在一些实施例中,所述外膜蛋白选自bam a、bam b、bam c、bam d和bam e的组合或omp85。优选地,外膜蛋白为omp85。所述omp85的氨基酸序列如seq id no:7、8或9所示。
7、在一些实施例中,所述载体蛋白为ag43自转运蛋白。优选地,所述ag43自转运蛋白为全长或截断ag43自转运蛋白,所述截断ag43自转运蛋白包括ag43-700、ag-552、ag43-138或ag43-740,上述截断ag43以yp_026164.1为参考,分别保留1-52和700-1039位氨基酸,1-52和552-1039位氨基酸,1-52和138-1039位氨基酸,1-52和740-1039位氨基酸。在一些实施例中,ag43自转运蛋白的氨基酸序列如seq id no: 10所示。
8、为了更好地表达上述各蛋白,可根据大肠杆菌的密码子偏好性对其编码蛋白进行优化。在一些实施例中,所述hsd的编码核苷酸序列如seq id no:11或12所示;所述casdh的编码核苷酸序列如seq id no:13或14所示;所述casdc的编码核苷酸序列如seq id no:15所示;所述linker肽的编码核苷酸序列如seq id no:16所示;所述omp85的编码核苷酸序列为seq id no:17、18或19所示;所述ag43的编码核苷酸序列为seq id no:20所示。
9、在一些实施例中,酶蛋白为多个酶蛋白的串联。在一些实施例中,多个酶蛋白为相同的酶蛋白。为了维持蛋白的构象或形成多聚体,在一些实施例中,酶蛋白之间通过linker肽连接。所述linker肽优选为氨基酸序列如seq id no:6所示的多肽。
10、在一些实施例中,上述大肠杆菌由表面展示hsd的大肠杆菌、表面展示casdh的大肠杆菌和表面展示casdc的大肠杆菌组成。表面展示hsd的大肠杆菌、表面展示casdh的大肠杆菌和表面展示casdc的大肠杆菌细胞比重为1:1:1-3:3:2;如,1:1:1、2:1:1、2:2:1、1:2:1、1:2:2、3:2:1、3:3:1或3:3:2。
11、本发明具有以下优点:
12、本发明构建了强化ag43表面展示体系用以全细胞催化合成亚精胺。同时,采用不同的linker肽连接自转运蛋白ag43和重组蛋白,降低空间位阻效应,确保融合蛋白结构域功能正常发挥。本发明还从自转运蛋白ag43组装和跨膜转运层面优化ag43的表达,提高细菌表面展示重组蛋白的效率。本发明选用的酶可实现nad(p)再生,降低辅因子需求。本发明提供的生产亚精胺的方法过程简单且原料易得,具有良好的工业化应用前景。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com