
一种生产硫酸软骨素C的酵母工程菌、构建方法及其应用与流程
本发明属于合成生物学、代谢工程与生物制造,具体涉及一种生产硫酸软骨素c的酵母工程菌、构建方法及其应用。
背景技术:
1、硫酸软骨素c(chondroitin sulfate c,csc,又称6-硫酸化软骨素,chondroitin-6-sulfate)是硫酸软骨素家族的重要成员之一,属硫酸化糖胺聚糖。其基本骨架由d-葡萄糖醛酸(glca)和n-乙酰-d-半乳糖胺(galnac)经β(1→3)糖苷键交替连接构成重复二糖单元,结构上的典型特征在于硫酸基团选择性修饰于galnac残基的c6位羟基。csc通过调控细胞外基质结构、生长因子结合、神经可塑性、免疫细胞迁移及组织力学特性,在骨关节炎治疗、神经损伤修复、炎症性疾病干预、角膜修复和抗纤维化等领域发挥不可替代的药理活性,是医药、保健品和医美领域的高附加值活性成分。
2、目前商业化csc的传统生产完全依赖鲨鱼、牛等动物软骨组织提取,该方法存在严重局限性:一是鲨鱼等海洋生物资源稀缺;二是动物源材料存在人畜共患病病毒、朊病毒传播风险,难以满足医药级产品安全标准;三是提取产物为csa、csc、csd、cse等多种亚型的混合物,分离纯化成本高、批次间质量不均一,难以获得高纯度、位点特异性硫酸化的csc产品。化学合成法虽可在一定程度上修饰硫酸基团,但以三氧化硫-吡啶、氯磺酸等强硫酸化试剂反应时,c4位和c6位羟基硫酸化选择性差,易生成过硫酸化副产物,难以实现均一的6位特异性硫酸化。
3、为解决传统生产方法的缺陷,合成生物学技术构建微生物细胞工厂合成糖胺聚糖已成为研究热点。目前软骨素骨架的微生物合成已取得显著进展,在大肠杆菌、枯草芽孢杆菌、谷氨酸棒杆菌等宿主中通过异源表达软骨素合酶
kfoc、udp-葡萄糖脱氢酶
tuad、udp-n-乙酰半乳糖胺4-差向异构酶
kfoa等基因,软骨素产量已达数克每升水平,为cs的生物合成提供了充足前体。然而,硫酸化修饰步骤尤其是c6位的特异性硫酸化,仍是限制csc从头合成的核心瓶颈。
4、现有csc生物合成路线主要分为两类:第一类为体外酶法合成,即先通过微生物发酵获得软骨素前体,再利用纯化的软骨素-6-o-磺基转移酶(c6st),以3'-磷酸腺苷-5'-磷酰硫酸(paps)为硫酸供体,在体外反应体系中催化软骨素c6位硫酸化生成csc。但该路线存在以下缺陷:(1)paps价格昂贵,体外反应中paps再生困难,导致生产成本极高;(2)需要分别进行软骨素发酵、酶表达纯化、体外催化三步反应,工艺路线长、操作复杂、产品得率低。
5、第二类为从头合成路线,通过在微生物宿主中协同整合软骨素合成途径、磺基转移酶表达模块与paps胞内供给系统,可直接以葡萄糖或甲醇等廉价碳源为底物,通过一步发酵合成硫酸化软骨素产物,具有工艺流程短、操作简便、生产成本低等显著优势,是最具工业化潜力的技术方向。目前该路线的研究进展主要集中于硫酸软骨素a(csa,即galnacc4位硫酸化亚型)的合成:江南大学提交的专利申请cn122146725a、浙江大学提交的专利申请cn122038153a均以毕赤酵母gs115为宿主,通过系统重构软骨素合成途径、表达不同来源的c4磺基转移酶,实现了csa的高效胞内合成,摇瓶及发酵罐水平产量已达数克每升。公开号为cn112708571a、cn112708569a的专利申请虽提及可通过单独或共表达小鼠来源的c4st与c6st合成不同构型硫酸软骨素,但其构建的重组菌株中csa、csc、cse等各亚型产物产量均处于毫克每升水平,且硫酸化度未知等问题,无法获得高c6位选择性、高硫酸化度的csc产物,短时间内难以满足工业化生产需求。因此,针对毕赤酵母系统进行途径适配性优化,构建可高选择性合成硫酸软骨素c的重组工程菌,实现以葡萄糖或甲醇为碳源一步发酵高效生产csc,对于推动csc生物制造技术的产业化应用具有重要意义。
技术实现思路
1、针对现有技术的上述缺陷,本发明所要解决的技术问题为:提供一种可在毕赤酵母中以葡萄糖为碳源从头合成硫酸软骨素c的重组工程菌,解决现有体外酶法工艺复杂成本高、从头合成体系csc产量低、胞内代谢途径与硫酸化修饰适配性不足的问题,实现csc的一步发酵高效合成,为csc的规模化生物制造提供可行方案。
2、本发明采用如下的技术方案:
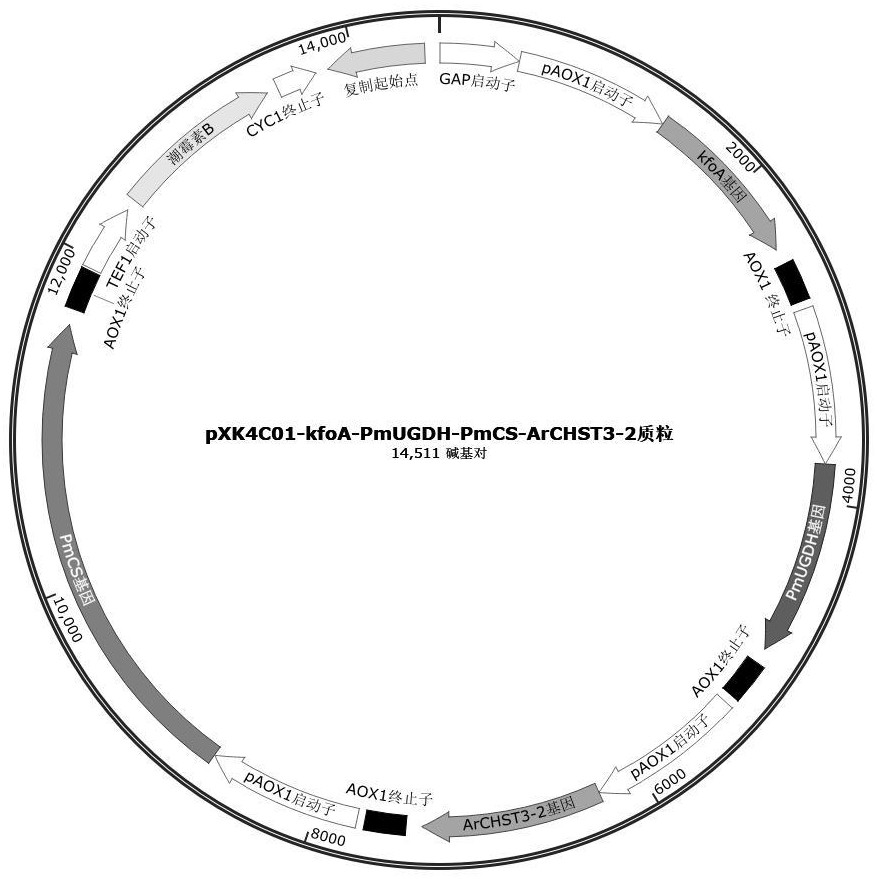
3、一种生产硫酸软骨素c的酵母工程菌,以毕赤酵母gs115为出发菌株,所述酵母工程菌的基因组gap位点整合有软骨素c合成模块,所述软骨素c合成模块包含
kfoa-pmugdh-
pmcs-archst3-2四基因串联表达盒;其中,所述
kfoa为编码udp-葡萄糖-4-差向异构酶的基因,所述
pmugdh为编码udp-葡萄糖脱氢酶的基因,所述
pmcs为编码软骨素合酶的基因,所述
archst3-2为编码软骨素6-o-磺基转移酶突变体的基因。
4、进一步优选地,所述酵母工程菌的基因组his4位点还整合有paps供给与硫酸化强化模块,所述paps供给与硫酸化强化模块包含
met3-met14-archst3-2三基因串联表达盒;其中,所述
met3为编码atp硫酸化酶的基因,所述
met14为编码腺苷酰硫酸激酶的基因。
5、进一步优选地,所述酵母工程菌的基因组his4位点附近还整合有6-o-磺基转移酶剂量放大模块,所述6-o-磺基转移酶剂量放大模块包含
archst3-2表达盒。
6、发明人分析,实现毕赤酵母中csc从头合成的主要障碍在于:真核来源的6-o-磺基转移酶在酵母胞内环境中易发生错误折叠,催化活性低,难以高效催化高分子软骨素底物的c6位硫酸化;同时异源途径基因的表达水平与宿主内源代谢网络适配性差,易导致代谢负担过重或前体泄漏。
7、于是,通过对合成路线的研究,合理选择尝试异源酶、系统重构软骨素合成与paps供给模块,以期获得可特异性从头合成csc的毕赤酵母工程菌。
8、本发明选用毕赤酵母(komagataella phaffii / pichia pastoris)gs115 作为底盘出发菌株。该菌株遗传操作体系成熟,具有高密度发酵性能优异、分泌通路清晰、可实现真核生物蛋白质折叠与二硫键形成等优势,能够为异源表达的真核来源磺基转移酶提供正确折叠与翻译后修饰所需的内质网/高尔基体环境,从而保障其催化活性与高尔基体膜定位的准确性。
9、为避免多基因在单一位点串联造成的同源重组风险与过重的局部代谢负担,并提高工程菌株在长期传代与高密度发酵过程中的遗传稳定性,本发明采用双染色体位点、三表达模块的分层整合策略,将软骨素骨架合成与硫酸化修饰两条子通路在物理上分散于基因组不同安全位点,同时通过对关键限速酶—6-o-磺基转移酶进行基因剂量递增加量,实现硫酸化修饰通量与骨架合成通量的匹配优化。
10、模块一:软骨素c合成模块(整合于gap位点)。该模块为产物合成的主干,包含四个功能基因,均由甲醇诱导型强启动子paox1驱动,以实现碳源切换后的同步高表达:(1)
pmugdh,来源于多杀性巴氏杆菌(
pasteurella multocida)的 udp-葡萄糖脱氢酶(ncbi登录号wp_005754204.1),催化 udp-葡萄糖氧化为 udp-葡萄糖醛酸(udp-glca);(2)
kfoa,来源于大肠杆菌(
escherichia coli k4)的 udp-葡萄糖-4-差向异构酶(ncbi登录号bac00525.1),将udp-glca差向异构化为udp-n-乙酰半乳糖胺(udp-galnac);(3)
pmcs,来源于多杀性巴氏杆菌的软骨素合酶(ncbi登录号wp_104228036.1),负责将udp-glca与udp-galnac交替聚合为软骨素多糖骨架;(4)
archst3-2,来源于小体鲟(
acipenser ruthenus)的软骨素 6-o-磺基转移酶突变体(ncbi登录号rxm35623.1),为去除n端83个氨基酸残基后的截短体,特异性催化软骨素骨架中galnac残基c-6位羟基的硫酸化修饰。该模块通过同源重组整合于毕赤酵母基因组gap位点,利用gap位点开放的染色质状态保障表达盒的稳定转录。
11、模块二:paps供给与硫酸化强化模块(整合于his4位点)。为缓解 6-o-硫酸化反应过程中活性硫酸供体3′-磷酸腺苷-5′-磷酰硫酸(paps)的供给瓶颈、进一步提高硫酸化水平,该模块共表达三个基因:(1)毕赤酵母内源
met14,编码腺苷酰硫酸激酶(aps kinase,ec2.7.1.25),催化腺苷-5′-磷酰硫酸(aps)磷酸化生成paps;(2)毕赤酵母内源
met3,编码atp硫酸化酶(atp-sulfurylase,ec 2.7.7.4),催化atp与无机硫酸盐缩合生成aps;(3)上述archst3-2截短突变体,作为额外的6-o-磺基转移酶剂量补充。该模块经sal i线性化后同源重组整合于his4位点。
12、模块三:6-o-磺基转移酶剂量放大模块(his4基因开放阅读框起始密码子atg上游第4700bp至第2200 bp区间内,所述同源单交换由seq id no: 11所示的同源臂序列所介导)。考虑到硫酸化修饰通常为软骨素c合成的限速步骤,且archst3-2催化效率直接决定终产物中6-o-硫酸化二糖(δdi-6s)的摩尔占比,本发明在模块二的基础上进一步将单独的archst3-2表达盒再次整合至his4位点附近。通过基因剂量递增加量,适度提高6-o-磺基转移酶的丰度,使paps供给、骨架聚合与硫酸化修饰三步反应在代谢通量上达到最优匹配,从而显著提升软骨素c的6-o-硫酸化比例与终产物滴度。
13、上述双位点、三模块构建策略在实现甲醇诱导下全通路协同表达的同时,通过位点分散尽量保证遗传稳定性、剂量递进平衡代谢通量,最终获得一株能够以甲醇为碳源、高效合成6-o-硫酸化位点的软骨素c的重组毕赤酵母工程菌株。
14、通过实施上述技术方案,本发明相比较于现有技术,具有如下的有益效果:
15、本发明采用双染色体位点(gap位点与his4位点)、三表达模块的分层整合策略,将软骨素骨架合成与硫酸化修饰子通路物理分散于基因组不同安全位点,避免了多基因在单一位点串联造成的同源重组风险与局部代谢负担,提高了工程菌在长期传代与高密度发酵过程中的遗传稳定性。具体地,骨架合成采用多杀性巴氏杆菌来源的软骨素合酶pmcs与udp-葡萄糖脱氢酶pmugdh,搭配大肠杆菌k4的kfoa,区别于现有方案常用的大肠杆菌kfoc与枯草芽孢杆菌tuad组合,提供了异源通路酶系的新选择;使用小体鲟来源的archst3经n端截短83个氨基酸的突变体archst3-2作为6-o-硫酸化功能元件;所有功能基因均由甲醇诱导型启动子驱动,生长阶段与产物合成阶段解耦,甲醇诱导后全通路同步开启,发酵调控逻辑清晰。
16、该工程菌能够以甲醇为碳源在食品安全级毕赤酵母中合成软骨素c,不依赖动物组织原料,避免动物源致病因子污染风险与强酸强碱提取工艺,产物结构均一性预期优于动物提取法。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com