
一种紧凑株型的沙蓬的油菜素内酯-6-氧化酶1突变蛋白及其应用
本发明涉及作物遗传育种,具体而言,涉及一种紧凑株型的沙蓬的油菜素内酯-6-氧化酶1突变蛋白及其应用。
背景技术:
1、沙蓬(
agriophyllum squarrosum(l.) moq.)是广义苋科沙蓬属一年生草本植物。作为流动沙丘的先锋植物沙蓬具有很好的抗逆性、抗旱性和耐贫瘠性,其种群的建立可为沙丘植被演替和生态恢复奠定物质环境基础。沙蓬植株在开花前适口性好,是干旱区重要的饲草。沙蓬种子营养全面均衡,有超过千年的食用历史,是中国北方河西走廊和阿拉善高原一带的名小吃,在绿色功能食品市场中具有很好的应用潜力。因此,沙蓬可作为一种环境友好的未来作物,实施引种驯化和遗传改良,以充分利用沙地资源促进干旱区生态恢复和可持续发展。
2、在长期适应流动沙丘风蚀沙埋环境过程中,沙蓬演化形成了松散的株型结构。这种结构包括基部优先发育形成四个侧枝,主茎顶端优势早期阶段不明显,侧枝发达且向外延展,下胚轴可塑性伸长以应对沙埋,其虽在应对春季多风季节的沙土掩埋时幼苗的出苗和成活具有重要意义,但也易造成植株倒伏,不利于田间种植。此外,沙蓬叶尖部形成尖刺,特别是在成熟期硬叶的尖刺可以作为一个防御性状阻碍动物的啃食,但严重影响种子的人工收获。因此,改良野生杂草性状,选育株型结构紧凑宜田间栽培的株系是当前沙蓬引种驯化和遗传改良的主要目标。
3、鉴于此,特提出本发明。
技术实现思路
1、本发明的目的在于提供一种紧凑株型的沙蓬的油菜素内酯-6-氧化酶1突变蛋白及其应用,利用本发明提供的突变蛋白能够培育出下胚轴短、植株矮化、株型紧凑、抗倒伏等性状的沙蓬植株,为沙蓬栽培适宜品系选育提供了新的途径。
2、本发明是这样实现的:
3、第一方面,本发明提供了一种紧凑株型的沙蓬的油菜素内酯-6-氧化酶1突变蛋白,该油菜素内酯-6-氧化酶1突变蛋白具有如下突变:w437(tgg)→stop(tag),其氨基酸序列如seq id no.3所示。
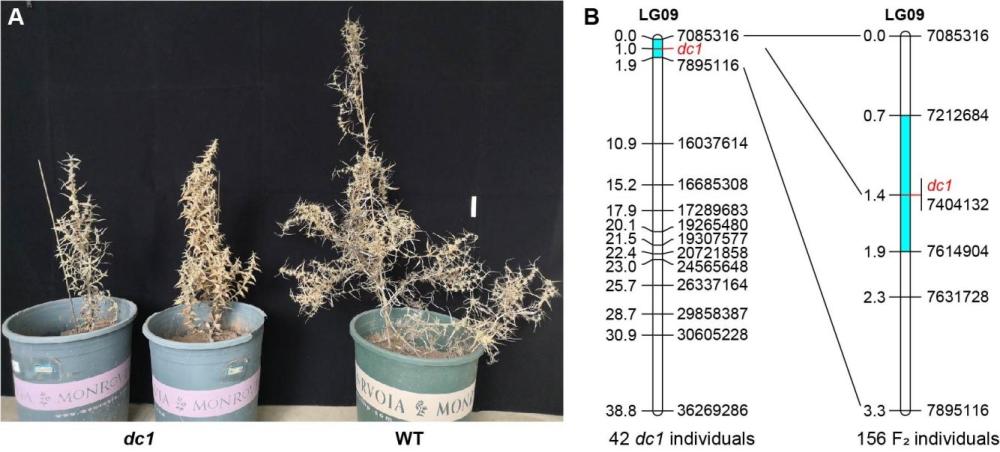
4、本发明利用甲基磺酸乙酯(ethyl methanesulfonate,ems)诱变法构建沙蓬突变体库,从中筛选到植株矮化、短下胚轴、株型结构紧凑的突变体(将其命名为
dc1)。为了探究上述突变体的突变原因,本发明首先明确突变表型是由单基因隐性突变所致。在此基础上,首先通过构建遗传群体,结合测序定位和图位克隆,精细定位突变位点至沙蓬9号染色体分子标记indel_7212684和indel_7614904之间,区间遗传距离为1.2 cm,发现分子标记dcaps_7404132与突变表型紧密连锁且共分离;基于单核苷酸变异(snp)效应发现分子标记dcaps_7404132的snp是非同义突变,初步确定该分子标记所在的evm0006946基因为
dc1突变体的目的基因。其次,构建新的f2作图群体,再次确认了
dc1突变体表型变异是由单基因隐形突变导致的;采用全基因组重测序,基于孟德尔遗传分离定律筛选snps和indels,发现两种变异均在第9号染色体0-20 mbp的位置上呈现明显聚集,验证了第一种方法获得的定位区间结果;根据区间中snps和indels变异信息重新设计分子标记,利用第一种方法筛选获得的重组体植株开展进一步的图位克隆,最终将定位区间缩进至分子标记indel_7212684和indel_7526517之间,定位于该区间的分子标记dcaps_7404132在这个作图群体中依然和突变表型呈现紧密连锁且共分离;比对沙蓬参考基因组,发现定位区间包含10个编码基因,只有dcaps_7404132对应的snps是非同义突变,排除了其他基因编码区突变的可能性,确认了dcaps_7404132来源的evm0006946基因是
dc1突变体的目的基因。第三,通过转录组测序分析定位区间中的10个编码基因发现,只有evm0006946在野生型和突变体植株间存在显著表达差异,其他基因无统计学差异,为evm0006946基因是
dc1突变体目的基因这一结论提供了基因表达层面的分子证据。第四,通过室内和大田多年的栽培试验和性状观察确认突变体与野生型在株型结构以及株高上存在稳定且可遗传的差异。基于以上证据,最终确认突变基因:来源于9号染色体evm0006946基因,编码油菜素内酯-6-氧化酶1(asbr6ox1),具体的突变方式是:在evm0006946基因编码区第8个外显子上第3254个碱基发生g-a的转变,引起该位置编码的氨基酸密码子由tgg变为tga,对应的氨基酸突变为色氨酸w437变为终止密码子,该突变体的氨基酸序列如seq id no.3所示。
5、本发明通过化学诱变构建突变体库,再进行定向表型变异筛选、遗传分析、基因克隆和田间评价,提供了一种有效缩短沙蓬的育种周期的技术途径,该方法集成遗传分析、全基因组重测序定位、图位克隆和转录组测序,基于多个独立分离群体的表型分离比率,确定突变变异是由单基因隐性突变所控制,通过两个独立群体相互印证精准定位候选区间,利用图位克隆获得共分离分子标记,根据碱基变异效应筛选唯一候选基因,并经表达差异与稳定表型交叉验证,形成一套高效、低假阳性、适用于植物突变基因鉴定策略。
6、上述突变体是在seq id no.1所示的氨基酸序列的基础上进行突变获得的,该突变体的突变方式为:第437位的色氨酸突变为终止密码子。应当理解的是,不同野生型沙蓬
asbr6ox1基因的具体序列可能存在差异,在其他来源的野生型沙蓬
asbr6ox1基因中,该突变对应地位于相应同源位置。因此,凡是来源于沙蓬9号染色体的
asbr6ox1基因的突变,不局限于位于第8个外显子中的第437位的氨基酸,只要是第8个外显子导致翻译提前终止的突变特别是在第8个外显子中的第437位左右的色氨酸突变使得翻译提前终止的突变,均应当属于本发明的保护范围,上文记载的序列仅使为了举例说明而给出的示例,并非限定具体序列。
7、第二方面,本发明提供了一种核酸分子,其编码上述油菜素内酯-6-氧化酶1突变蛋白。在一些实施例中,该核酸分子的核苷酸序列如seq id no.4所示。
8、如本发明中所使用,术语“核酸分子”是脱氧核糖核酸(dna)和核糖核酸(rna)的总称,是由许多核苷酸单体聚合成的生物大分子化合物,为生命的最基本物质之一。核苷酸序列指的是dna或rna中碱基的排列顺序。核酸分子含有cdna,在一些情况下,可以修饰核酸分子以用于本发明载体中,如用于密码子优化。在一些情况下,出于克隆到载体的目的,可以将序列设计为含有末端限制性位点序列。核酸分子可以从多种来源获得,如通过一种或多种给定细胞内的或从所述一种或多种给定细胞中分离的编码核酸的聚合酶链式反应(pcr)扩增获得。
9、第三方面,本发明提供了含有上述油菜素内酯-6-氧化酶1突变蛋白或含有编码上述油菜素内酯-6-氧化酶1突变蛋白的基因的生物材料,其为载体、宿主菌、转化细胞、植物株系或种子。
10、本发明中所使用的术语“载体”是指在基因工程重组dna技术中将dna片段(目的基因)转移至受体细胞的一种能自我复制的dna分子。除常用的大肠杆菌质粒载体外,还有许多人工构建的其它适用于微生物、酵母、植物等的质粒载体。载体包括但不限于:单链,双链或部分双链的核酸分子;包含一个或多个游离末端,没有游离末端(例如环状)的核酸分子;包含dna,rna或两者的核酸分子;以及本领域已知的其它多核苷酸种类。其中最常用的载体类型是“质粒”,其是指可以插入额外dna片段的环状双链dna环,例如通过标准分子克隆技术。重组表达载体可以包含适于在宿主细胞中表达核酸的形式,这意味着重组表达载体包括一种或多种调节元件,其可以基于用于表达的、可以与待表达的核酸序列可操作地连接的宿主细胞来选择。
11、本发明中所使用的术语“宿主菌”指在生物学实验或工业生产中,被用于接收外源基因(如质粒、重组dna),并进行复制、表达的细菌菌株。宿主菌可以是在相关蛋白生产中有用的菌株。为了产生相关蛋白,可以将编码该蛋白的核酸分离,并且将其插入一种或多种载体中,以在宿主菌中进一步克隆/或表达。对于载体导入宿主菌中的方法是公知的,本发明对此不做具体限定。
12、本发明中所使用的术语“转化细胞”通常指接受了外源核酸(如质粒、重组基因)并发生遗传性状改变的细胞。该细胞可以是用外源核酸转化或转染的任何细胞,包含原核细胞(如大肠杆菌),以及真核细胞(哺乳动物细胞、酵母菌、植物细胞,特别是植物原生质体、悬浮细胞、愈伤组织细胞等)。特别优选植物细胞,如来自藓类植物小立碗藓、单子叶植物水稻、小麦、玉米、短柄草、双子叶植物拟南芥、杨树、大豆、葡萄等的细胞。细胞可以源自多个组织类型,并且包含初级细胞和细胞系。核酸可以以单拷贝形式或两个或多个拷贝形式存在于宿主细胞中,并且在一个实施方案中,在转化细胞中表达。
13、第四方面,本发明提供了上述油菜素内酯-6-氧化酶1突变蛋白、编码上述油菜素内酯-6-氧化酶1突变蛋白的基因或上述生物材料的以下任一种的应用,该油菜素内酯-6-氧化酶1突变基因是在沙蓬
asbr6ox1基因的编码区第8个外显子上第3254个碱基由g突变为a,沙蓬
asbr6ox1基因的参考序列如seq id no.5所示;
14、(1)在缩短沙蓬叶尖刺中的应用;
15、(2)在缩短沙蓬下胚轴中的应用;
16、(3)在降低沙蓬植株高度中的应用;
17、(4)在增加沙蓬叶宽中的应用;
18、(5)在增大叶面积中的应用;
19、(6)在提高叶密度中的应用;
20、(7)在提高穗密度中的应用;
21、(8)在培育沙蓬紧凑株型中的应用。
22、通过连续多年的栽培试验对突变体的农艺性状进行验证,发现
dc1突变体的株高等性状显著低于野生型;而叶宽、叶面积、叶密度、穗密度显著高于野生型。
23、其中,沙蓬下胚轴缩短通常与株高降低呈正相关,即下胚轴越短,株高往往也越矮。通过缩短下胚轴、降低株高改良沙蓬株型结构,改善易倒伏问题。
24、本发明的突变体的叶宽、叶面积和叶密度增大,其能够增强光合作用能力、提高作物产量潜力、改善蒸腾散热与水分运输和优化资源利用效率。
25、而本发明的突变体的穗密度提高,能够增强资源利用效率,改善群体结构,促进驯化与标准化生产。
26、本发明突变体通过以上性状的改良,可以获得植株矮化、株型结构紧凑的表型,削弱草本性状,增强农艺性状,因此可以将其作为株型改良的种质资源加以利用。
27、在本发明的一些实施方式中,上述应用包括:对植物细胞、组织、个体或群体进行诱变和筛选,使其编码油菜素内酯-6-氧化酶1突变蛋白。
28、在一种可选的实施方式中,诱变为非致死剂量的理化诱变方式对植物进行诱变以获得植物材料。
29、上述非致死剂量是指将剂量控制在半致死剂量上下浮动20%的范围。
30、理化诱变方式包括以下物理诱变、化学诱变方式中的一种或多种的组合:物理诱变包括紫外线诱变、x射线诱变、γ射线诱变、β射线诱变、α射线诱变、高能粒子诱变、宇宙射线诱变、微重力诱变;化学诱变包括烷化剂诱变、叠氮化物诱变、碱基类似物诱变、氯化锂诱变、抗生素诱变、嵌入染料诱变;烷化剂诱变包括甲基磺酸乙酯诱变、硫酸二乙酯诱变、乙烯亚胺诱变。
31、在本发明的一些实施方式中,上述应用包括:修饰沙蓬的内源
asbr6ox1基因,使其编码油菜素内酯-6-氧化酶1突变蛋白。
32、修饰目的植物的内源
asbr6ox1基因是指本领域技术人员容易想到通过本领域常规的转基因技术、基因编辑技术(如通过锌指核酸内切酶(zfn,zinc-fingernucleases)技术、类转录激活因子效应物核酸酶(talen,transcription activator-like effectornucleases)技术或crispr/cas9)、诱变育种技术(如生物[比如t-dna,转座子ds插入等]、化学、物理诱变等)等对目标植物进行改造,使其具有编码如上油菜素内酯-6-氧化酶1突变蛋白或类似非同义突变的基因,进而获得株型结构紧凑的性状,并能够正常生长和发育的植物新品种。因此,无论采用何种技术,只要其利用了本发明提供的油菜素内酯-6-氧化酶1突变蛋白赋予紧凑株型的性状,均属于本发明的保护范围。
33、第五方面,本发明提供了一种产生株型紧凑的沙蓬的方法,其包括向沙蓬的基因组中引入编码上述油菜素内酯-6-氧化酶1突变蛋白的基因。
34、在一些实施方式中,引入的方法选自遗传转化方法、基因组编辑方法或基因突变方法(包括生物、化学和物理诱变方法)。
35、上述遗传转化方法包括不限于:通过带有突变基因的亲本植物自交或与其他植物个体杂交产生带有突变基因的个体。
36、在其他实施方式中,上述引入的方法可以是农杆菌介导基因转化法,基因枪转化法、花粉管通道法,还可以是快速处理根瘤农杆菌共培养和直接递送法,凡是能够获得紧凑株型的沙蓬植株的方法都属于本发明的保护范围。
37、本发明具有以下有益效果:
38、本发明通过化学诱变获得了沙蓬紧凑株型突变体,发生突变后获得的沙蓬突变体表现为株高降低,叶宽、叶面积及叶密度均显著增加,穗密度提高,从而使植株整体株型结构更趋紧凑,更适宜于栽培。因此本发明筛选的这株突变体可将其作为株型改良的新种质材料加以利用,具有较好的应用前景。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com