
序列特异性核酸酶突变体及基于其的核酸酶编辑系统
本发明涉及一种序列特异性核酸酶突变体及基于其的核酸酶编辑系统,属于基因工程领域。
背景技术:
1、crispr的type v系统的亚型种类丰富,功能多样性强,已被开发为真核生物基因编辑系统。type v系统的效应蛋白是cas12蛋白,以crispr rna为引导rna行驶靶向外源质粒的免疫功能。type v系统类型与功能均很丰富,这体现在他们的蛋白大小(300-1200)、核酸酶切割能力(靶向双链dna、靶向单链dna与靶向rna)、结构(例如cas12a的传统的双叶结构与cas12f的同源二聚体结构存在形式共存)和功能(cas12m的核酸酶丧失、cas12k是被转座子劫持的可移动遗传元件编码的蛋白)等1-9。
2、这种crispr-cas12系统呈现出显著的多样性,提示tnpb核酸酶曾经历多次独立的“驯化”事件(即从转座子相关蛋白转变为crispr系统组分)10-16。研究表明,这一反复发生的演化过程可能受到tnpb核酸酶在原核基因组中极高丰度和序列多样性的驱动,目前已在超过一百万个位点中发现tnpb的存在。tnpb由多种插入序列(is)家族编码,包括is605、is607和is1341。is605和is607家族为自主型转座元件,能够同时编码tnpb和转座酶tnpa(分别为y1型转座酶和丝氨酸重组酶);而is1341家族则仅编码tnpb。这些tnpb蛋白通过转座子右端衍生的rna(right-end transposon element-derived rna,rerna,也称作ωrna)引导,识别并切割被转座子相关序列(tam)包围的dna区域,从而促进同源重组修复,恢复并维持转座元件的可动性17-20。
3、目前一种被广泛接受的演化模型认为,crispr免疫系统的起源源于多个转座子独立插入至原有crispr阵列附近,随后tnpb蛋白与crispr重复序列之间逐步建立起功能关联10,12-16。前期的专利wo2023232109a1证明tranc系统是一类初生的crispr系统,与tnpb在进化上的亲缘关系非常接近。而代表性的latranc系统可以同时使用来自crispr和转座子的rna作为引导rna,靶向切割双链dna。
4、前期的专利cn121450615a中公开了一种新的核酸酶编辑系统,该专利提供了序列特异性核酸酶,其具有靶向切割活性,能够在rerna或sgrna的引导下靶向结合目标dna,并进一步提供了包含所述序列特异性核酸酶的基因编辑系统及改造的核酸酶系统,可以有效靶向靶点并对靶位点进行切割或修饰,然而其编辑效率有进一步提升的空间,以更好地满足基因工程领域对高效、精准基因编辑的需求,拓展本领域中可以使用的工具。
技术实现思路
1、发明要解决的问题
2、基于专利wo2023232109a1的内容,本发明进一步对tranc (transposon andcrispr intermediate)系统(在专利wo2023232109a1中,这类系统被称作trac系统)进行研究,并在cn121450615a中开发了新的序列特异性核酸酶,然而野生型eu1tranc蛋白在基因编辑中存在的编辑活性有待进一步提高、对靶标dna的识别与切割效率、编辑精准性也均有待提高,本发明对eu1tranc蛋白的n端第100位氨基酸以后的区域进行进化改造,获得基因编辑效率显著提升的eu1tranc突变体蛋白,进一步克服现有基因编辑工具在编辑效率和精准性方面的不足,满足高效、精准基因编辑的实际应用需求。
3、用于解决问题的方案
4、[1]. 一种序列特异性核酸酶突变体,其中,所述序列特异性核酸酶突变体对应于seq id no:15所示的序列,具有如下(i)~(vi)中任意一项所示的突变的氨基酸:
5、(i)m126v;
6、(ii)k205r;
7、(iii)p299l;
8、(iv)i330v;
9、(v)m444v;
10、(vi)e456v。
11、[2]. 根据[1]所述的序列特异性核酸酶突变体,其中,所述序列特异性核酸酶突变体的氨基酸序列如seq id no:119-124中任一项所示。
12、[3]. 以下(i)~(iii)任一项:
13、(i)编码如[1]或[2]所述的序列特异性核酸酶突变体的多核苷酸;
14、(ii)包含(i)的表达构建体;
15、(iii)包含(i)或(ii)的宿主细胞。
16、[4]. 一种序列特异性核酸酶系统,其包含组分a),组分a)选自(i)~(iii)中至少一项:
17、(i)[1]或[2]所述的序列特异性核酸酶突变体;
18、(ii)[3]中所述的多核苷酸;
19、(iii)[3]中所述的表达构建体。
20、[5]. 根据[4]所述的序列特异性核酸酶系统,其还包含组分b)一种或多种向导rna,或者编码该一种或多种向导rna的核苷酸序列;
21、其中,所述向导rna选自i)衍生自转座子右端元件的向导rna即rerna和/或ii)包含tracrrna和/或crrna的向导rna;
22、所述序列特异性核酸酶突变体能够与向导rna形成复合物;
23、所述序列特异性核酸酶突变体能够在rerna的引导下靶向结合目标dna序列,也能够在包含tracrrna和/或crrna的向导rna的引导下靶向结合目标dna序列。
24、[6]. 根据[5]所述的序列特异性核酸酶系统,其中,所述tracrrna包含与非靶向链(nts)配对的非靶向链结合序列(ntb)。
25、[7]. 根据[4]或[5]所述的序列特异性核酸酶系统,其中,所述序列特异性核酸酶突变体还包含至少一个核定位序列(nls)、叶绿体定位序列或线粒体定位序列。
26、[8]. 根据[5]所述的序列特异性核酸酶系统,其中,所述rerna包含如seq id no:66或seq id no:68所示的骨架序列。
27、[9]. 根据[5]所述的序列特异性核酸酶系统,其中,所述一种或多种向导rna与目标dna杂交,并且所述向导rna与所述序列特异性核酸酶突变体形成复合物,该复合物引起该目标dna序列远端切割。
28、[10]. 根据[9]所述的序列特异性核酸酶系统,其中,所述目标dna序列是在细胞内。
29、[11]. 根据[10]所述的序列特异性核酸酶系统,其中,所述细胞为原核细胞和真核细胞,其中,原核细胞为大肠杆菌,真核细胞为hek293t。
30、[12]. 根据[4]或[5]所述的序列特异性核酸酶系统,其中,编码所述序列特异性核酸酶突变体的核酸序列被密码子优化,用于在真核细胞中表达,所述真核细胞为hek293t。
31、[13]. 根据[5]所述的序列特异性核酸酶系统,其中,组分a)和b)或编码组分a)和b)的核苷酸序列构建在相同或不同的载体上。
32、[14]. 一种修饰目的dna序列的方法,其包括将如[4]~[13]任一项所述的序列特异性核酸酶系统递送到含有所述目的dna序列的细胞中,所述细胞为原核细胞和真核细胞,其中,原核细胞为大肠杆菌,真核细胞为hek293t。
33、[15]. 根据[14]所述的方法,其中,所述方法包括将序列特异性核酸酶突变体和一种或多种核酸组分的组合物递送至含有所述目的dna序列的细胞,其中,所述核酸组分包括一种或多种向导rna和/或编码该一种或多种向导rna的核苷酸序列;所述向导rna选自i)衍生自转座子右端元件的向导rna,即rerna和/或ii)包含tracrrna和/或crrna的向导rna;其中,所述序列特异性核酸酶突变体既能够在rerna的引导下靶向结合目标dna序列,也能够在包含tracrrna和crrna的向导rna的引导下靶向结合目标dna序列;
34、所述序列特异性核酸酶突变体与所述一种或多种核酸组分形成复合物,并且在所述复合物与原间隔区临近序列(pam)的目的dna序列靶向结合后,所述序列特异性核酸酶突变体诱导对所述目的dna序列的修饰。
35、[16]. 根据[15]所述的方法,其中,所述序列特异性核酸酶突变体和核酸组分,或表达所述序列特异性核酸酶突变体和核酸组分的构建体被包含在一个递送系统中。
36、[17]. 根据[16]所述的方法,其中,所述递送系统包括病毒、病毒样颗粒或脂质体。
37、发明的效果
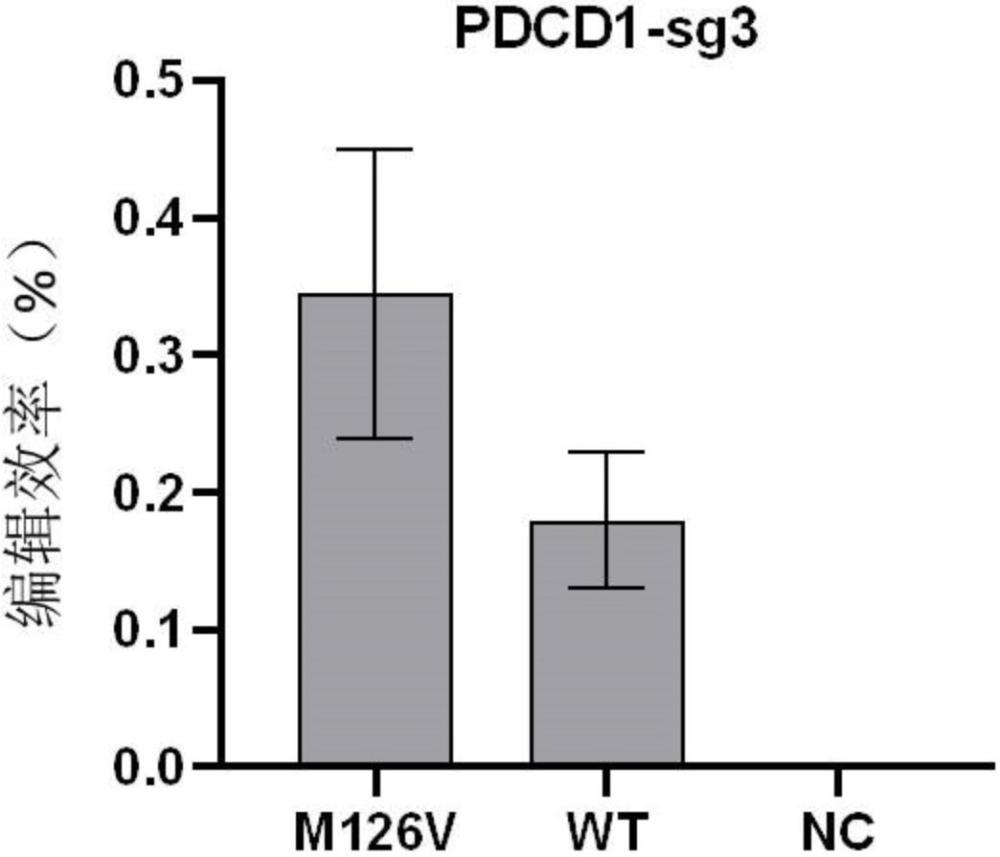
38、本发明通过在序列特异性核酸酶eu1tranc的第100位氨基酸以后的区域中的特定位点进行突变,进一步提高了现有的序列特异性核酸酶的基因编辑效率。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com