
一种耐高温β-1,3-葡聚糖酶突变体及其应用
本发明属于酶工程,涉及一种耐高温β-1,3-葡聚糖酶突变体及其应用,具体涉及到一种热稳定性及催化活性提高的突变β-1,3-葡聚糖酶。
背景技术:
1、β-1,3-葡聚糖是一类主链由葡萄糖经β-1,3-糖苷键聚合而成的大分子多糖,广泛存在于细菌细胞壁、真菌细胞壁及植物组织中。天然β-1,3-葡聚糖因来源不同,通常还含有大小和比例各异的β-1,6-糖苷键支链。β-1,3-葡聚糖具有多种显著的生理活性,包括免疫调节、抗肿瘤、抗炎、抗衰老以及调节血糖和血脂等。然而,天然β-1,3-葡聚糖分子量大、水溶性差,严重制约了其生物活性的充分发挥和在功能食品、医药等领域的实际应用。
2、β-葡寡糖是β-1,3-葡聚糖的酶解降解产物,具有分子量低、水溶性好、易于被人体吸收利用的特点。研究表明,β-葡寡糖具有提高机体免疫能力、促进肠道菌群平衡、改善机体营养摄取、预防龋齿和抗胆固醇等多种功效。此外,β-葡寡糖还具有不易被肠胃道消化、低热量、安全稳定等突出优点,是一类具有较高开发利用价值的水溶性功能低聚糖。在功能性食品、保健品和医药等领域,β-葡寡糖展现出广阔的应用前景。然而,目前β-葡寡糖的生产成本高昂,严重限制了其规模化应用和市场推广。
3、β-1,3-葡聚糖酶(ec3.2.1.39)是一类能够特异性水解β-1,3-糖苷键的糖苷水解酶。根据碳水化合物活性酶数据库(cazy)的分类,β-1,3-葡聚糖酶主要归属于gh16、gh17和gh55等家族。其中,gh16家族是β-1,3-葡聚糖酶的重要来源,该家族成员在细菌和真菌中高度保守。gh16家族β-葡聚糖酶主要以内切方式作用于β-连接的聚糖底物。目前,gh16家族β-1,3-葡聚糖酶已在谷物加工、啤酒酿造、动物饲料和功能性低聚糖制备等领域展现出重要的应用价值。
4、然而,目前报道的大多数gh16家族β-1,3-葡聚糖酶在实际应用中仍面临诸多限制。一方面,酶的催化活性普遍偏低,导致酶解效率不高、生产成本居高不下;另一方面,酶的热稳定性不足,在工业催化所需的高温反应条件下容易失活,严重制约了其工业化应用。尽管已有研究尝试通过蛋白质工程手段对β-葡聚糖酶进行分子改造以提高其热稳定性和催化效率,如专利cn120505298a公开了β-1,3-葡聚糖酶突变体,该发明构建的β-1,3-葡聚糖酶突变体与野生酶相比其酶活力提高了1.04~1.81倍,tm值提升了0.97~1.19℃,但在70℃条件下的半衰期仅提升至1.08~1.28倍,热稳定性提升幅度相对有限,同时仅考虑了单点突变。
5、但如何在保持酶原有优良酶学特性的同时实现催化活性和热稳定性的协同提升,仍然是该领域亟需解决的技术难题。
技术实现思路
1、本发明的目的为针对现有β-1,3-葡聚糖酶催化活性和热稳定性难以协同提升的技术瓶颈,提供一种耐高温β-1,3-葡聚糖酶突变体及其应用,保持酶原有优良酶学特性的同时实现催化活性和热稳定性的协同提升。
2、本发明的目的可以通过以下技术方案来实现:
3、本发明技术方案之一为:提供一种β-1,3-葡聚糖酶突变体。
4、在本发明的一些实施方式中,所述β-1,3-葡聚糖酶突变体是将氨基酸序列如seqid no.1所示的野生型β-1,3-葡聚糖酶的第203位组氨酸(h)突变为亮氨酸(l),且第81位谷氨酰胺(q)突变为天冬氨酸(d)后获得的。
5、在本发明的一些优选实施方式中,所述β-1,3-葡聚糖酶突变体的氨基酸序列如seq id no.3所示。
6、在本发明的一些实施方式中,本发明所述的野生型β-1,3-葡聚糖酶slglc16a来源于shouchella lehensis g1,属于gh16家族,由261个氨基酸组成,其氨基酸序列如seq idno.1所示,基因序列如seq id no.2所示。
7、本发明所述β-1,3-葡聚糖酶突变体的获得方法为本领域常规:较佳地,通过同源建模和分子对接确定β-1,3-葡聚糖酶的三维结构,结合序列一致性分析和表面电荷分布分析筛选出关键突变位点,对野生型β-1,3-葡聚糖酶定点突变和组合突变,发现将氨基酸序列如seq id no.1所示的野生型β-1,3-葡聚糖酶的第203位组氨酸(h)突变为亮氨酸(l),且第81位谷氨酰胺(q)突变为天冬氨酸(d)后获得了催化活性和热稳定性协同提升的双点突变体h203l/q81d,突变体氨基酸序列如seq id no.3所示。除此之外,将如seq id no.1所示氨基酸序列的其他位点氨基酸残基替换成不影响β-1,3-葡聚糖酶突变体催化性能的其他氨基酸残基也属于本发明保护范围。
8、本发明技术方案之二为:提供一种分离的核酸。
9、所述核酸为编码所述β-1,3-葡聚糖酶突变体的dna分子。
10、在本发明的一些实施方式中,编码所述β-1,3-葡聚糖酶突变体的基因序列如seqid no.4所示。
11、本发明所述β-1,3-葡聚糖酶突变体的编码核酸的获得方法为本领域常规:较佳地,将已知的编码β-1,3-葡聚糖酶突变体的核苷酸序列如seq id no.4人工全序列合成,或通过采用重叠延伸pcr法或全质粒大引物pcr将突变位点引入野生型β-1,3-葡聚糖酶基因后获得。
12、本发明技术方案之三为:提供一种重组表达载体,所述重组表达载体包括编码上述β-1,3-葡聚糖酶突变体的dna分子。
13、在本发明的一些实施方式中,所述重组表达载体可以通过本领域常规方法,将本发明所述的β-1,3-葡聚糖酶突变体基因的编码核酸序列连接于各种合适的载体上构建而成,所述载体可以是本领域的各种常规载体,优选为pet系列载体,更优选为pet-28a质粒。
14、较佳地,可通过下述方法制得本发明所述的重组表达载体:将通过重叠延伸pcr法获得的β-1,3-葡聚糖酶突变体的基因序列dna片段和空载质粒pet-28a,用限制性内切酶pstⅰ、bamhⅰ双酶切,回收上述酶切后的β-1,3-葡聚糖酶突变体的基因序列dna片段和空载质粒pet-28a,利用t4 dna连接酶连接,构建获得含有β-1,3-葡聚糖酶的编码核酸序列的重组表达载体。
15、本发明技术方案之四为:提供一种重组表达转化体,包含上述重组表达载体。
16、在本发明的一些实施方式中,所述重组表达转化体的宿主细胞为大肠杆菌(escherichia coli)。
17、在本发明的一些优选实施方式中,所述宿主细胞为大肠杆菌bl21(de3)。
18、所述重组表达转化体可以通过本领域常规方法,将本发明所述的重组表达载体导入宿主细胞中制得。所述宿主细胞为本领域常规的宿主细胞,只要能满足重组表达载体能够稳定地自行复制,并且其所携带的编码所述β-1,3-葡聚糖酶突变体的核酸序列可被有效表达,优选为大肠杆菌,更优选为大肠杆菌bl21(de3)。将所述重组表达载体转化至大肠杆菌bl21(de3)中,即可获得本发明优选的基因工程菌株。
19、本发明技术方案之五为:提供一种β-1,3-葡聚糖酶催化剂,其特征在于,所述β-1,3-葡聚糖酶催化剂包括下述形式中的任一种:
20、(1)培养所述的重组表达转化体,分离含有所述β-1,3-葡聚糖酶突变体的转化体细胞;
21、(2)培养所述的重组表达转化体,分离含有所述β-1,3-葡聚糖酶突变体的粗酶液;
22、(3)培养所述的重组表达转化体,分离含有所述β-1,3-葡聚糖酶突变体的粗酶液,冷冻干燥得到的粗酶粉;
23、(4)培养所述的重组表达转化体,分离含有所述β-1,3-葡聚糖酶突变体的粗酶液,纯化得到的纯酶液。
24、在一些实施方式中,所述重组表达转化体的培养方法可以包括如下步骤:培养本发明的重组表达转化体,获得重组β-1,3-葡聚糖酶突变体。对于重组大肠杆菌,优选的培养方法为:将如上所述构建的重组大肠杆菌接种至含卡那霉素(50 μg/ml)的lb培养基中,37℃、180 rpm下活化过夜。然后以1%的接种量转接至含卡那霉素(50 μg/ml)的新鲜lb培养基中,37℃、180 rpm培养至od600达到0.6-0.8时,加入iptg至终浓度1 mm,30℃、200 rpm诱导培养12 h。发酵结束后,4℃、10000×g离心10 min收集菌体沉淀,使用缓冲液a(29.25 gnacl、2.42 g tris-hcl、1.36 g咪唑,定容至1 l,调ph至7.9)重悬沉淀,在冰水浴中超声破碎(功率30%,开2.2 s,关3.3 s)10 min,4℃、10000×g离心15 min,收集上清液即为粗酶液。
25、本发明技术方案之六为:提供一种β-1,3-葡聚糖酶突变体的制备方法。
26、在本发明的一些实施方式中,所述制备方法包括以下步骤:
27、(1)提供编码上述β-1,3-葡聚糖酶突变体的dna分子;
28、(2)将所述dna分子克隆至表达载体中,构建重组表达载体;
29、(3)将所述重组表达载体转化至宿主细胞中,获得重组工程菌;
30、(4)培养所述重组工程菌,诱导表达,收集并纯化β-1,3-葡聚糖酶突变体。
31、本发明技术方案之七为:提供一种β-1,3-葡聚糖酶催化剂在降解β-1,3-葡聚糖制备β-葡寡糖中的应用。
32、在本发明的一些实施方式中,所述β-1,3-葡聚糖包括可得然多糖和/或昆布多糖。当所述β-1,3-葡聚糖选择为可得然多糖时,所述β-葡寡糖为聚合度2-6的β-葡寡糖。
33、本发明所述的β-1,3-葡聚糖酶突变体的酶切方式为内切型,能够特异性水解β-1,3-糖苷键,不能水解α-1,6-糖苷键或β-1,4-糖苷键。
34、与现有技术相比,本发明具有以下优点:
35、(1)本发明通过半理性设计策略,结合序列一致性分析和表面电荷分布分析,在slglc16a蛋白中筛选并验证了h203l和q81d位点对热稳定性和催化活性的协同影响。
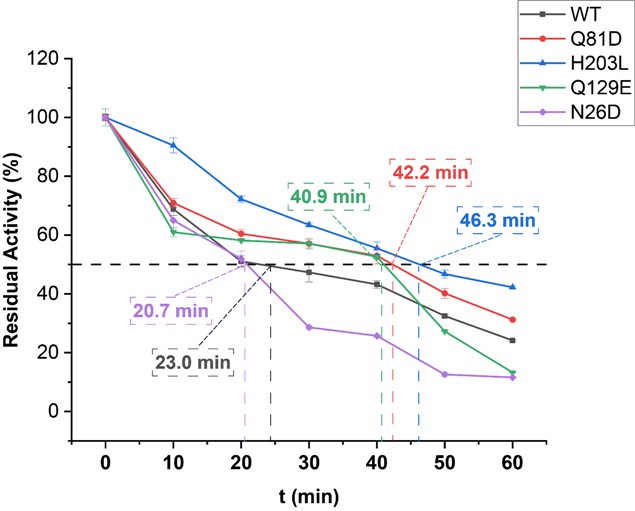
36、(2)本发明提供的双点突变体h203l/q81d(slglc16am2)的比酶活达到5922.6 u/mg,较野生型的4862.6 u/mg提高了21.8%;70℃下的半衰期达到56.7 min,较野生型的23.0min延长了约2.5倍,实现了催化活性和热稳定性的协同显著提升。
37、(3)本发明突变体的酶切方式为内切型,能够高效水解β-1,3-糖苷键,对可得然多糖(仅含β-1,3-糖苷键的线性多糖)和昆布多糖(主链为β-1,3-糖苷键、侧链含β-1,6-分支)具有较高的水解活性,可应用于β-葡寡糖的酶法生产。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com