
一种热稳定性提升的甲酸脱氢酶突变体及其应用
本发明属于生物工程,涉及一种热稳定性提升的甲酸脱氢酶突变体及其应用。具体地,涉及一种热稳定性提升的甲酸脱氢酶突变体及其在nadh再生、生物催化和多酶偶联反应中的应用。
背景技术:
1、甲酸脱氢酶(fdh)是一种重要的辅酶再生工具酶,其以甲酸盐作为辅底物,还原nad+得到nadh,并生成副产物co2。根据活性中心是否含有金属离子,fdh主要分为金属离子依赖性fdh和非金属离子依赖性fdh。金属离子依赖性fdh含有含有钼或钨辅因子及铁硫簇,主要存在于厌氧原核生物中;非金属离子依赖性fdh不含有金属离子或其他氧化还原活性中心,广泛存在于好氧细菌、酵母、真菌和植物中。fdh酶催化体系存在以下优点:(1)甲酸盐分子量相对较小,价格便宜;(2)反应产物为co2,易分离;(3)反应几乎不可逆。上述优势使其在辅酶再生系统中具有重要的应用前景。
2、然而,甲酸脱氢酶活力偏低、稳定性不足等问题限制了其工业应用。针对已报道的甲酸脱氢酶,研究人员尝试了多种蛋白质工程改造策略。倪晗朦等利用半理性设计方法预测
cbfdh的突变位点,成功获得了一株q197k/i239c的组合突变株,较野生型比酶活提高31%(食品与生物技术学报, 2023, 42(10): 1-8.)。2013年通过改造
mycobacterium vaccae
n10来源的甲酸脱氢酶(
mycfdh)保守基序,获得了以nadp+为辅因子的高抗ecaa灭活能力的新
mycfdh变体,其中四突变体
mycfdhc145s/a198g/d221q/c255v在20 mm ecaa中的半衰期超过172±24小时(
appl. microbiol. biotechnol.,2013, 97(6): 2473-2481.)。2021年报道了
cbfdh底物结合口袋的三个关键残基phe285、gln287和his311对酶稳定性的影响,相较于野生型(
tm为64℃),突变体his311gln、gln287glu和phe285thr/his311gln的
tm温度分别提高了13、16和19℃,但热稳定性提高伴随催化活性显著降低(
appl. microbiol.
biotechnol.,2021, 193(2): 363-376)。
3、专利cn111996157a使用甲酸脱氢酶作为辅酶再生酶,偶联丙二醇氧化还原酶高效生产1,3丙二醇,但其使用的甲酸脱氢酶活力仅为0.45u/mg。专利cn104561052a报道了一株重组甲酸脱氢酶,其比活力为1.05u/mg。专利cn113717954a中江南大学通过半理性设计和定点突变技术改造甲酸脱氢酶分子结构获得了稳定性提高的突变体酶k21p/k22r,突变体酶k21p/k22r在65℃孵育60min后,仍可保留高于80%的酶活,而亲本在65℃孵育30min后完全失活,但其
tm值较亲本仅提高了4.5℃。专利cn106479988a通过蛋白质工程引入二硫键,使得
cbfdh的活性提高1.3倍且在60℃的半衰期提高6.8倍,然而其半衰期仍仅有21.6分钟。
4、由于nadh价格较高,若在nadh依赖型生物催化反应中按化学计量添加,将显著增加生产成本。采用fdh和廉价的甲酸盐进行nadh原位再生,可降低辅酶用量;但在较高温度或长时间运行的多酶体系中,fdh易失活,导致nadh供给不足并限制反应转化。因此,获得兼具催化活性和热稳定性的甲酸脱氢酶突变体,对于推动辅酶再生和多酶偶联生物催化的工业应用具有重要意义。
技术实现思路
1、本发明旨在克服现有甲酸脱氢酶活力偏低、热稳定性不足,以及其在较高温度和长时间生物催化过程中难以持续供给nadh的问题,提供一种热稳定性提升的甲酸脱氢酶突变体及其应用。
2、本发明通过酶库挖掘获得一种来源于
hermanssonia centrifuga的高活力的甲酸脱氢酶hcefdh,其氨基酸序列如seq id no.1所示,并构建了一株能够表达该甲酸脱氢酶hcefdh的重组大肠杆菌工程菌,然而该甲酸脱氢酶hcefdh的热稳定性较差,严重限制了其进一步的工业应用,因此本发明继续以hcefdh为出发母本进行改造工作,提高其热稳定性。
3、本发明的甲酸脱氢酶突变体是通过对甲酸脱氢酶hcefdh二聚体界面区域进行多点协同改造获得的,可用于nadh原位再生以及nadh依赖型酶偶联催化反应。
4、本发明的目的可以通过以下技术方案来实现:
5、本发明的技术方案之一是:提供一种甲酸脱氢酶突变体。
6、在本发明的一些实施方式中,母本甲酸脱氢酶hcefdh来源于赫氏射脉菌(
hermanssonia centrifuga),氨基酸序列如seq id no.1所示,编辑甲酸脱氢酶hcefdh的基因
hcefdh序列如seq id no.2所示。
7、在本发明的一些实施方式中,所述甲酸脱氢酶突变体是将如seq id no.1所示氨基酸序列的第12位、第13位、第16位、第149位、第151位、第152位、第154位、第155位、第156位、第260位、第261位、第262位、第263位、第264位、第265位、第266位、第297位、第300位、第301位和第305位氨基酸中的多个氨基酸残基替换为其他氨基酸残基所形成的新氨基酸序列对应的蛋白质。
8、具体地,所述甲酸脱氢酶突变体的氨基酸序列为如下的一种:
9、(1)将如seq id no.1所示氨基酸序列的第12位asn替换为glu,第13位ala替换为trp,第16位glu替换为ala;
10、(2)将如seq id no.1所示氨基酸序列的第12位asn替换为glu,第13位ala替换为phe,第16位glu替换为arg;
11、(3)将如seq id no.1所示氨基酸序列的第149位gln替换为asp,第151位ser替换为ala,第152位asp替换为ala,第154位ala替换为thr,第155位arg替换为cys,第156位asn替换为ser;
12、(4)将如seq id no.1所示氨基酸序列的第149位gln替换为asp,第151位ser替换为ala,第152位asp替换为ala,第154位ala替换为ser,第156位asn替换为asp;
13、(5)将如seq id no.1所示氨基酸序列的第260位ala替换为cys,第262位ala替换为thr,第265位val替换为ile;
14、(6)将如seq id no.1所示氨基酸序列的第260位ala替换为val,第261位asn替换为asp,第262位ala替换为thr,第263位glu替换为asp,第264位asp替换为ala,第266位ala替换为val;
15、(7)将如seq id no.1所示氨基酸序列的第300位leu替换为tyr,第301位asn替换为gly;
16、(8)将如seq id no.1所示氨基酸序列的第300位leu替换为tyr,第301位asn替换为gly,第305位gly替换为ala;
17、(9)将如seq id no.1所示氨基酸序列的第297位lys替换为arg,第300位leu替换为phe,第301位asn替换为gly;
18、(10)将如seq id no.1所示氨基酸序列的第12位asn替换为glu,第13位ala替换为phe,第16位glu替换为arg,第149位gln替换为asp,第151位ser替换为ala,第152位asp替换为ala,第154位ala替换为ser,第156位asn替换为asp,第260位ala替换为cys,第262位ala替换为thr,第265位val替换为ile,第300位leu替换为tyr,第301位asn替换为gly。
19、在本发明的一些优选的实施方式中,所述的甲酸脱氢酶突变体具体选择编号为(10)的突变体,即将如seq id no.1所示氨基酸序列的第12位asn替换为glu,第13位ala替换为phe,第16位glu替换为arg,第149位gln替换为asp,第151位ser替换为ala,第152位asp替换为ala,第154位ala替换为ser,第156位asn替换为asp,第260位ala替换为cys,第262位ala替换为thr,第265位val替换为ile,第300位leu替换为tyr,第301位asn替换为gly。
20、本发明所述甲酸脱氢酶突变体的制备方法为本领域常规:较佳地,首先构建含有hcefdh的重组菌,将hcefdh的基因克隆到质粒pet-28a中构建母本重组质粒pet28a-
hcefdh,实现目标蛋白的可溶表达,同时蛋白c端连接组氨酸标签。采用基于理性设计的多点协同进化策略对母本进行定点突变,通过动力学参数测定以及半衰期测定筛选,最终获得稳定性显著提高的甲酸脱氢酶突变体。除此之外,将如seq id no.1所示氨基酸序列的其他位点氨基酸残基替换成不影响甲酸脱氢酶突变体催化性能的其他氨基酸残基也属于本发明保护范围。
21、本发明所述蛋白质的制备方法也可以通过人工合成蛋白质的序列获得。
22、本发明技术方案之二为:提供一种编码甲酸脱氢酶突变体的核酸。
23、所述核酸为编码技术方案一所述甲酸脱氢酶突变体的dna分子。
24、在本发明的一些实施方式中,编码甲酸脱氢酶突变体的核苷酸序列为编码如技术方案一所述甲酸脱氢酶突变体的核苷酸序列。
25、本发明所述甲酸脱氢酶突变体的编码核酸的获得方法为本领域常规:较佳地,通过基因工程技术对母本hcefdh进行定点突变、易错pcr或dna改组等方法改造或通过人工全序列合成的方法获得。
26、本发明的技术方案之三是:提供一种重组表达载体,所述重组表达载体包含技术方案二所述编码甲酸脱氢酶突变体的核酸。
27、在本发明的一些实施方式中,所述重组表达载体可以通过本领域常规方法,将本发明所述的甲酸脱氢酶突变体基因的编码核酸序列连接于各种合适的载体上构建而成,所述载体可以是本领域的各种常规载体,优选为pet-28a质粒。
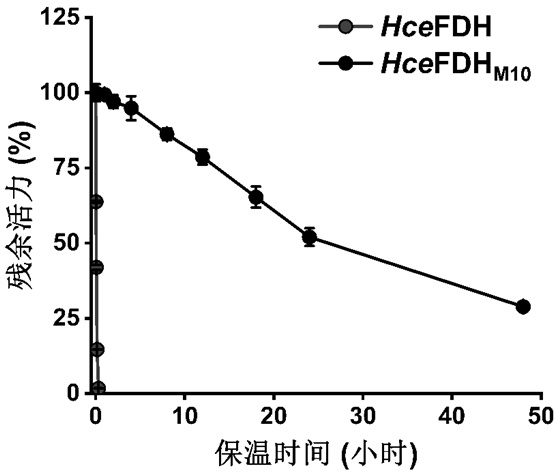
28、较佳地,可通过下述方法制得本发明所述的重组表达载体:以重组质粒pet28a-
hcefdh为模板,使用突变特异性引物进行全质粒pcr,构建定点突变,获得含有突变位点的线性化全质粒产物,pcr产物经dpn i消化降解原始模板质粒后,转化至大肠杆菌bl21(de3)感受态细胞后涂布平板,筛选阳性克隆,经测序验证正确后得到含有甲酸脱氢酶突变体编码核酸序列的重组表达载体。
29、本发明的技术方案之四是:提供一种重组表达转化体。
30、所述重组表达转化体包含技术方案二所述编码甲酸脱氢酶突变体的核酸或技术方案三所述的重组表达载体。
31、在本发明的一些实施方式中,所述重组表达转化体的宿主微生物为大肠杆菌。
32、所述重组表达转化体可以通过本领域常规方法,将本发明所述的重组表达载体导入宿主细胞中制得。所述宿主细胞为本领域常规的宿主细胞,只要能满足重组表达载体能够稳定地自行复制,并且其所携带的编码所述甲酸脱氢酶突变体的核酸序列可被有效表达,优选为大肠杆菌bl21(de3)。将所述重组表达载体转化至大肠杆菌bl21(de3)中,即可获得本发明优选的基因工程菌株。
33、本发明的技术方案之五是:提供一种重组甲酸脱氢酶催化剂,所述重组甲酸脱氢酶突变体催化剂包括下述形式中的任意一种:
34、(1)培养所述重组表达转化体,分离含有所述甲酸脱氢酶突变体的转化体细胞;
35、(2)培养所述的重组表达转化体,分离获得含有所述甲酸脱氢酶突变体的粗酶液;
36、(3)培养所述的重组表达转化体,分离含有所述甲酸脱氢酶突变体的粗酶液,冷冻干燥得到的粗酶粉;
37、(4)培养所述的重组表达转化体,分离含有所述甲酸脱氢酶突变体的粗酶液,纯化得到的纯酶液。
38、本发明还提供一种重组甲酸脱氢酶突变体催化剂的制备方法,包括培养技术方案四所述的重组表达转化体,收集转化体细胞并经破碎、固液分离获得粗酶液,或者进一步对粗酶液进行纯化或冷冻干燥,获得相应形式的重组甲酸脱氢酶催化剂。所述重组表达转化体的培养条件可采用本领域常规方法。
39、在一些实施方式中,对于重组大肠杆菌,优选的培养方法为:将如上所述构建的重组大肠杆菌接种至含100 μg/ml卡那霉素的lb培养基(胰蛋白胨10g/l,酵母提取物5g/l,氯化钠10g/l)中,37oc,220 rpm培养,当培养液的od600达到0.6~0.8,添加终浓度为0.2 mm的异丙基-β-d-硫代吡喃半乳糖苷(iptg),200 rpm,16oc诱导20 h进行目的蛋白的表达。通过12000 rpm离心5分钟收集细胞,并10ml/g细胞重悬于磷酸钾缓冲液(potassium phosphatebuffer,kpb,100mm,ph=7.0)重悬中,对细胞进行超声裂解,并通过在4oc下以12,000rpm离心50分钟去除细胞碎片。既可获得所述重组甲酸脱氢酶突变体的粗酶液。
40、本发明的技术方案之六是:提供所述甲酸脱氢酶突变体或重组甲酸脱氢酶催化剂在nad+/nadh原位循环再生体系中的应用。
41、所述nad+/nadh原位循环再生体系由nadh再生以及nadh依赖型酶偶联催化反应构成。
42、在本发明的一些实施方式中,在甲酸盐和nad+存在的条件下,所述甲酸脱氢酶突变体催化甲酸盐氧化生成co2,同时将nad+还原为nadh;所生成的nadh供nadh依赖型酶利用,并在下游反应中重新生成nad+,从而形成nad+/nadh原位循环再生体系。
43、在本发明的一些实施方式中,所述nadh依赖型酶选自单加氧酶、脱氢酶或还原酶,优选为环己酮单加氧酶或7β-羟基甾体脱氢酶。
44、在本发明的一些优选实施方式中,所述甲酸脱氢酶突变体与环己酮单加氧酶偶联,以环己酮为底物合成ε-己内酯;
45、在本发明的一些优选实施方式中,所述甲酸脱氢酶突变体与7β-羟基甾体脱氢酶偶联,以7-酮石胆酸为底物合成熊去氧胆酸。
46、在本发明的一些实施方式中,在含有0.05-0.2 mol/l、ph为6.0-8.0磷酸盐缓冲液中进行催化反应;所述甲酸盐为甲酸钠,浓度为10-800 mmol/l;nad+浓度为0.1-1 mmol/l;反应温度为25-50oc。
47、本发明中所述甲酸脱氢酶突变体的活力测定方法:将含100 mmol/l甲酸钠和1mmol/l nad+的1ml反应体系(100 mmol/l磷酸钾缓冲液,ph=7.0)预热至30oc,然后加入适量的甲酸脱氢酶突变体,30oc保温反应,在分光光度计上检测340nm处nadh的吸光度变化,记录1分钟内吸光度的变化值。
48、用下式计算得到酶活力(参照朗伯比尔定律):
49、酶活力(u)=ew×v×103/(6220×l)
50、式中,ew为1分钟内340nm处吸光度的变化;v为反应液的体积,单位为ml;6220为nadh在340nm处的摩尔消光系数,单位为l/(mol·cm);l为光程距离,单位为cm。1个酶活力单位(u)定义为上述条件下每分钟催化生成1 μmol nadh所需的酶量。
51、比活力(u/mg)=u/m酶
52、式中,m酶为加入的酶液量,单位为mg。
53、本发明中所述甲酸脱氢酶突变体的半衰期测定方法:将重组甲酸脱氢酶突变体的蛋白浓度均稀释至1 mg/ml,取1 mg纯酶置于50℃水浴锅中保温,分别于0、0.5、1、2、4、8、12、18、24、48h时取样,立即置于冰上降温5 min后测定剩余比活力。以0min样品测定的初始酶活为100%,计算经过热处理的各时间点样品的相对酶活,判断突变体酶的热稳定性。
54、以保温时间t为横坐标,残余活力的对数ln(residual activity%)为纵坐标拟合线性曲线,得到失活常数kd,半衰期t1/2 (50oc)=ln2/kd。
55、本发明中所述甲酸脱氢酶突变体的熔解温度(
tm)通过圆二色谱(cd)光谱法进行测定。将初始蛋白质样品用100 mm磷酸钠缓冲液(ph=7.0)稀释至0.4 mg ml-1。随后,将稀释后的蛋白质样品分别置于光程为0.2cm的比色皿中,使用chirascan圆二色光谱仪进行检测。在20~90oc范围内,以2oc为温度间隔、2oc/min的升温速率,记录190~280nm范围内的cd光谱(步长为1nm)。随后,采用global 3分析软件对不同温度下获得的蛋白质cd光谱进行全局拟合分析,从而获得计算得到的tm值。
56、本发明采用气相色谱法对反应体系中的环己酮和ε-己内酯进行定性及定量分析。使用cp型毛细管色谱柱,以氮气为载气,流速为3ml/min。柱温程序为:初始温度50oc,保持1min;以20oc/min升温至120oc,保持2 min;随后以20oc/min升温至180oc,保持2min。根据环己酮和ε-己内酯标准品的保留时间进行定性,并根据环己酮和ε-己内酯浓度与对应色谱峰面积建立的标准曲线进行定量。ε-己内酯产率按下式计算:ε-己内酯产率(%)=ε-己内酯的摩尔量/反应开始时环己酮的摩尔量×100%。
57、ε-己内酯的合成反应条件为:反应总体积为1 ml,反应体系中含有10 mm环己酮、1mm nad+、100 mm甲酸钠、0.01 mg纯化的hcefdhm10以及0.2 mg纯化的acchmo9871,以100 mm、ph=7.0的磷酸钾缓冲液配制反应体系。反应于40oc、200 rpm并持续通氧条件下进行。反应过程中,hcefdhm10催化甲酸钠氧化并将nad+还原为nadh,acchmo9871利用所生成的nadh催化环己酮氧化生成ε-己内酯,同时再生nad+,由此形成nad+/nadh原位循环。
58、本发明采用高效液相色谱法测定反应体系中剩余7-酮石胆酸(7-oxo-lca)的含量。色谱柱为ods-2反相色谱柱(250 mm×4.6 mm,粒径5μm,elite),流动相为甲醇和含0.005%磷酸的水溶液,体积比为75:25,采用等度洗脱;流速为0.8 ml/min,柱温为30oc,检测波长为280 nm。根据7-oxo-lca标准品的保留时间进行定性,并根据7-oxo-lca浓度与对应色谱峰面积建立的标准曲线进行定量。7-oxo-lca转化率按照下式计算:7-oxo-lca转化率(%)=(反应前7-oxo-lca摩尔量-反应后剩余7-oxo-lca摩尔量)/反应前7-oxo-lca摩尔量×100%。
59、熊去氧胆酸的合成反应条件为:反应总体积为1 ml,反应体系中含有10 mm 7-oxo-lca、1 mm nad+、100 mm甲酸钠、0.1 mg纯化的hcefdhm10以及0.02 mg纯化的7β-羟基甾体脱氢酶,以100 mm、ph=8的磷酸钾缓冲液配制反应体系。反应于50oc、200 rpm条件下进行。反应过程中,hcefdhm10催化甲酸钠氧化,同时将nad+还原为nadh;7β-hsdh利用所生成的nadh将7-oxo-lca还原生成熊去氧胆酸,同时再生nad+,由此形成nad+/nadh原位循环再生体系。
60、本 技术实现要素: 中所述的各反应或检测条件,可根据本领域常识进行组合或更改,并通过实验得到验证。
61、本发明所用的原料或试剂除特别说明之处,均市售可得。
62、与现有技术相比,本发明具有以下优点:
63、(1)本发明提供的甲酸脱氢酶突变体比酶活达到7.81 u/mg高于同类甲酸脱氢酶如cbfdh,能够高效催化甲酸盐氧化并再生nadh。
64、(2)本发明提供的甲酸脱氢酶突变体相较于母本hcefdh热稳定性显著提高。其中突变体hcefdhm10的
tm值为61.7℃,比母本提高了8.6℃,同时该突变体在50℃的半衰期较母本延长了100~500倍,同时保持与母本相当的比酶活,缓解了稳定性提升过程中常见的活性损失问题。
65、(3)hcefdhm10可在较高温度下用于nadh原位循环再生,并与nadh依赖型酶构建偶联催化体系。在本发明的实施例中,其分别在40oc和50oc条件下驱动环己酮单加氧酶和7β-羟基甾体脱氢酶反应,ε-己内酯的产率达到99%而7-酮石胆酸的转化率达到95%,表明该突变体具有用于多酶催化及高附加值化合物合成的应用潜力。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com