
一种经修饰的RNA解旋酶AIE及其用途的制作方法
本发明涉及生物,尤其是涉及一种经修饰的rna解旋酶aie及其用途。
背景技术:
1、目前单分子测序技术主要可分为两类:一类是基于光学的零模波导测序,以美国太平洋生物科学公司(pacific biosciences,pacbio)为代表;一类是基于电学的纳米孔测序,以英国牛津纳米孔技术公司(oxford nanopore technologies,ont)为代表。纳米孔测序技术是近年被开发出来的新型核酸测序技术,依据孔道类型可分为固态孔和生物纳米孔,生物纳米孔能够允许底物通过的孔道蛋白,以下纳米孔测序单指生物纳米孔测序技术。
2、在电场力的作用下,带电核酸底物能够通过生物纳米孔。当核酸通过纳米孔时,能够阻碍纳米孔的电流,产生不同的电流信号,通过对电流信号的解析,可以获得核酸的碱基信息。和其它测序方法相比,它具有设备低廉,样品准备简便,测序速度快等优势,已经开始在各个领域应用。具体优势如下:在无需扩增的情况下,即可简便的建库;信号读取速度快,通常能达到200-300bp/s;读取长度长,通常可以达到数千个碱基;并且可以直接检测dna上存在的修饰;可以直接测rna,基于纳米孔测序的特点,rna不再需要逆转录为dna进行序列分析,由此便可以保存rna上的修饰信息。因为存在上述优势,纳米孔测序技术近年来获得广泛关注。
3、纳米孔测序技术所面临的挑战之一是核酸分子通过纳米孔的速度往往太快、超过仪器的分辨率,因此难以获得反映序列信息的准确的电信号。因此,如何控制或减缓核酸分子通过纳米孔的速度对于提高纳米孔测序技术的准确率是至关重要的。在现有技术中,可以采用解旋酶控制核酸分子穿过纳米孔的运动,以增加核酸分子在纳米孔处的停留时间。虽然已公开了多种可用于纳米孔测序技术的解旋酶,但是每种解旋酶各有其优缺点和各自的适用环境,这些解旋酶仍然难以满足科学研究和医疗技术等对于核酸测序技术在多方面提出的更苛刻的要求,因此仍然存在对于可以用于纳米孔测序技术的新型解旋酶的需要,以便改善纳米孔测序技术的适用性、准确性和灵敏度等。
技术实现思路
1、针对上述技术问题,本发明克服了现有技术中多核苷酸穿过纳米孔移位速度过快的问题,提供了一种来自丙型肝炎病毒(hepatitis c virus)的rna解旋酶aie,简称为aierna helicase。
2、通过alphafold3预测的蛋白结构来看,aie rna helicase主要包含三个结构域,结构域1,结构域2以及结构域3。本发明在通过修饰连接缩小开口尺寸时,重点放在1和3这两个结构域上,倾向于通过共价连接来缩小或者关闭开口。
3、连接方式有两种,一种是通过其自身的天然存在的氨基酸,通过替换插入新的氨基酸,比如半胱氨酸和非天然氨基酸等,来实现连接;另一种是通过连接分子(linkermolecules),倾向于半胱氨酸之间的连接,连接分子包括:bmoe、bmh、bis(peg)2以及bis(peg)3等。本发明分别在1和3两个结构域上引入半胱氨酸,上述的连接分子通常含有两个功能末端,会与半胱氨酸发生共价连接从而实现结构域1和结构域3两部分的连接,使得结合的多核苷酸(rna)不会从解旋酶上解离。
4、本发明提供了一种经修饰的rna解旋酶aie,所述经修饰的rna解旋酶aie为如下任一所示蛋白质:(a1)将seq id no.2所示的氨基酸序列经过一个或几个氨基酸残基的取代和/或添加且具有相同功能的蛋白质;(a2)与(a1)所限定的氨基酸序列具有80%以上同一性且具有相同功能的蛋白质;(a3)在(a1)或(a2)所限定的蛋白质的末端连接标签后得到的融合蛋白。
5、可选地,根据上述的经修饰的rna解旋酶aie,(a1)所述蛋白质为将seq id no.2所示的氨基酸序列经过如下至少一个位置的氨基酸残基取代的蛋白质:93、103、106、182、188、223、242、306、308、313、339、382、398和436。
6、可选地,所述取代为所述氨基酸残基被丙氨酸残基、甘氨酸残基或丝氨酸残基取代。
7、可选地,根据上述的经修饰的rna解旋酶aie,(a1)所述蛋白质为将seq id no.2所示的氨基酸序列还经过如下至少一个位置的氨基酸残基取代的蛋白质:46、50、69、70、186、189、208、209、363、365、366、367、368、393、394和395。可选地,所述取代为所述氨基酸残基被半胱氨酸残基取代。
8、可选地,(a1)所述蛋白质为将seq id no.48所示的氨基酸序列经过至少两个氨基酸残基的取代和/或添加,且至少两个被取代和/或添加的氨基酸残基之间存在共价连接的蛋白质。例如,所述至少两个被取代和/或添加的氨基酸残基之间为如下至少两个位置的氨基酸残基:93、103、106、182、188、223、242、306、308、313、339、382、398、436、46、50、69、70、186、189、208、209、363、365、366、367、368、393、394和395。
9、可选地,所述至少两个被取代和/或添加的氨基酸残基之间存在共价连接为seqid no.2所示的氨基酸序列第208位和第367位被取代和/或添加的氨基酸残基之间存在共价连接。
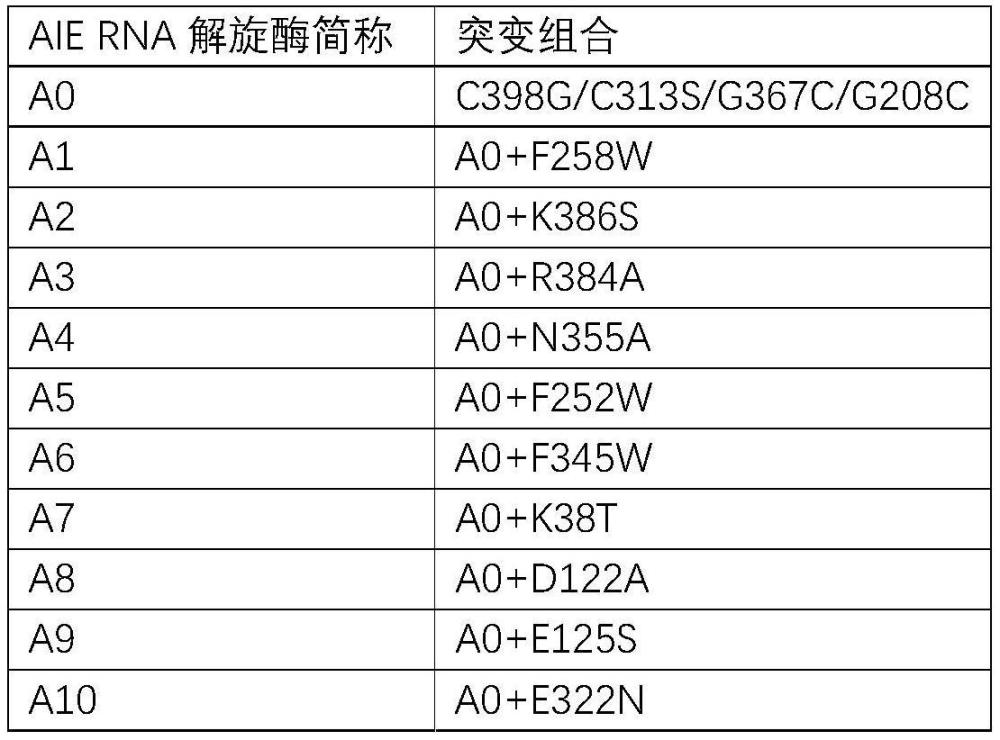
10、在本发明的一个实施方案中,(a1)所述蛋白质为将seq id no.2所示的氨基酸序列经过如下位置的氨基酸残基取代的蛋白质:398、313、367和208,例如所述取代为c398g、c313s、g367c和g208c,则(a3)所述蛋白质序列如seq id no.4所示。
11、可选地,所述共价连接通过二硫键或连接分子实现。
12、可选地,所述连接分子选自双马来酰亚胺乙烷(bmoe)、1,4-双马来酰亚胺丁烷(bmb)、双马来酰亚胺已烷(bmh)、二硫代马来酰亚胺乙烷(dtme)、三(2-马来酰亚胺乙基)胺(tmea)、1,8-双马来酰亚胺-二乙二醇(bis(peg)2)以及1,11-双马来酰亚胺-三乙二醇(bis(peg)3)中的至少一种。
13、可选地,根据上述的经修饰的rna解旋酶aie,(a1)所述蛋白质为将seq id no.48所示的氨基酸序列还经过如下至少一个位置的氨基酸残基取代的蛋白质:258、386、384、355、252、345、38、122、125、322、431、401、386、384、322和347。
14、可选地,所述取代方式如下:第258位的f被w取代;第386位的k被s取代;第384位的r被a取代;第355位的n被a取代;第252位的f被w取代;第345位的f被w取代;第38位的k被t取代;第122位的d被a取代;第125位的e被s取代;第322位的e被n或a取代;第431位的k被t取代;第401位的r被a取代;第386位的k被s取代;第384位的r被n取代;第347位的e被t取代。
15、例如,(a3)所述蛋白质序列如seq id no.4、seq id no.12、seq id no.14、seq idno.16、seq id no.18、seq id no.20、seq id no.22、seq id no.24、seq id no.26、seq idno.28、seq id no.30、seq id no.32、seq id no.34、seq id no.36、seq id no.38、seq idno.40和seq id no.42任一序列所示。
16、本发明还提供了上述经修饰的rna解旋酶aie的相关生物材料,所述相关生物材料为所述生物材料为下述任一种:c1)编码上述经修饰的rna解旋酶aie的核酸分子;c2)含有c1)所述核酸分子的表达盒;c3)含有c1)所述核酸分子的重组载体、或含有c2)所述表达盒的重组载体;c4)含有c1)所述核酸分子的重组微生物、或含有c2)所述表达盒的重组微生物、或含有c3)所述重组载体的重组微生物。
17、可选地,c1所述核酸分子为如下任一所示的dna分子:d1)核苷酸序列是序列表中seq id no.3、seq id no.11、seq id no.13、seq id no.15、seq id no.17、seq id no.19、seq id no.21、seq id no.23、seq id no.25、seq id no.27、seq id no.29、seq idno.31、seq id no.33、seq id no.35、seq id no.37、seq id no.39和seq id no.41任一所示的dna分子;d2)编码序列是序列表中seq id no.3、seq id no.11、seq id no.13、seq idno.15、seq id no.17、seq id no.19、seq id no.21、seq id no.23、seq id no.25、seq idno.27、seq id no.29、seq id no.31、seq id no.33、seq id no.35、seq id no.37、seq idno.39和seq id no.41任一所示的dna分子;d3)与d1)或d2)限定的核苷酸序列具有90%或90%以上同一性,来源于丙型肝炎病毒且编码上述蛋白质的dna分子;d4)在严格条件下与d1)或d2)限定的核苷酸序列杂交,且编码上述蛋白质的dna分子。
18、上述生物材料中,所述核酸分子可以是dna,如cdna、基因组dna或重组dna;所述核酸分子也可以是rna,如mrna、sirna、shrna、sgrna、mirna或反义rna。
19、上述生物材料中,所述的表达盒是指能够在宿主细胞中表达基因的dna,该dna不但可包括启动基因转录的启动子,还可包括终止基因转录的终止子。进一步,所述表达盒还可包括增强子序列。
20、本发明还提供了一种构建体,所述构建体包括上述的经修饰的rna解旋酶aie和用于结合多核苷酸的结合部分。
21、上述的经修饰的rna解旋酶aie、上述的生物材料或上述的构建体在如下任一中应用也属于本发明的保护范围:(1)表征目标多核苷酸;(2)制备表征目标多核苷酸的产品;(3)控制目标多核苷酸穿过纳米孔;(4)制备控制目标多核苷酸穿过纳米孔的产品。
22、本发明还提供了一种控制目标多核苷酸穿过纳米孔的方法,包括(1)将目标多核苷酸与上述的经修饰的rna解旋酶aie或上述的构建体连接获得待测样品;(2)将所述待测样品与纳米孔蛋白接触,使得所述待测样品中的目标多核苷酸相对于所述纳米孔蛋白移动。
23、本发明还提供了一种表征目标多核苷酸的方法,包括a.实施上述控制目标多核苷酸穿过纳米孔的方法;b.在所述待测样品中的目标多核苷酸相对于所述纳米孔蛋白移动时获取一个或多个测量值,从而确定所述目标多核苷酸的存在、不存在或一个或多个特征。
24、可选地,所述一个或多个特征选自(i)所述目标多核苷酸的长度;(ii)所述目标多核苷酸的同一性;(iii)所述目标多核苷酸的序列;(iv)所述目标多核苷酸的二级结构;和(v)所述目标多核苷酸是否是经修饰的中的至少一种。
25、本发明还提供了一种用于表征目标多核苷酸或控制目标多核苷酸穿过纳米孔的试剂盒,包括至少一个上述的经修饰的rna解旋酶aie或上述的构建体。可选地,该试剂盒还包括纳米孔蛋白和膜。所述的膜可以为任何现有技术中存在的膜,优选为脂双层。例如,所述的膜为嵌段共聚物/磷脂分子自组装形成脂双层。
26、可选地,所述的多核苷酸可以是天然存在的或人工合成的。具体地,所述的核酸可以是天然的dna、rna或者经过修饰的dna或rna,也可以是人工合成的核酸,例如肽核酸(pna)、甘油核酸(gna)、苏糖核酸(tna)、锁定核酸(lna)或其他具有核苷侧链的合成聚合物。
27、可选地,所述的多核苷酸为单链、双链或至少一部分是双链的。
28、可选地,所述的多核苷酸可以为任意长度。例如,多核苷酸的长度可以是至少10,至少50,至少100,至少150,至少200,至少250,至少300,至少400或至少500个核苷酸或核苷酸对,也可以为1000个或更多个核苷酸或核苷酸对,5000个或更多个核苷酸或核苷酸对或100000个或更多个核苷酸或核苷酸对。
29、可选地,所述的多核苷酸中的一个或多个核苷酸可以是经过修饰的,例如甲基化、氧化、损伤、脱碱基的、蛋白标记、带有标签或多核苷酸序列中间连接一段间隔物。
30、本文中,氨基酸及缩写和英文简称如下所示:组氨酸(his,h);丝氨酸(ser,s);谷氨酸(glu,e);谷氨酰胺(gln,q);甘氨酸(gly,g);苏氨酸(thr,t);苯丙氨酸(phe,f);天冬氨酸(asp,d);酪氨酸(tyr,y);亮氨酸(leu,l);异亮氨酸(ile,i);精氨酸(arg,r);丙氨酸(ala,a);缬氨酸(val,v);色氨酸(trp,w);甲硫氨酸(met,m);天冬酰胺(asn,n);半胱氨酸(cys,c);赖氨酸(lys,k);脯氨酸(pro,p)。也使用标准的取代记法,即e80q意指序列第80位的e被q取代。
31、本发明提供的经修饰的aie解旋酶能够控制rna穿过生物纳米孔进行移动,特别在有电场力的作用下。所述解旋酶能够使得目标多核苷酸以可控和逐步地方式穿过纳米孔进行移动。
32、本发明提供的aie解旋酶突变体,其在控制多核苷酸穿过纳米孔移位的能力上得到了提高,这些突变体通常会在结构域1或者结构域3上存在一个或者多个修饰。因此,本发明所提供的经修饰的aie解旋酶,其至少有1个半胱氨酸或者非天然氨基酸的插入,而且仍然保持其控制多核苷酸移动的能力。
33、本发明还提供了通过连接分子将结构域1和结构域3共价连接起来的经修饰的aie解旋酶,提高了本发明所述aie解旋酶与多核苷酸结合的稳定性,尤其当多核苷酸链长度增加时,本发明所述解旋酶依然可以稳定控制多核苷酸移动而不会从多核苷酸上发生脱落。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com