
融合蛋白、CRISPRi系统及其应用
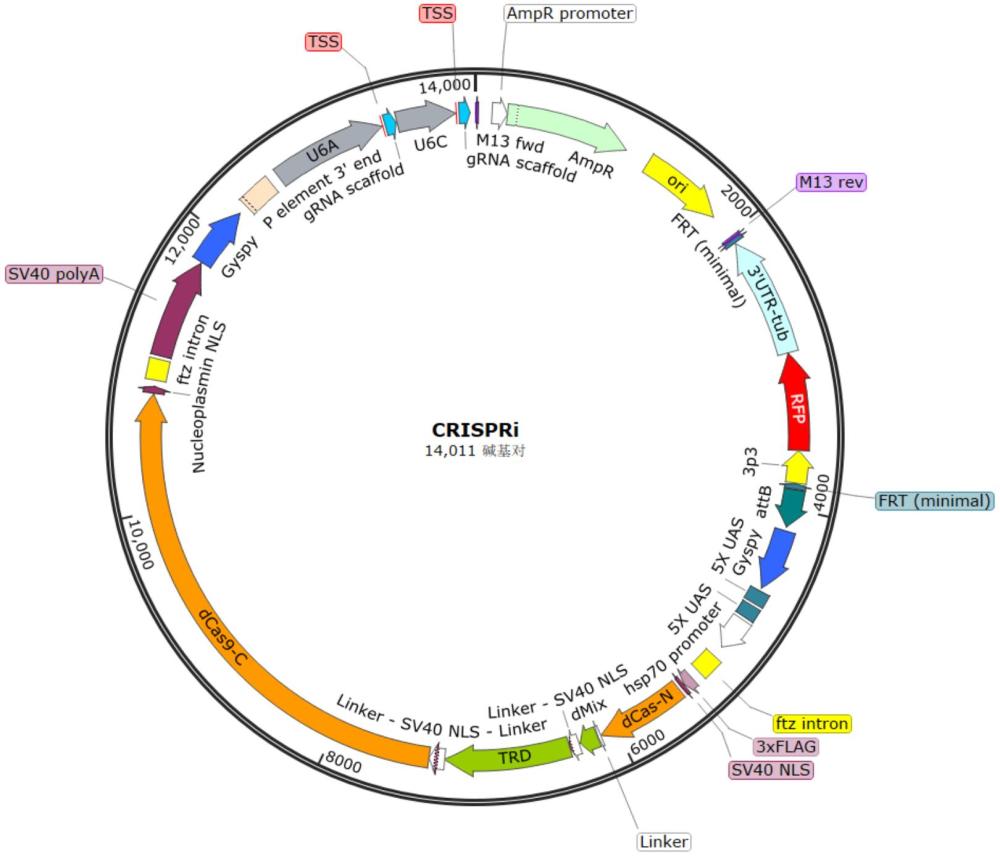
本发明属于生物,具体涉及一种融合蛋白、crispri系统及其应用。
背景技术:
1、rna干扰(rnai)由长度约为21-23个核苷酸的小rna介导,但由于rnai对与目标碱基配对的错配和间隔的容忍,小rna有多达数十甚至上百个潜在靶序列,并会影响目标靶向序列之外的mrna水平。在果蝇中大规模rnai筛选中,同样发现rnai具有不低的脱靶效应并伴随着不可忽视的错误筛选率。靶向rna的crispr/cas13系统已被证明在动物细胞与体内会产生脱靶并导致模式动物的死亡。因此需要一种更加精准且有效的基因沉默工具,以便用于生物学研究。
2、核小体是染色质最基本的组成单位,由各两个拷贝的组蛋白h2a、h2b、h3和h4组成的异源八聚体与表面包裹着的约150 bp的dna共同构成。组蛋白尾部上的氨基酸残基会被各种修饰因子修饰,不同的修饰状态会对染色质状态与基因表达产生影响。
3、组蛋白尾部被正电基团修饰时,组蛋白八聚体会与dna结合的更加紧密,染色质进行浓缩并形成异染色质,从而导致基因沉默。负电形式的修饰则会使组蛋白与dna的结合程度减弱,dna得以从核小体中释放,各种转录因子对dna序列的可接近性大大提高,基因也会变成转录活跃状态,因此组蛋白乙酰化(如h3k9ac、h3k27ac)便是转录活跃的基因转录起始位点附近核小体修饰的特征。同理,当组蛋白乙酰化修饰被移除时,核小体与dna的结合能力便会增强,染色质便会凝缩,基因表达水平便会降低甚至关闭。
4、当前基因沉默技术面临的多重瓶颈:基于rna干扰(rnai)和crispr-cas13d的系统普遍存在靶向效率不足及非特异性脱靶风险(如rnai介导的mirna通路干扰、cas13d对同源rna的误切割);传统基因敲除手段(如crispr-cas9)通过双链断裂(dsb)介导的修复机制,易引发染色体易位或大片段缺失等基因组不稳定性事件;以及无法对致死性基因的研究的限制。因此,开发一种具有高精度靶向性、低脱靶率及动态调控能力的新型基因沉默工具,已成为突破功能基因组学研究和疾病治疗转化瓶颈的迫切需求。
技术实现思路
1、为解决现有技术中的基因沉默技术存在靶向效率较低、具有非特异性脱靶风险、易引发染色体易位或大片段缺失等基因组不稳定性事件、以及无法对致死性基因进行研究的不足,本发明提供一种融合蛋白、crispri系统及其应用。本发明提供的融合蛋白能够与sin3蛋白家族进行互作结合,进一步招募hadcs并形成组蛋白去乙酰化复合物,最终实现组蛋白去乙酰化并完成下游基因的沉默。包含上述融合蛋白的crispri系统,能够实现下游基因的沉默。所述融合蛋白或所述crispri系统应用于基因沉默时,具有精确的靶向能力和高效的基因沉默效率,并且未见明显的脱靶,有广泛的应用前景。
2、为解决上述技术问题,本发明提供以下技术方案:
3、本发明第一方面提供一种融合蛋白,所述融合蛋白包含:
4、第一结构域,所述第一结构域为dcas9;
5、第二结构域,所述第二结构域为mxi蛋白的n端结构域;和,
6、第三结构域,所述第三结构域为mecp2蛋白的转录抑制结构域;
7、所述mxi蛋白的n端结构域和/或所述mecp2蛋白的转录抑制结构域能与sin3蛋白互作结合。
8、本发明一些实施方案中,所述融合蛋白满足以下一项或多项:
9、(1)dcas9衍生于化脓性链球菌(streptococcus pyogenes)的cas9、金黄色葡萄球菌(staphylococcus aureus)的cas9、脑膜炎奈瑟菌(neisseria meningitis)的cas9、嗜热链球菌(streptococcus thermophilis)的cas9或齿垢密螺旋体(treponema denticola)的cas9;
10、(2)所述mxi蛋白的n端结构域包含如seq id no: 12所示的氨基酸序列;
11、(3)所述mecp2蛋白的转录抑制结构域包含如seq id no: 14所示的氨基酸序列。
12、本发明一些较佳的实施方案中,所述dcas9包含seq id no: 16所示的氨基酸序列。
13、本发明一些较佳的实施方案中,所述dcas9包括dcas9片段1和dcas9片段2。
14、本发明一些具体的实施方案中,所述dcas9片段1包含如seq id no: 16所示的氨基酸序列的第1到第206位氨基酸残基,所述dcas9片段2包含如seq id no: 16所示的氨基酸序列的第207到第1370位氨基酸残基。
15、本发明一些更佳的实施方案中,所述融合蛋白从n端到c端依次包含:
16、dcas9、mxi蛋白的n端结构域和mecp2蛋白的转录抑制结构域;或,
17、dcas9片段1、mxi蛋白的n端结构域、mecp2蛋白的转录抑制结构域和dcas9片段2;或,
18、dcas9片段1、mxi蛋白的n端结构域和dcas9片段2;或,
19、dcas9片段1、mecp2蛋白的转录抑制结构域、mxi蛋白的n端结构域和dcas9片段2;或,
20、dcas9、mecp2蛋白的转录抑制结构域和mxi蛋白的n端结构域;或,
21、mecp2蛋白的转录抑制结构域、mxi蛋白的n端结构域和dcas9。
22、本发明一些实施方案中,所述融合蛋白还包含一个或多个核定位序列。
23、本发明一些实施方案中,所述第一结构域、所述第二结构域和/或所述第三结构域之间直接连接或通过连接子连接。
24、本发明一些较佳的实施方案中,所述核定位序列为sv40核定位序列和/或核质蛋白核定位序列。
25、本发明一些较佳的实施方案中,连接子1-3的氨基酸序列分别如seq id no: 21-23所示。
26、本发明一些更佳的实施方案中,所述sv40核定位序列包含如seq id no: 24所示的氨基酸序列。
27、本发明一些更佳的实施方案中,所述核质蛋白核定位序列包含如seq id no: 25所示的氨基酸序列。
28、本发明一些具体的实施方案中,所述融合蛋白所述融合蛋白从n端到c端依次包含:
29、(i)sv40核定位序列、dcas9片段1、连接子2、mxi蛋白的n端结构域、连接子1、dcas9片段2和核质蛋白核定位序列;或,
30、(ii)sv40核定位序列、dcas9片段1、连接子2、mxi蛋白的n端结构域、连接子3、sv40核定位序列、mecp2蛋白的转录抑制结构域、连接子3、sv40核定位序列、如seq id no: 21所示的氨基酸序列、dcas9片段2和核质蛋白核定位序列;或,
31、(iii)sv40核定位序列、dcas9、连接子2、mxi蛋白的n端结构域、连接子3、sv40核定位序列、mecp2蛋白的转录抑制结构域、连接子3和核质蛋白核定位序列。
32、本发明第二方面提供一种分离的核酸,所述核酸编码如第一方面所述的融合蛋白。
33、本发明一些实施方案中,所述dcas9的编码序列包含如seq id no: 15所示的核苷酸序列。
34、本发明一些实施方案中,所述mxi蛋白的n端结构域的编码序列包含如seq id no:11所示的核苷酸序列。
35、本发明一些实施方案中,所述mecp2蛋白的转录抑制结构域的编码序列包含如seqid no: 13所示的核苷酸序列。
36、本发明一些实施方案中,dcas9片段1的编码序列包含如seq id no: 15所示的核苷酸序列的第1位到第618位核苷酸残基。
37、本发明一些实施方案中,dcas9片段2的编码序列包含如seq id no: 15所示的核苷酸序列的第619位到第4110位核苷酸残基。
38、本发明一些具体的实施方案中,所述核酸包含选自如seq id no: 31、seq id no:32或seq id no: 33所示的核苷酸序列。
39、本发明第三方面提供一种重组表达载体,所述重组表达载体包含如第二方面所述的核酸。
40、本发明第四方面提供一种转化体,所述转化体包含如第二方面所述的核酸或如第三方面所述的重组表达载体。
41、本发明一些实施方案中,所述转化体为非动物和植物品种。
42、本发明第五方面提供一种重组表达载体系统,所述重组表达载体系统包含(a)如第二方面所述的核酸;还包含(b)一个或多个编码靶向靶基因的grna的dna模板序列;
43、所述dna模板序列与所述核酸位于同一或不同的质粒骨架中。
44、本发明一些实施方案中,(a)中所述核酸连接于果蝇组织特异性启动子和/或诱导型启动子。
45、本发明一些较佳的实施方案中,所述果蝇组织特异性启动子为gal4/uas系统的启动子、nanos启动子或actin5c启动子。
46、本发明一些具体的实施方案中,所述gal4/uas系统的启动子为10×uas启动子,所述诱导型启动子为hsp70启动子。
47、本发明一些实施方案中,(a)中所述核酸的上游及下游分别包含一个内含子,所述内含子例如为ftz内含子。
48、本发明一些实施方案中,(b)中所述dna模板序列连接于u6a启动子和/或u6c启动子。
49、本发明一些具体的实施方案中,所述u6a启动子包含如seq id no: 19所示的核苷酸序列,所述u6c启动子包含如seq id no: 20所示的核苷酸序列。
50、本发明一些实施方案中,(b)中包含一个或两个编码靶向目标基因的grna的dna模板序列。
51、本发明一些较佳的实施方案中,所述grna包含选自seq id no: 1-10所示的核苷酸序列。
52、本发明一些具体的实施方案中,所述重组表达载体系统具有如seq id no: 1所示的序列的grna;或,具有如seq id no: 2所示的序列的grna;或,具有如seq id no: 5所示的序列的grna;或,具有如seq id no: 9所示的序列的grna;或,具有如seq id no: 3所示的序列的grna和具有如seq id no: 6所示的序列的grna;或,具有如seq id no: 4所示的序列的grna和具有如seq id no: 7所示的序列的grna;或,具有如seq id no: 8所示的序列的grna和具有如seq id no: 10所示的序列的grna。
53、本发明一些实施方案中,所述质粒骨架中还包含标记基因和/或重组酶特异性识别的重组序列。
54、本发明一些较佳的实施方案中,所述标记基因为抗生素标记基因、荧光蛋白编码基因或营养缺陷互补型筛选标记基因。
55、本发明一些更佳的实施方案中,所述抗生素标记基因为ampr。
56、本发明一些更佳的实施方案中,所述荧光蛋白编码基因为rfp。
57、本发明一些更佳的实施方案中,所述重组酶为phic31重组酶,所述重组序列为attb序列或attp序列。
58、本发明一些实施方案中,所述质粒骨架中还包含utr和/或poly a。
59、本发明第六方面提供一种crispri系统,所述crispri系统选自:
60、(1)如第一方面所述的融合蛋白、如第二方面所述的核酸或如第三方面所述的重组表达载体;或,
61、(2)如第五方面所述的重组表达载体系统。
62、本发明一些实施方案中,(1)中还包含grna、编码grna的dna模板序列和/或包含所述dna模板序列的构建体,所述grna将dcas9引导至靶位点。
63、本发明一些实施方案中,(2)中还包含重组酶、编码重组酶的核酸或所述编码重组酶的核酸的构建体,所述重组酶优选为phic31重组酶。
64、本发明一些较佳的实施方案中,(1)中,所述grna包含选自seq id no: 1-10所示的核苷酸序列。
65、本发明一些具体的实施方案中,所述grna包含:具有如seq id no: 1所示的序列的grna;或,具有如seq id no: 2所示的序列的grna;或,具有如seq id no: 5所示的序列的grna;或,具有如seq id no: 9所示的序列的grna;或,具有如seq id no: 3所示的序列的grna和具有如seq id no: 6所示的序列的grna;或,具有如seq id no: 4所示的序列的grna和具有如seq id no: 7所示的序列的grna;或,具有如seq id no: 8所示的序列的grna和具有如seq id no: 10所示的序列的grna。
66、本发明第七方面提供一种基因沉默的方法,所述方法包括将如第一方面所述的融合蛋白、如第二方面所述的核酸、如第三方面所述的重组表达载体、如第五方面所述的重组表达载体系统或如第六方面所述的crispri系统导入果蝇胚胎或体细胞,得到crispri果蝇的步骤。
67、本发明一些实施方案中,当导入如第五方面所述的重组表达载体系统或导入如第六方面所述的crispri系统中的(2)时,所述方法还包括将得到的crispri果蝇与gal4工具果蝇杂交,获得子代果蝇的步骤,以通过gal4-uas调控机制激活对靶基因的沉默。
68、本发明第八方面提供如第一方面所述的融合蛋白、如第二方面所述的核酸、如第三方面所述的重组表达载体、如第四方面所述的转化体、如第五方面所述的重组表达载体系统或如第六方面所述的crispri系统在基因沉默或制备基因沉默的药物中的应用。
69、本发明一些实施方案中,所述基因沉默发生在果蝇体内。
70、本发明一些具体的实施方案中,所述果蝇为黑腹果蝇(drosophilamelanogaster)。
71、本发明涉及表观基因编辑中的基因沉默领域,具体涉及一种用于在黑腹果蝇(drosophila melanogaster)内进行高效率基因沉默的crispri系统的构建与使用。即利用甲基化cpg结合蛋白2(methyl-cpg-binding protein 2, mecp2)的转录抑制结构域(transcriptional repression domain, trd)、mxi蛋白的n端结构域与dspcas9融合,从而构建出拥有比dcas9拥有更高基因沉默效率的dspcas9-mxi-trd融合蛋白,进而在果蝇体内实现更高基因沉默效率的表观基因编辑方法。
72、组蛋白的去乙酰化由各种类型的组蛋白去乙酰化酶(histone deacetylases,hdacs)负责。目前已有众多研究表明甲基cpg结合蛋白2(methyl-cpg-binding protein 2,mecp2)的转录抑制结构域(transcriptional repression domain, trd)与max相互作用蛋白1(max-interacting protein 1, mxi)的n端结构域能够与sin3蛋白家族进行互作结合,而sin3蛋白能够招募hadcs并形成组蛋白去乙酰化复合物,最终实现组蛋白去乙酰化并完成下游基因的沉默。
73、x染色体上编码甲基化cpg结合蛋白2(mecp2)的基因mecp2有两个重要的结构域:mbd(methyl-cpg binding domain),该结构域负责结合甲基化的dna;trd(transcriptionrepression domain),该区域通过招募共抑制复合物ncor/smrt抑制基因的转录。
74、对于当前存在rnai与cas13d系统存在敲除效率低且会产生脱靶效应、基因敲除或条件性敲除会导致在基因组上产生非必要的脱靶及无法对致死性基因进行研究等难题,本发明旨在提供一种能够高效且精准的沉默目的基因的方法。
75、由于蛋白质结构决定蛋白质功能,因此在进行蛋白质工程改造时,为了保证被改造蛋白的功能不会缺失,通常不会进行影响蛋白质结构的改造。α螺旋和β折叠是维持蛋白质结构的基础结构,因此在蛋白质内部进行改造时,通常会避免引起内部α螺旋和β折叠的改变,或将某一些不重要的α螺旋和β折叠进行删除。因此,当在dspcas9内部进行结构域的插入时,选择了dspcas9蛋白最边缘位置且结构最为松散的α螺旋与无规则卷曲的交界处进行转录抑制结构域的插入,以最大程度的保证dspcas9的功能不被破坏。具体而言,本发明的关键在于在dspcas9蛋白内部嵌入融合进mxi蛋白n端结构域与trd结构域(嵌入位置为dcas9蛋白第206与第207位氨基酸之间),以使得内嵌型dspcas9-mxi-trd融合蛋白拥有招募组蛋白去乙酰化酶的能力,从而显著提升基因抑制效率。
76、经研究发现:crispri系统在w基因的抑制上能够达到与基因敲除相同的表型;在果蝇的不同组织内,crispri系统均能取得不错的抑制效果;qpcr实验证明,crispri系统在分子水平上的基因抑制能力同样优于rnai;cdna回补实验证明了crispri系统的靶向能力的精准性,在靶向过程中crispri系统没有产生明显可见的脱靶。
77、综合而言,本发明提供了一种适用于黑腹果蝇且优于传统rnai技术的用于基因沉默的融合蛋白和crispri系统,具有高效的基因沉默效率与较低的脱靶概率,为黑腹果蝇的基因研究提供了新的工具。
78、本发明为将为黑腹果蝇功能基因的研究、动物表观基因编辑等方向提供技术支撑。
79、在符合本领域常识的基础上,上述各优选条件,可任意组合,即得本发明各较佳实例。
80、本发明所用试剂和原料均市售可得。
81、本发明的积极进步效果在于:本发明提供了一种融合蛋白,所述融合蛋白具有基因沉默能力。将所述融合蛋白和包含其的crispri系统与其它基因沉默工具如rnai等技术作了比较实验,并进行cdna回补实验,确定了本发明提供的融合蛋白和crispri系统在果蝇体内的基因沉默效率高以及靶向的精准性。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com