
改造型烟酰胺磷酸核糖转移酶和使用其制造烟酰胺单核苷酸的方法与流程
本发明涉及一种改造型(突变型)烟酰胺磷酸核糖转移酶和使用其制造烟酰胺单核苷酸的方法。
背景技术:
1、烟酰胺单核苷酸(nmn)是烟酰胺腺嘌呤二核苷酸(nad+)的合成中间体。近年来,明确了nmn通过转化为nad+而控制长寿基因“沉默调节蛋白(sirtuin)”的活性,以及向小鼠给药nmn会显示出抗老化作用。而且,还报道了nmn对糖尿病、阿尔茨海默病、心力衰竭等疾病的预防、症状的改善有效。对于这样的nmn,期待用作功能性食品、药物、化妆品等的成分,为了提高生产率,正在推进高效制造方法的研究开发。
2、作为nmn的制造方法,除了基于有机合成的方法以外,还已知发酵法、酶法等生物学方法。通过酶法进行的nmn的制造大致分类为两种。一种是使烟酰胺磷酸核糖转移酶(nampt)作用于磷酸核糖焦磷酸(prpp)和烟酰胺(nam)而制造的方法(以下称为nampt途径酶法),另一种是使烟酰胺核糖激酶(nrk)作用于烟酰胺核糖(nr)和三磷酸腺苷(atp)而制造的方法(以下称为nrk途径酶法)。nrk途径酶法虽然通过一步反应且通常产率也高,但原料的nr本身的价格昂贵是问题。另一方面,nampt途径酶法中使用的原料prpp的市售品也昂贵,但能以廉价的核糖作为原料来制造prpp本身。即,nampt途径酶法经过如下三个阶段的酶反应,从而有可能比nrk途径酶法更廉价地制造nmn:(1)由核糖生成核糖-5-磷酸(r5p)的第一反应、(2)由r5p生成磷酸核糖焦磷酸(prpp)的第二反应、以及(3)由prpp和烟酰胺(nam)生成nmn的第三反应。
3、烟酰胺磷酸核糖转移酶(nampt)是哺乳动物nad+合成体系中的限速酶,是催化上述第三反应的酶(非专利文献1)。野生型nampt的活性与其他酶相比较低,不能说对于nmn的工业生产是充分的,因此进行了活性高的野生型nampt的探索(非专利文献2~4、专利文献1和2)。
4、此外,为了改善nmn的生产效率,还尝试了在野生型的nampt的序列中导入突变而得到的突变型nampt的制作(非专利文献5~8、专利文献3~7)。本发明人等也报道了酶活性高的改造型(突变型)nampt的制作(专利文献7)。
5、在利用nampt的由prpp和nam进行的nmn合成反应中,atp原本不是必需的。然而,在使用源自人的nampt的研究中,据报道,nampt具有atp水解活性,并且位于nampt活性中心附近的组氨酸(his)残基通过atp的水解而自磷酸化,从而使酶学的参数、化学平衡向有利于nmn生成的方向变化(非专利文献9)。在最近的研究中,提出了通过在磷酸化的his与底物prpp之间配位mg离子,从而使prpp的磷酸基的构象稳定化,促进对于nmn生成反应进行而言优选的立体构型(非专利文献10)。
6、在nampt途径酶法中,作为前体的r5p或核糖的磷酸化使用atp,但由于atp是昂贵的化合物,因此在想要廉价地制造nmn的情况下,期望其消耗量尽可能少。此外,在利用nampt的发酵法中,由于atp是由葡萄糖等碳源生物合成的,因此优选atp的消耗量少这一情况也是同样的。
7、现有技术文献
8、专利文献
9、专利文献1:wo2020/129997
10、专利文献2:wo2023/210244
11、专利文献3:wo2018/023206
12、专利文献4:wo2022/227413
13、专利文献5:wo2023/20228
14、专利文献6:cn111718915
15、专利文献7:wo2022/202952
16、非专利文献
17、非专利文献1:garten 等人,“physiological and pathophysiological rolesof nampt and nad metabolism”nature reviews endocrinology 第11卷,第535-546页(2015)
18、非专利文献2:marinescu 等人,“β-nicotinamide mononucleotide (nmn)production in escherichia coli”scientific reports 第8卷,文章编号:12278(2018)
19、非专利文献3:shoji 等人,“metabolic design for selective production ofnicotinamide mononucleotide from glucose and nicotinamide”metab eng.第65卷,第167-177页(2021)
20、非专利文献4:zhongshi 等人,“systematic engineering of escherichia colifor efficient production of nicotinamide mononucleotide from nicotinamide”acssynth.biol.第11卷,第9期,第2979-2988页(2022)
21、非专利文献5:ambra 等人,“extracellular nicotinamidephosphoribosyltransferase,a new cancer metabokine”br.j.pharmacol.第173卷,第14期,第2182-2194页(2016)
22、非专利文献6:petr 等人,“nuclear transport of nicotinamidephosphoribosyltransferase is cell cycle-dependent in mammalian cells,and itsinhibition slows cell growth”j.biol.chem.第294卷,第22期,第8676-8689页(2019)
23、非专利文献7:uffe 等人,“target enzyme mutations are the molecularbasis for resistance towards pharmacological inhibition of nicotinamidephosphoribosyltransferase”bmc cancer 第10卷,文章编号:677(2010)
24、非专利文献8:li 等人,“nicotinamide phosphoribosyltransferase in humandiseases”j.bioanal.biomed.第3卷,第13-25页(2011)
25、非专利文献9:burgos and schramm,“weak coupling of atp hydrolysis tothe chemical equilibrium of human nicotinamide phosphoribosyltransferase”biochemistry,第47卷,第42期,第11086-11096页(2008)
26、非专利文献10:dorothee 等人,“identification of structural determinantsof nicotinamide phosphoribosyl transferase (nampt) activity and substrateselectivity”j.struct.biol.第215卷,108004(2023)
技术实现思路
1、发明所要解决的问题
2、本发明的主要课题在于nmn的制造方法的改善。特别是,在nampt途径酶法中,抑制atp的无效消耗,不受反应液中的atp浓度的影响,稳定且廉价地生产nnm。
3、用于解决问题的方案
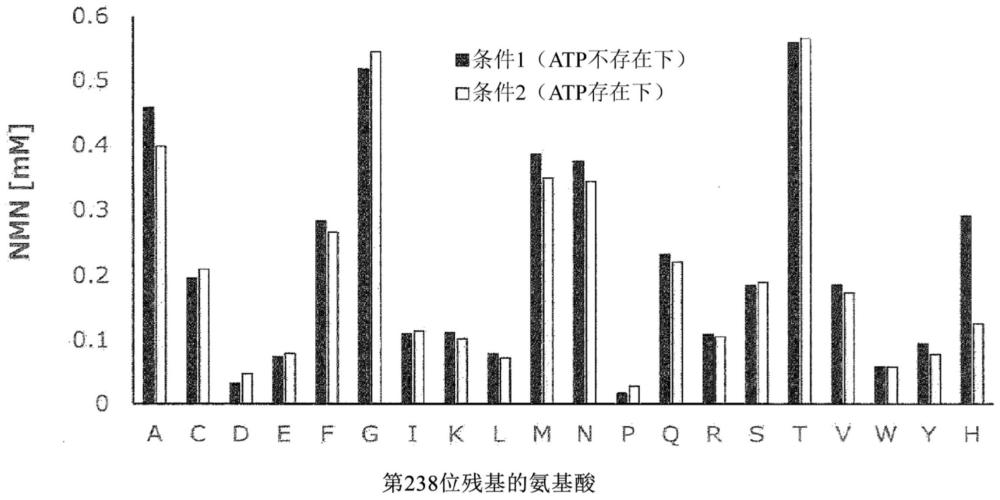
4、在非专利文献4中记载的野生型的高活性nampt(vpnampt)的评价过程中,本发明人等注意到该nampt的酶活性具有atp依赖性(在atp存在下其活性大大降低),并且认为这样的atp依赖性活性降低可能与nampt活性中心附近存在的his残基的自磷酸化有关,并且如果his残基被改造为不受自磷酸化,则可以避免在atp存在下活性降低。实际上,发现了:若将该his残基置换为其他氨基酸,则无论该突变是否提高酶活性这一变化如何,在全部的突变体中nampt活性的atp依赖性均消失,能不依赖于反应液中的atp浓度而稳定地发挥其活性;能抑制伴随自磷酸化的atp的无效消耗;在以prpp、r5p或核糖作为原料的nmn合成反应中nmn蓄积浓度提高;而且该his残基的改造在源自原核生物和噬菌体的nampt中具有普遍效果。这是从nampt的自磷酸化有利于nmn生成的报道(上述burogs和schramm(非专利文献9))和在自磷酸化his残基中引入突变导致活性消失或大大降低的报道(非专利文献5和非专利文献8)中无法预测的。
5、本发明是基于上述见解而完成的,涉及以下的[1]~[14]。
6、[1]一种改造型nampt,其是在包含下述序列编号1所示的氨基酸序列的烟酰胺磷酸核糖转移酶(nampt)中,所述序列中的h(组氨酸)被置换为其他氨基酸的改造型nampt,其中,所述nampt并非源自人:
7、序列编号1:s-[v/i]-p-a-[a/t/s/r]-e-h-s-[t/v/i]-[m/v/i/t]-[t/c/s]。
8、(其中,[]表示[]内的氨基酸中的任一个)。
9、[2]根据[1]所述的改造型nampt,其中,nampt源自原核生物或噬菌体。
10、[3]根据[1]或[2]所述的改造型nampt,其中,所述其他氨基酸为选自甘氨酸(g)、丙氨酸(a)、苏氨酸(t)、苯丙氨酸(f)、甲硫氨酸(m)以及天冬酰胺(n)中的任一种。其他氨基酸优选为g、a或t,更优选为g或a,最优选为g。
11、[4]根据[1]~[3]中任一项所述的改造型nampt,其中,改造型nampt的野生型序列具有以下的(1)或(2)的氨基酸序列。
12、(1)序列编号2、4、6、8、10、12、14、16、18、20、22、24、26、28、30、32、34、36、38、40以及42中的任一个所示的氨基酸序列。
13、(2)与序列编号2、4、6、8、10、12、14、16、18、20、22、24、26、28、30、32、34、36、38、40以及42中任一个所示的氨基酸序列具有90%以上的同一性、且编码具有nampt活性的蛋白质的氨基酸序列(所述序列中,优选序列编号2、4、6、8,更优选序列编号2、4、6,特别优选序列编号4、6)。
14、[5]根据[1]~[4]中任一项所述的改造型nampt,其中,将改造型nampt的氨基酸序列与序列编号2所示的氨基酸序列进行比对时,序列编号1所示的氨基酸序列存在于相当于序列编号2的第232位~第242位的位置。
15、[6]根据[1]~[5]中任一项所述的改造型nampt,其中,所述改造型nampt源自选自以下中任一属的原核生物或以这些原核生物为宿主的噬菌体:弧菌属(vibrio)、黄单胞菌属(xanthomonas)、水单胞菌属(aquimonas)、柄杆菌属(caulobacter)、寡养单胞菌属(stenotrophomonas)、嗜血杆菌属(haemophilus)、稍栖热菌属(meiothermus)、鞘氨醇盒菌属(sphingopyxis)、噬几丁质菌属(chitinophaga)、藤黄色杆菌属(luteibacter)、比斯加德氏菌属(bisgaardia)、奇球菌属(deinococcus)、集胞藻属(synechocystis)、希瓦氏菌属(shewanella)、酒球菌属(oenococcus)、伯克霍尔德氏菌属(burkholderia)、土地杆菌属(pedobacter)、微泡菌属(microbulbifer属)以及拉布伦茨氏菌属(labrenzia)。
16、[7]一种制造烟酰胺单核苷酸的方法,其包括在根据[1]~[6]中任一项所述的改造型nampt存在下使磷酸核糖焦磷酸与烟酰胺接触。
17、[8]根据[7]所述的方法,其中,磷酸核糖焦磷酸是在磷酸核糖焦磷酸合酶(prs)存在下由核糖-5-磷酸制造得到的。
18、[9]根据[8]所述的方法,其中,核糖-5-磷酸是在核糖激酶(rbk)存在下由核糖制造得到的。
19、[10]一种制造烟酰胺单核苷酸的方法,其包括在核糖激酶、磷酸核糖焦磷酸合酶、以及根据[1]~[6]中任一项所述的改造型nampt存在下使核糖、烟酰胺以及atp接触。
20、[11]根据[1]~[6]中任一项所述的改造型nampt,其中,改造型nampt的野生型序列是缺失了β1-β2环(由人nampt中的第42位至第51位的氨基酸残基形成)的原核生物型nampt(δ42-51型nampt)。
21、[12]根据[1]~[6]以及[11]中任一项所述的改造型nampt,其中,nampt为源自具有烟酰胺酶(nada)的生物的nampt。
22、[13]根据[7]~[10]中任一项所述的方法,其中,改造型nampt的野生型序列是缺失了β1-β2环(由人nampt中的第42位至第51位的氨基酸残基形成)的原核生物型nampt(δ42-51型nampt)。
23、[14]根据[7]~[10]以及[13]中任一项所述的方法,其中,nampt为源自具有烟酰胺酶(nada)的生物的nampt。
24、本说明书包含作为本技术的优先权基础的日本专利申请号2024-047467号的公开内容。
25、发明效果
26、本发明的改造型nampt具有如下优点:酶活性没有atp依赖性,在用于由prpp和nam进行nmn生成反应的情况下,与野生型相比,nmn蓄积浓度高,此外,由于atp水解活性降低,因此没有无用的atp消耗。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com