
蛋白质变体及使用其生产L-异亮氨酸的方法与流程
本公开要求2024年5月21日提交的韩国专利申请号10-2024-0066104和2024年10月2日提交的韩国专利申请号10-2024-0133999的优先权的权益,并且相应韩国专利申请的文件中公开的全部内容作为本公开的一部分并入本公开。在整个本公开中,引用了许多论文和专利文献,并指出了其引用。所引用的论文和专利文献的公开内容通过引用的方式整体并入本公开中,以更清楚地描述本技术所属的的水平和本技术的内容。本公开涉及一种新型蛋白质变体、编码所述蛋白质变体的多核苷酸、包含选自由所述蛋白质变体和编码所述蛋白质变体的多核苷酸组成的组中的至少一种的棒状杆菌(corynebacterium)属微生物,以及使用所述微生物生产l-异亮氨酸的方法。
背景技术:
1、l-异亮氨酸(ile, i)被分类为必需氨基酸,是总共二十种必需氨基酸中的一种支链氨基酸,并被用于制造各种产品,如动物饲料、食品添加剂和药物。l-异亮氨酸已经越来越多地用于静脉注射溶液、营养补充剂、运动营养补充剂以及动物饲料领域,因为它在代谢后的能量产生、血红蛋白产生、血糖调节、肌肉的产生和修复等方面发挥功能。
2、基于这种趋势,已经进行了各种尝试来提高使用包括棒状杆菌属微生物在内的各种微生物生产l-异亮氨酸的方法的生产能力(us6072083a)。
3、尽管做出了这些努力,仍然需要开发提高l-异亮氨酸生产能力的技术。
技术实现思路
1、技术问题
2、本公开的一个目的是提供一种新型蛋白质变体。
3、本公开的另一个目的是提供编码所述蛋白质变体的多肽。
4、本公开的另一个目的是提供一种棒状杆菌属的微生物,其包含选自由所述蛋白质变体和编码其的多核苷酸组成的组中的至少一种。
5、本公开的另一个目的是提供用于生产l-异亮氨酸的组合物,其包含所述棒状杆菌属微生物。
6、本公开的另一个目的是提供生产l-异亮氨酸的方法,其包括在培养基中培养所述微生物。
7、本公开的另一个目的是提供所述微生物用于生产l-异亮氨酸的用途。
8、技术方案
9、其详细描述如下。另一方面,本公开中公开的各描述、方面和实施方案也可以应用于各其他描述、方面和实施方案。换句话说,本公开中公开的各种元素的所有组合都属于本公开的范围。此外,本公开的范围不应被认为受限于下面描述的具体描述。此外,本领域技术人员可以仅使用普通实验来认识或确认本公开中公开的本公开的具体方面的许多等同替换。此外,这些等同替换旨在包括在本公开中。
10、此外,在整个本公开中,引用了大量论文和专利文献,并指出其引用。所引用的论文和专利文献的公开内容通过引用的方式整体并入本公开中,以更清楚地描述本公开所属的技术领域的水平和本公开的内容。
11、本公开的一个方面提供了一种蛋白质变体,其包含:其中在对应于seq id no: 52的氨基酸序列的n-末端起第15位的氨基酸和对应于seq id no: 52的氨基酸序列的n-末端起第16位的氨基酸之间插入了组氨酸(his, h)、谷氨酸(glu, e)和甘氨酸(gly, g)的氨基酸序列。
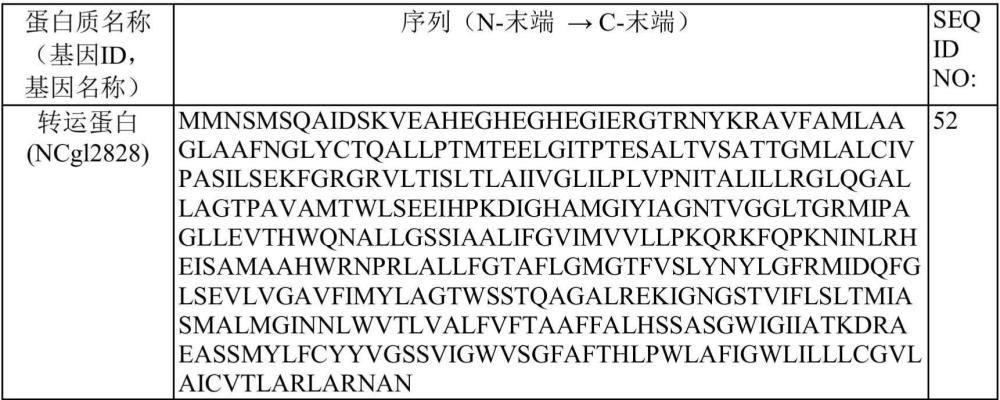
12、在本公开中,seq id no: 52的序列如下表1示出。
13、[表1]
14、
15、在一个实施方案中,本公开的上述蛋白质变体可以基本上由以下组成:其中在对应于seq id no: 52的氨基酸序列的n-末端起第15位的氨基酸和对应于seq id no: 52的氨基酸序列的n-末端起第16位的氨基酸之间插入了组氨酸(his, h)、谷氨酸(glu, e)和甘氨酸(gly, g)的氨基酸序列。在另一个实施方案中,本公开的上述蛋白质变体可以由以下组成:其中在对应于seq id no: 52的氨基酸序列的n-末端起第15位的氨基酸和对应于seqid no: 52的氨基酸序列的n-末端起第16位的氨基酸之间插入了组氨酸(his, h)、谷氨酸(glu, e)和甘氨酸(gly, g)的氨基酸序列。
16、组氨酸(his, h)、谷氨酸(glu, e)和甘氨酸(gly, g)可以按组氨酸、谷氨酸和甘氨酸的顺序依次插入。
17、在本公开中,seq id no: 52的氨基酸序列可以是转运蛋白的氨基酸序列。在一个实施方案中,所述蛋白可以是由ncgl2828基因编码的蛋白。
18、在一个实施方案中,对应于seq id no: 52的氨基酸序列中n-末端起第15位的氨基酸可以是丙氨酸(ala, a),但不限于此。
19、在一个实施方案中,对应于seq id no: 52的氨基酸序列中n-末端起第16位的氨基酸可以是组氨酸(his, h),但不限于此。
20、本公开的蛋白质变体与野生型蛋白质(多肽)相比可以具有增加l-异亮氨酸生产活性的活性。
21、如在本公开中使用的,术语“变体”指其中一个或多个氨基酸或核苷酸被保守置换和/或修饰的多肽,使得变体不同于变异前的氨基酸序列或多核苷酸序列,同时保留其功能或性质。这种变体通常可以通过修饰多肽的氨基酸序列中的一个或多个氨基酸或多核苷酸的核苷酸序列中的一个或多个核苷酸,并评估修饰的多肽或多核苷酸的性质来鉴定。也就是说,相对于变异前的多肽或多核苷酸,变体的能力可以增加、不变或降低。此外,一些变体可以包括其中一个或多个部分(如n-末端前导序列或跨膜结构域,或编码前导序列或跨膜结构域的核苷酸序列)被移除的变体。其他变体可以包括其中成熟蛋白的n-和/或c-末端的一部分或编码该部分的核苷酸序列被去除的变体。术语“变体”可以与诸如修饰、修饰的多肽、修饰的蛋白质、修饰的多核苷酸、突变体、突变蛋白质、歧化(divergent)等术语互换使用,并且不限于此,只要该术语用于表示修饰或突变的形式。
22、此外,变体可以包含对多肽的性质和二级结构影响最小的氨基酸或核苷酸(在编码多肽的多核苷酸的情况下)的缺失或添加。例如,信号(或前导)序列或编码其的核苷酸序列可以结合在n-末端,所述信号(或前导)序列与蛋白质的共翻译或翻译后易位相关。此外,变体可以与另一序列或接头结合,以进行鉴定、纯化或合成。
23、在一个实施方案中,本公开的上述蛋白质变体可以与seq id no: 52的氨基酸序列具有70%、75%、80%、85%、90%、91%、92%、93%、94%、95%、96%、97%、98%、99%、99.1%、99.2%、99.25%、99.275%或99.28%或更多且小于100%的同源性或同一性。
24、更具体地,本公开的蛋白质变体可以包含:其中在对应于seq id no: 52的氨基酸序列的n-末端起第15位的氨基酸和对应于seq id no: 52的氨基酸序列的n-末端起第16位的氨基酸之间插入了组氨酸(his, h)、谷氨酸(glu, e)和甘氨酸(gly, g)的氨基酸序列,并且可以与seq id no: 52的氨基酸序列具有90%、91%、92%、93%、94%、95%、96%、97%、98%或99%、至少99.1%、99.2%、99.25%、99.275%或99.28%或更多且小于100%的同源性或同一性。
25、此外,明显的是,即使具有其中一些序列缺失、修饰、置换、保守置换或添加的氨基酸序列的变体也包括在本公开的范围内,只要它是具有这种同源性或同一性并显示出对应于本公开变体的功效(增加l-异亮氨酸生产的功效)的氨基酸序列。
26、例如,所述变体可以包括在n-末端、c-末端和/或氨基酸序列内的不改变本公开变体功能的序列添加或缺失,以及天然发生的突变、沉默突变或保守置换。
27、“保守置换”是指一个氨基酸被不同于原始氨基酸的具有相似结构和/或化学特征的氨基酸置换。这种氨基酸置换通常基于残基的极性、电荷、溶解度、疏水性、亲水性和/或两亲性质的相似性而发生。通常,保守置换可以几乎不影响或不影响蛋白质或多肽的活性。
28、本公开的另一个方面提供了一种蛋白质变体,其包含选自由seq id no: 1至5的氨基酸序列组成的组中的至少一个氨基酸序列。在一个实施方案中,所述蛋白质变体可以是包含seq id no: 4的氨基酸序列的蛋白质变体。在其他实施方案中,所述蛋白质变体可以基本上由seq id no: 4的氨基酸序列组成。在其他实施方案中,所述蛋白质变体可以由seq id no: 4的氨基酸序列组成。
29、在本公开中,seq id no: 1的氨基酸序列可以是蛋白质变体的序列,其中由ncgl0214基因编码的蛋白质(膜蛋白)的氨基酸序列的第118位氨基酸由丙氨酸(ala, a)置换为缬氨酸(val, v)。
30、在本公开中,seq id no: 2的氨基酸序列可以是蛋白质变体的序列,其中由ncgl0216基因编码的蛋白质(假设蛋白)的氨基酸序列的第38氨基酸由丙氨酸(ala, a)置换为苏氨酸(thr, t)。
31、在本公开中,seq id no: 3的氨基酸序列可以是蛋白质变体的序列,其中由ncgl2176基因编码的蛋白质(abc型转运蛋白,重复的atp酶亚基)的氨基酸序列的第303氨基酸由缬氨酸(val, v)置换为甲硫氨酸(met, m)。
32、在本公开中,seq id no: 4的氨基酸序列可以是蛋白质变体的序列,其中在由ncgl2828基因编码的蛋白质(转运蛋白)的第15氨基酸丙氨酸(ala, a)和第16氨基酸组氨酸(his, h)之间插入了组氨酸(his, h)、谷氨酸(glu, e)和甘氨酸(gly, g)。
33、在本公开中,seq id no: 5的氨基酸序列可以是由ncgl0819基因(csm)编码的分支酸变位酶的蛋白质变体的序列,其由ncgl0819基因(csm)的第一核苷酸由a置换为g的置换产生。
34、本公开的蛋白质变体可以包含选自由seq id no: 1至5的氨基酸序列组成的组中的任一氨基酸序列(例如,seq id no: 4的氨基酸序列),或者包含与所述氨基酸序列具有至少70%、75%、80%、85%、90%、95%、96%、97%、98%、99%、99.5%、99.7%或99.9%或更多的同源性或同一性的氨基酸序列。此外,明显的是,即使具有其中一些序列缺失、修饰、置换、保守置换或添加的氨基酸序列的变体也包括在本公开的范围内,只要它是具有这种同源性或同一性并显示出对应于本公开变体的功效(增加l-异亮氨酸生产的功效)的氨基酸序列。
35、例如,所述变体可以包括在n-末端、c-末端和/或氨基酸序列内的不改变本公开变体功能的序列添加或缺失,以及天然发生的突变、沉默突变或保守置换。
36、蛋白质变体的保守置换、变体等如上所述。
37、本公开的另一个方面提供了一种多核苷酸变体,其包含选自由seq id no: 11至14组成的组的核苷酸序列。所述多核苷酸变体可以编码rrna。由所述多核苷酸变体编码的rrna可以表现出与变异前的rna(例如,对应的野生型rna)相比提高的l-异亮氨酸生产能力(例如,增加的生产量、增加的生产率、增加的产率等)。
38、在一个实施方案中,本公开的多核苷酸变体可以基本上由选自由seq id no: 11至14组成的组的核苷酸序列组成。在另一个实施方案中,本公开的多核苷酸变体可以由选自由seq id no: 11至14组成的组的核苷酸序列组成。
39、本公开的多核苷酸变体可以包含选自由seq id no: 11至14组成的组的核苷酸序列,或者可以包含与所述核苷酸序列具有至少70%、75%、80%、85%、90%、95%、96%、97%、98%、99%、99.5%、99.7%或99.9%的同源性或同一性的核苷酸序列。此外,明显的是,具有这种同源性或同一性并表现出对应于本公开变体的活性(增加l-异亮氨酸生产活性)的任何核苷酸序列都包括在本公开的范围内,即使所述序列的一部分缺失、修饰、置换、保守置换或添加。
40、例如,所述变体可以包括在5′-端、3′-端和/或核苷酸序列内的不改变本公开变体功能的序列添加或缺失,以及天然发生的突变、沉默突变或保守置换。
41、多核苷酸变体的保守置换、变体等如上所述。
42、在本公开中,术语“同源性”或“同一性”是指两个给定的氨基酸序列或核苷酸序列之间的相似程度,并且可以用百分比表示。术语同源性和同一性通常可以互换使用。
43、保守多核苷酸或多肽的序列同源性或同一性可以通过标准比对算法来确定,并且可以一起使用所用程序建立的默认空位罚分。基本上,同源或相同序列通常可以在中等或高度严格条件下与序列的全部或部分杂交。显然,杂交还包括多核苷酸与含有共同密码子或考虑到密码子简并性的密码子的多核苷酸的杂交。
44、任何两个多核苷酸或多肽序列是否具有同源性、相似性或同一性可以使用已知的计算机算法来确定,如使用例如pearson等人 (1988) [proc. natl. acad. sci. usa85]: 2444中的默认参数的“fasta”程序。另外,可以使用needleman-wunsch算法(needleman和wunsch, 1970, j. mol.biol.48: 443-453)确定,如在emboss软件包(emboss:the european molecular biology open software suite, rice等人, 2000,trends genet.16: 276-277)中的needleman程序(5.0.0版本或更高版本)(gcg程序包(包括devereux, j.等人, nucleic acids research 12: 387 (1984))、blastp、blastn、fasta(atschul, [s.] [f.,] [et al, j molec biol 215]: 403 (1990);guide to hugecomputers, martin j. bishop, [ed.,] academic press, san diego,1994和[carilloeta/.](1988) siam j applied math 48: 1073)中所执行的。例如,可以使用国家生物技术信息数据库中心的blast或clustalw来确定同源性、相似性或同一性。
45、多核苷酸或多肽的同源性、相似性或同一性可以通过使用例如gap计算机程序比较序列信息来确定,如needleman等人(1970), j mol biol.48:443,例如,smith和waterman, adv.appl.math (1981) 2:482中已知的。总之,gap程序可以被定义为两个序列中较短的序列中的符号总数除以相似排列的符号(即核苷酸或氨基酸)的数量的值。gap程序的默认参数可以包括:(1)二元比较矩阵(包含值1表示同一性和值0表示非同一性),和gribskov等人 (1986) nucl. acids res.14: 6745的加权比较矩阵,在schwartz和dayhoff编, atlas protein sequence and structure, national biomedical researchfoundation, pp. 353-358 (1979)中公开(或ednafull(ncbi nuc4.4的emboss版本)置换矩阵);(2)每个空位罚3.0并且每个空位中的每个符号额外罚0.10(或空位开放罚10,空位延伸罚0.5);以及(3)末端空位不罚分。
46、作为本公开的一个实例,本公开的变体可以具有与野生型蛋白质(多肽)相比增加l-异亮氨酸生产能力的活性。
47、在本公开中,术语“对应于”是指多肽或多核苷酸中所列位置处的氨基酸残基或核苷酸,或者与多肽或多核苷酸中所列的残基或核苷酸相似或相同或同源的氨基酸残基或核苷酸。确认对应位置处的氨基酸或核苷酸可以参考特定序列确定序列中的特定氨基酸或特定核苷酸。本公开中使用的“对应区域”通常是指相关蛋白质、核酸分子或参考蛋白质或核酸分子中的相似或对应位置。
48、例如,任何氨基酸序列;或核苷酸序列可以与以下进行比对:其中在对应于seq idno: 52的氨基酸序列的n-末端起第15位的氨基酸和对应于seq id no: 52的氨基酸序列的n-末端起第16位的氨基酸之间插入了组氨酸(his, h)、谷氨酸(glu, e)和甘氨酸(gly, g)的氨基酸序列,或选自由seq id no: 1至5组成的组的任一氨基酸序列(例如,seq id no:4的氨基酸序列);或者选自由seq id no: 6至14组成的组的任一核苷酸序列,并且基于此,氨基酸序列的各氨基酸残基或核苷酸可以参考对应于以下的氨基酸残基或核苷酸的编号位置进行编号:其中在对应于seq id no: 52的氨基酸序列的n-末端起第15位的氨基酸和对应于seq id no: 52的氨基酸序列的n-末端起第16位的氨基酸之间插入了组氨酸(his,h)、谷氨酸(glu, e)和甘氨酸(gly, g)的氨基酸序列,或选自由seq id no: 1至5组成的组的任一氨基酸序列(例如,seq id no: 4的氨基酸序列);或者选自由seq id no: 6至14组成的组的任一核苷酸序列。例如,本公开描述的序列比对算法可以确认与查询序列(也称为“参考序列”)相比的氨基酸或核苷酸的位置,或者发生修饰如置换、插入或缺失等的位置。
49、对于这种比对,可以使用例如needleman-wunsch算法(needleman和wunsch,1970, j. mol.biol.48: 443-453)、emboss软件包(emboss: the european molecularbiology open software suite, rice等人, 2000), trends genet.16: 276-277)中的needle程序等,但不限于此,并且可以适当使用本领域已知的序列比对程序,成对序列比较算法等。
50、本公开的其他方面提供了编码本公开的蛋白质变体的多核苷酸。
51、在本公开中,术语“多核苷酸”是指一定长度或更长长度的dna或rna链,它是核苷酸的聚合物,其中核苷酸单体通过共价键连接成长链形式,更具体地,是指编码变体的多核苷酸片段。
52、在一个实施方案中,所述多核苷酸可以是编码蛋白质变体的多核苷酸,所述蛋白质变体包含:其中在对应于seq id no: 52的氨基酸序列的n-末端起第15位的氨基酸和对应于seq id no: 52的氨基酸序列的n-末端起第16位的氨基酸之间插入了组氨酸(his,h)、谷氨酸(glu, e)和甘氨酸(gly, g)的氨基酸序列。
53、在一个实施方案中,所述多核苷酸可以包括包含以下的多核苷酸:选自由seq idno: 6至10的核苷酸序列组成的组的任一核苷酸序列,例如,seq id no: 9的核苷酸序列。
54、编码本公开的蛋白质变体的多核苷酸可以具有或包含选自由seq id no: 6至10的核苷酸序列组成的组的任一核苷酸序列,例如,seq id no: 9的核苷酸序列。在另一个实施方案中,所述多核苷酸可以包含与所述核苷酸序列具有至少70%、75%、80%、85%、90%、95%、96%、97%、98%、99%、99.5%、99.7%或99.9%或更多的同源性或同一性的核苷酸序列。此外,明显的是,即使具有其中一些序列缺失、修饰、置换、保守置换或添加的核苷酸序列的多核苷酸也包括在本公开的范围内,只要它是具有这种同源性或同一性并显示出对应于本公开变体的功效(增加l-异亮氨酸生产的功效)的序列。
55、在一个实施方案中,本说明书中提供的核苷酸序列或氨基酸序列可以包括通过普通诱变,例如,直接进化和/或定点诱变等,在保持其原始功能或所需功能的范围内进行修饰的核苷酸序列或氨基酸序列。在一个实施方案中,多核苷酸或多肽“包含特定核苷酸或氨基酸序列”可以意指该多核苷酸或多肽(i)由该特定核苷酸序列或氨基酸序列组成,或基本上包含该特定核苷酸序列或氨基酸序列,或(ii)由与该特定核苷酸序列或氨基酸序列具有60%或更多、70%或更多、80%或更多、85%或更多、90%或更多、91%或更多、92%或更多、93%或更多、94%或更多、95%或更多、96%或更多、97%或更多、98%或更多、99%或更多、99.5%或更多、或99.9%或更多同源性的氨基酸序列组成,或基本上包含与该特定核苷酸序列或氨基酸序列具有60%或更多、70%或更多、80%或更多、85%或更多、90%或更多、91%或更多、92%或更多、93%或更多、94%或更多、95%或更多、96%或更多、97%或更多、98%或更多、99%或更多、99.5%或更多、或99.9%或更多同源性的氨基酸序列,并保持原始功能和/或所需功能。
56、考虑到密码子的简并性或要表达本公开变体的生物体中优选的密码子,本公开的多核苷酸可以在不改变本公开的变体的氨基酸序列的范围内在编码区中具有各种修饰。具体地,本公开的多核苷酸可以具有或包含与选自由seq id no: 6至10的核苷酸序列组成的组的任一核苷酸序列(例如,seq id no: 9的核苷酸序列)具有70%、75%、80%、85%、90%、95%、96%、97%或98%或更多且小于100%的同源性或同一性的核苷酸序列,或者由或基本上由与所述核苷酸序列具有70%、75%、80%、85%、90%、95%、96%、97%或98%或更多且小于100%的同源性或同一性的核苷酸序列组成,但不限于此。
57、此外,本公开的多核苷酸可以包含可由已知基因序列制备的探针,例如,能够在严格条件下与本公开的多核苷酸序列的全部或部分互补的序列杂交的任何序列而没有限制。“严格条件”是指允许多核苷酸之间特异性杂交的条件。例如,具有高同源性或同一性的多核苷酸,即具有70%或更多、75%或更多、80%或更多、85%或更多、90%或更多、95%或更多、96%或更多、97%或更多、98%或更多、或99%或更多的同源性或同一性的多核苷酸杂交,并且低于上述同源性或同一性的多核苷酸不杂交的条件,或者通常的southern杂交的洗涤条件,即在对应于60℃、1×ssc、0.1% sds,具体地60℃、0.1×ssc、0.1% sds,更具体地68℃、0.1×ssc、0.1% sds的盐浓度和温度下,洗涤一次,具体地两次至三次的条件。
58、杂交要求两个核苷酸具有互补序列,但是根据杂交的严格性,碱基之间的错配是允许的。术语“互补”可以用于描述能够彼此杂交的核苷酸碱基之间的关系。例如,在dna的情况下,腺苷与胸腺嘧啶互补,胞嘧啶与鸟嘌呤互补。因此,本公开的多核苷酸不仅可以包含基本上相似的核苷酸序列,还可以包含与整个序列互补的分离的核酸片段。
59、具体地,可以使用包括tm值为55℃的杂交步骤的杂交条件并使用前述条件来检测与本公开的多核苷酸具有同源性或同一性的多核苷酸。另外,tm值可以是60℃、63℃或65℃,但不限于此,可以由本领域技术人员根据目的适当地调整。
60、多核苷酸杂交的合适严格性取决于多核苷酸的长度和互补程度,并且变量在本领域是熟知的。
61、本公开的其他方面提供了载体,其包含本公开的多核苷酸或多核苷酸变体。载体可以是在宿主细胞中表达多核苷酸或多核苷酸变体的表达载体,但不限于此。
62、本公开的载体可以包含dna产物,该dna产物包含编码目标多肽的多核苷酸的核苷酸序列,该多核苷酸可操作地连接到表达调控区(或表达调控序列),适于在合适的宿主中表达目标多肽。表达调控区可以包含能够启动转录的启动子、调控这种转录的任何操纵子序列、编码合适的mrna核糖体结合位点的序列和/或调控转录和翻译终止的核酸序列。载体可以转化到合适的宿主细胞中,然后独立于宿主基因组复制或发挥功能,和整合到基因组本身中。
63、本公开中使用的载体没有特别限制,可以使用本领域已知的任何载体。通常使用的载体的实例可以包括天然状态或重组状态的质粒、粘粒、病毒和噬菌体。例如,pwe15、m13、mbl3、mbl4、ixii、ashii、apii、t10、t11、charon4a和charon21a等可以作为噬菌体载体或粘粒载体使用,基于pdz的载体、基于pbr的载体、基于puc的载体、基于pbluescriptii的载体、基于pgem的载体、基于ptz的载体、基于pcl的载体和基于pet的载体等可以作为质粒载体使用。具体地,可以使用pdz、pdc、pdcm2、pacyc177、pacyc184、pcl、peccg117、puc19、pbr322、pmw118、pcc1bac或pdc24载体等。
64、作为一个实例,通过用于细胞中染色体插入的载体,可以将编码目标多肽的多核苷酸插入染色体。可以通过本领域已知的任何方法将多核苷酸插入染色体,例如同源重组,但不限于此。还可以包括确认是否插入染色体的选择标记。选择标记用于选择被载体转化的细胞,即确认是否插入了目标核酸分子,并且可以使用赋予可选择表型(如药物抗性、营养缺陷型、细胞毒性剂抗性或表面蛋白表达)的标记。在用选择剂处理的环境中,只有表达选择标记的细胞存活或显示其他表型,因此可以选择转化的细胞。
65、在本公开中,术语“转化”是指将包含编码目标多肽的多核苷酸的载体导入宿主细胞或微生物,使得由该多核苷酸编码的多肽在宿主细胞中表达。只要转化的多核苷酸可以在宿主细胞中表达,则可以包括所有这些多核苷酸,不管它们是插入到宿主细胞的染色体中还是位于染色体外。此外,多核苷酸包含编码目标多肽的dna和/或rna。多核苷酸可以以任何形式导入,只要它可以被导入宿主细胞并表达。例如,多核苷酸可以以表达盒的形式导入宿主细胞,表达盒是包含自主表达所需的所有元件的基因结构。表达盒通常可以包含与多核苷酸可操作地连接的启动子、转录终止信号、核糖体结合位点和翻译终止信号。表达盒可以是能够自我复制的表达载体的形式。此外,多核苷酸可以以其自身形式导入宿主细胞,并可操作地连接到在宿主细胞中表达所需的序列,但不限于此。
66、此外,在上文中,术语“可操作地连接”是指多核苷酸序列与启动子序列功能性地连接,该启动子序列启动并介导编码本公开目标变体的多核苷酸的转录。
67、本公开的其他方面提供了棒状杆菌属微生物,其包含选自由本公开的蛋白质变体、本公开的多核苷酸和本公开的多核苷酸变体组成的组中的至少一种。
68、本公开的微生物可以包含载体,所述载体包含本公开的蛋白质变体、编码所述蛋白质变体的多核苷酸、本公开的多核苷酸或本公开的多核苷酸变体。
69、在本公开中,术语“微生物(或菌株)”包括所有野生型微生物或天然或人工发生遗传修饰的微生物,并且可以是由于诸如外源基因的插入或内源基因活性的增强或失活等原因而使特定机制减弱或增强的微生物,其是包含用于生产目标多肽、蛋白质或产物的遗传修饰的微生物。
70、本公开的微生物可以是包含本公开的蛋白质变体、本公开的多核苷酸、本公开的多核苷酸变体和包含本公开的多核苷酸或本公开的多核苷酸变体的载体中的任一种或多种的微生物;经修饰以表达本公开的蛋白质变体、本公开的多核苷酸或本公开的多核苷酸变体的微生物;表达本公开的变体、本公开的多核苷酸或本公开的多核苷酸变体的微生物(例如,重组微生物);或具有本公开的蛋白质变体或多核苷酸变体的活性的微生物(例如,重组微生物),但不限于此。
71、本公开的微生物可以是具有l-异亮氨酸生产能力的微生物。
72、本公开的微生物可以具有与不包含选自由本公开的蛋白质变体、编码所述蛋白质变体的多核苷酸和本公开的多核苷酸变体组成的组的至少一种的棒状杆菌属微生物(即,不表达蛋白质变体的微生物,所述蛋白质变体包含:其中在对应于seq id no: 52的氨基酸序列的n-末端起第15位和第16位的氨基酸之间插入了组氨酸(his, h)、谷氨酸(glu, e)和甘氨酸(gly, g)的氨基酸序列;或选自由seq id no: 1至5组成的组的氨基酸序列,例如seq id no: 4的氨基酸序列;不包含seq id no: 6至14的核苷酸序列的微生物;表达对应于蛋白质变体的野生型蛋白质的微生物;或表达对应于多核苷酸变体的野生型多核苷酸的微生物)相比增加的l-异亮氨酸生产能力。
73、本公开的微生物可以是天然具有l-异亮氨酸生产能力的微生物,或者是其中将本公开的蛋白质变体、其编码的多核苷酸或本公开的多核苷酸变体(或包含所述多核苷酸或多核苷酸变体的载体)导入不具有l-异亮氨酸生产能力的亲本菌株和/或被赋予l-异亮氨酸生产能力的微生物,但不限于此。
74、作为一个实例,本公开的微生物是表达本公开的蛋白质变体的细胞或微生物,其被包含本公开的多核苷酸、编码本公开的变体的多核苷酸或本公开的多核苷酸变体的载体转化,并且为了本公开的目的,本公开的微生物可以包括通过包含本公开的变体而能够产生l-异亮氨酸的所有微生物。例如,本公开的微生物可以是具有增加的l-异亮氨酸生产能力的重组微生物,其通过将编码本公开的蛋白质变体的多核苷酸或本公开的多核苷酸变体导入天然野生型微生物或生产l-异亮氨酸的微生物中而获得。
75、在一个具体实施方案中,本公开的微生物可以具有与不包含选自由本公开的蛋白质变体、编码所述蛋白质变体的多核苷酸和本公开的多核苷酸变体组成的组的至少一种的棒状杆菌属微生物相比,增加的l-异亮氨酸生产能力。不包含选自所述组的至少一种的棒状杆菌属微生物可以是天然野生型微生物或未修饰的微生物,也可以称为亲本菌株。
76、在本技术中,作为宿主细胞的微生物(未修饰的微生物)可以是(1)天然具有l-异亮氨酸生产能力的微生物,(2)天然缺乏或具有显著低的l-异亮氨酸生产能力的微生物,和/或(3)其中将突变导入(转化)天然具有l-异亮氨酸生产能力的微生物或者缺乏或具有显著低的l-异亮氨酸生产能力的微生物,从而获得或表现出增强的l-异亮氨酸生产能力的微生物。在一个实施方案中,作为宿主细胞的微生物可以是谷氨酸棒状杆菌kccm12739p或谷氨酸棒状杆菌kccm11248p (kr 10-1335789 b),但不限于此。
77、在一个具体实施方案中,所述微生物(变体微生物或作为宿主细胞的微生物)可以是其中l-异亮氨酸的生物合成途径被额外增强以增加l-异亮氨酸产量的微生物,但不限于此。
78、在一个具体实施方案中,所述微生物可以是其中l-苏氨酸脱水酶的反馈抑制被解除和/或高丝氨酸脱氢酶的反馈抑制被解除的微生物。
79、在一个具体实施方案中,所述微生物可以是其中l-苏氨酸脱水酶的反馈抑制被解除的微生物。
80、在本公开中,术语“苏氨酸脱水酶(ec 4.3.1.19)”是由苏氨酸生产2-酮丁酸的酶,由ilva基因编码,并且已知受到l-异亮氨酸的反馈抑制。棒状杆菌属微生物使用丙酮酸和2-酮丁酸作为前体,通过三种中间代谢物合成l-异亮氨酸。苏氨酸脱水酶的氨基酸序列可以从已知数据库ncbi的genbank或从us 2023-0098971 a1、us 10982244 b2获得。
81、在另一个具体实施方案中,所述微生物可以是其中高丝氨酸脱氢酶的反馈抑制被解除的微生物。
82、在本公开中,术语“高丝氨酸脱氢酶(ec:1.1.1.3)”是由hom基因编码并催化高丝氨酸合成的酶。已知高丝氨酸脱氢酶受到异亮氨酸的反馈抑制。高丝氨酸脱氢酶的氨基酸序列可以从已知数据库ncbi的genbank或从us 10982244 b2获得。
83、在一个实施方案中,所述微生物可以是其中天冬氨酸激酶的反馈抑制被解除的微生物。在本公开中,术语“天冬氨酸激酶(ec: 2.7.2.4)”由lysc基因编码,天冬氨酸激酶的氨基酸序列可以从已知数据库ncbi的genbank或从us 10662450 b2获得。
84、在本公开中,术语反馈抑制的解除可以指多肽、蛋白质或酶的活性与其固有活性相比增加或增强,或者相对于其固有活性不再受到抑制。在一个实施方案中,所述微生物可以是还包含以下突变中的一个或多个突变的微生物:另外将遗传突变(r407h)导入hom基因(us 10982244 b2);另外将遗传突变(t381a、f383a和/或v323a)导入ilva基因(us 2023-0098971 a1, us 10982244 b2);和另外将遗传突变(l377k) 导入编码天冬氨酸激酶的lysc基因(us 10662450 b2),但不限于此。
85、在一个实施方案中,具有增加的l-异亮氨酸产量的本公开的微生物可以表现出与变异前的亲本菌株或未修饰的微生物相比增加约1%或更多、约10%或更多、约20%或更多、约30%或更多、约40%或更多、约42.5%或更多、约42.75%或更多、或约42.8%或更多(上限没有特别限制,并且可以为例如约200%或更少、约150%或更少、约100%或更少、或约50%或更少)的l-异亮氨酸生产能力,但不限于此。在另一个实施方案中,具有增加的l-异亮氨酸生产的本公开的微生物可以表现出与变异前的亲本菌株或未修饰的微生物相比增加约1.01倍或更多、约1.1倍或更多、约1.2倍或更多、约1.3倍或更多、约1.4倍或更多、约1.425倍或更多、约1.4275倍或更多、或约1.428倍或更多(上限没有特别限制,并且可以为例如约10倍或更少、约5倍或更少、约3倍或更少、或约2倍或更少)的l-异亮氨酸生产能力,但不限于此。
86、术语“约”是包括±0.5、±0.4、±0.3、±0.2、±0.1等的所有的范围,并且包括与出现在术语约之后的数值相同或相似的所有数值,但不限于此。
87、在一个实施方案中,本公开的微生物可以是谷氨酸棒状杆菌(corynebacteriumglutamicum)、生乳棒状杆菌(corynebacterium crudilactis)、沙漠棒状杆菌(corynebacterium deserti)、有效棒状杆菌(corynebacterium efficiens)、帚石南棒状杆菌(corynebacterium callunae)、停滞棒状杆菌(corynebacterium stationis)、单一棒状杆菌(corynebacterium singulare)、耐盐棒状杆菌(corynebacterium halotolerans)、纹带棒状杆菌(corynebacterium striatum)、产氨棒状杆菌(corynebacteriumammoniagenes)、污染棒状杆菌(corynebacterium pollutisoli)、模仿棒状杆菌(corynebacterium imitans)、睾丸棒状杆菌(corynebacterium testudinoris)或微黄棒状杆菌(corynebacterium flavescens),更具体地,它可以是谷氨酸棒状杆菌。
88、在本公开中,术语多肽的“减弱”是一个概念,包括与固有活性相比活性降低或没有活性。减弱可以与诸如失活、缺乏、下调、降低、减少、弱化等术语互换使用。
89、减弱还可以包括由于编码多肽的多核苷酸的突变等,多肽本身的活性与原始微生物所具有的多肽的活性相比降低或消除的情况;由于编码多肽的多核苷酸的基因的表达受到抑制或其翻译成多肽受到抑制等,整体多肽活性水平和/或浓度(表达水平)低于细胞中天然菌株的情况;根本不表达多核苷酸的情况;和/或即使表达多核苷酸,多肽也没有活性的情况。“固有活性”是指当性状由于天然或人工因素引起的遗传突变而改变时,性状改变前亲本菌株或未修饰的微生物原本具有的特定多肽的活性。这可以与“修饰前的活性”互换使用。多肽的活性与固有活性相比“失活、缺乏、降低、下调、减少或弱化”指的是活性与性状改变前的亲本菌株或未修饰的微生物原本具有的特定多肽的活性相比更低。
90、这种多肽活性的减弱可以通过本领域已知的任何方法来进行,但不限于此,可以通过应用本领域熟知的各种方法来实现(例如,nakashima n等人, bacterial cellularengineering by genome editing and gene silencing.int j mol sci.2014;15(2):2773-2793;sambrook等人,molecular cloning 2012等)。
91、具体地,多肽的减弱可以是
92、1)缺失全部或部分编码多肽的基因;
93、2)修饰表达调控区(或表达调控序列),从而减少编码多肽的基因的表达;
94、3)修饰组成多肽的氨基酸序列(例如,氨基酸序列中缺失/置换/添加至少一个氨基酸),从而去除或减弱多肽的活性;
95、4)修饰编码多肽的基因序列(例如,在多肽基因的核酸碱基序列中添加/置换/添加至少一个核酸碱基以编码经修饰的多肽,从而去除或减弱多肽的活性),从而去除或减弱多肽的活性;
96、5)修饰编码基因转录组(其编码多肽)的起始密码子或5'-utr区的碱基序列;
97、6)导入与编码多肽的基因的转录组互补结合的反义寡核苷酸(例如,反义rna);
98、7)在编码多肽的基因的shine-dalgarno序列之前添加与shine-dalgarno序列互补的序列,以形成不能附着核糖体的二级结构;
99、8)在编码多肽的基因序列的orf(开放阅读框)的3'端添加以相反方向转录的启动子(逆转录工程,rte);或
100、9)调节蛋白质(多肽)的细胞定位;或
101、10)选自1)至9)中的至少2种的组合,但不限于此。
102、例如,
103、1)缺失全部或部分编码多肽的基因可以是去除染色体中编码固有目标多肽的全部多核苷酸、用缺失了一些核苷酸的多核苷酸替换,或用标记基因替换。
104、此外,2)修饰表达调控区(或表达调控序列)可以是通过缺失、插入、非保守或保守置换或其组合而在表达调控区(或表达调控序列)上发生突变,或者用具有较弱活性的序列替换。表达调控区包括启动子、操纵子序列、编码核糖体结合位点的序列以及调控转录和翻译终止的序列,但不限于此。
105、此外,3)修饰编码基因转录组(其编码多肽)的起始密码子或5'-utr区的碱基序列可以是,例如,用编码与固有起始密码子相比具有较低的多肽表达率的另一个起始密码子的碱基序列置换,但不限于此。
106、此外,4)和5)修饰氨基酸序列或多核苷酸序列可以是通过缺失、插入、非保守或保守置换或其组合在序列中发生突变,或者用被改进为具有更弱活性的氨基酸序列或多核苷酸序列或被改进为没有活性的氨基酸序列或多核苷酸序列替换,但不限于此。例如,通过在多核苷酸序列中导入突变形成终止密码子,可以抑制或减弱基因的表达,但不限于此。
107、6)导入与编码多肽的基因的转录组互补结合的反义寡核苷酸(例如,反义rna)可以参考例如文献[weintraub, h.等人, antisense-rna as a molecular tool forgenetic analysis, reviews - trends in genetics, vol. 1(1) 1986]。
108、7)在编码多肽的基因的shine-dalgarno序列之前添加与shine-dalgarno序列互补的序列,以形成不能附着核糖体的二级结构,可以使mrna不能翻译或抑制其速度。
109、8)在编码多肽的基因序列的orf(开放阅读框)的3'端添加以相反方向转录的启动子(逆转录工程,rte)可以产生与编码多肽的基因的转录组互补的反义核苷酸,从而减弱活性。
110、9)调节蛋白质(多肽)的细胞定位可以将蛋白质(多肽)靶向细胞内特定的细胞器或特定的细胞内空间。例如,通过添加或去除在靶向蛋白质(多肽)中起作用的前导序列,可以将其靶向周质或细胞质,但不限于此。
111、多肽活性的这种减弱可能会基于野生型或转化前微生物菌株中表达的多肽的活性或浓度减弱相应多肽的活性或浓度表达水平,或者降低由相应多肽产生的产物的量,但不限于此。
112、在本公开中,术语多肽活性的“增强”是指多肽的活性与固有活性相比增加。增强可以与诸如激活、上调、过表达、增加等术语互换使用。在本文中,激活、上调、过表达和增加可以包括显示原本不存在的活性,或显示活性与固有活性或修饰前的活性相比提高。“固有活性”是指当性状由于天然或人工因素引起的遗传突变而改变时,性状改变前亲本菌株或未修饰的微生物原本具有的特定多肽的活性。这可以与“修饰前的活性”互换使用。多肽的活性与固有活性相比“增强”、“上调”、“过表达”或“增加”,是指活性与性状改变前的亲本菌株或未修饰的微生物原本具有的特定多肽的活性和/或浓度(表达水平)相比提高。
113、增强可以通过导入外源多肽,或增强固有多肽的活性和/或浓度(表达水平)来实现。多肽的活性是否增强可以通过相应多肽的活性程度、表达水平或由相应多肽释放的产物量的增加来证实。
114、为了增强多肽的活性,可以应用本领域熟知的各种方法,并且没有限制,只要目标多肽的活性可以与修饰前的微生物相比增强。具体地,可以使用本领域技术人员熟知的基因工程和/或蛋白质工程,这些是分子生物学的常规方法,但不限于此(例如,sitnicka等人,functional analysis of genes.advances in cell biology.2010, vol. 2.1-16、sambrook等人, molecular cloning 2012等)。
115、具体地,本公开的多肽的增强可以是
116、1)增加编码多肽的多核苷酸在细胞中的拷贝数;
117、2)用具有强活性的序列替换编码多肽的染色体上的基因表达调控区;
118、3)修饰编码基因转录组(其编码多肽)的起始密码子或5'-utr区的碱基序列;
119、4)修饰多肽的氨基酸序列,从而增强多肽的活性;
120、5)修饰编码所述多肽的多核苷酸序列,从而增强所述多肽的活性(例如,修饰多肽基因的多核苷酸,从而编码经修饰的多肽以增强多肽活性);
121、6)导入显示多肽活性的外源多肽或编码其的外源多核苷酸;
122、7)对编码多肽的多核苷酸进行密码子优化;
123、8)通过分析多肽的三级结构并选择暴露位点进行修饰或化学修饰;
124、9)调节蛋白质(多肽)的细胞定位;或
125、10)选自1)至9)中的至少2种的组合,但不限于此。
126、1)增加编码多肽的多核苷酸在细胞中的拷贝数可以通过导入载体来实现,所述载体可以不依赖于宿主而复制和发挥功能,其中编码相应多肽的多核苷酸可操作地连接到载体。另外,可以通过将编码相应多肽的多核苷酸的1个拷贝或2个拷贝或更多个拷贝导入宿主细胞的染色体中来实现。导入到染色体中可以通过将能够将多核苷酸插入宿主细胞染色体的载体导入宿主细胞来进行,但不限于此。载体如上所述。
127、2)用具有强活性的序列替换编码多肽的染色体上的基因表达调控区(或表达调控序列)可以是,例如通过缺失、插入、非保守或保守置换或其组合在序列中发生突变,以进一步增强表达调控区的活性,或者用具有更强活性的序列替换。表达调控区并不特别限于此,但可以包含启动子、操纵子序列、编码核糖体结合位点的序列以及调控转录和翻译终止的序列等。作为一个实例,可以用强启动子替换,但不限于此。
128、已知的强启动子的实例包括cj1至cj7启动子(美国专利us 7662943 b2)、lac启动子、trp启动子、trc启动子、tac启动子、λ噬菌体pr启动子、pl启动子、tet启动子、gapa启动子、spl7启动子、spl13(sm3)启动子(美国专利us 10584338 b2)、o2启动子(美国专利us10273491 b2)、tkt启动子、ycca启动子等,但不限于此。
129、3)修饰编码基因转录组(其编码多肽)的起始密码子或5'-utr区的碱基序列可以是,例如,用编码与固有起始密码子相比具有更高的多肽表达率的另一个起始密码子的碱基序列置换,但不限于此。
130、4)和5)修饰氨基酸序列或多核苷酸序列可以是通过缺失、插入、非保守或保守置换或其组合在序列中发生突变,或者用被改进对所述多肽的氨基酸序列或编码所述多肽的多核苷酸序列具有更强活性的氨基酸序列或多核苷酸序列替换,以增强所述多肽的活性,但不限于此。替换可以通过同源重组将多核苷酸插入染色体来具体进行,但不限于此。然后使用的载体还可以包含用于确认染色体插入的选择标记。选择标记如上所述。
131、6)导入显示多肽活性的外源多肽可以是将编码显示与所述多肽相同/相似活性的多肽的外源多核苷酸导入宿主细胞。外源多核苷酸的来源或序列不受限制,只要它显示与所述多肽相同/相似的活性。用于导入的方法可以由本领域技术人员通过适当选择已知的转化方法来进行,并且通过在宿主细胞中表达导入的多核苷酸,可以生产多肽并且可以增加其活性。
132、7)对编码多肽的多核苷酸进行密码子优化可以是使得在宿主细胞中增加固有多核苷酸的转录或翻译的密码子优化,或使得在宿主细胞中优化外源多核苷酸以实现转录和翻译的密码子优化。
133、8)通过分析多肽的三级结构并选择暴露位点进行修饰或化学修饰可以通过比较待分析多肽的序列信息,根据序列的相似程度确定模板蛋白候选物,并基于此确认结构,选择要修饰或化学修饰的暴露位点,并将其转化或修饰。
134、9)调节蛋白质(多肽)的细胞定位可以将蛋白质(多肽)靶向细胞内特定的细胞器或特定的细胞内空间。例如,通过添加或去除在靶向蛋白质(多肽)中起作用的前导序列,可以将其靶向周质或细胞质,但不限于此。
135、多肽活性的这种增强意味着基于野生型或转化前微生物菌株中表达的多肽的活性或浓度,增加相应多肽的活性或浓度表达水平,或增加由相应多肽产生的产物的量,但不限于此。
136、在本公开的微生物中,修饰部分或全部多核苷酸(例如,编码上述蛋白质变体的修饰)可以通过以下诱导:(a)使用用于微生物中染色体插入的载体的同源重组或使用遗传剪刀(工程核酸酶,例如crispr-cas9)的基因组编辑和/或(b)用光如紫外线和放射线等和/或化学物质的处理,但不限于此。修饰部分或全部基因的方法可以包括dna重组技术的方法。例如,通过将包含与目标基因同源的核苷酸序列的核苷酸序列或载体注入微生物以引起同源重组,可以实现缺失部分或全部基因。注入的核苷酸序列或载体可以包含显性选择标记,但不限于此。
137、在本公开的微生物中,所述蛋白质变体、多核苷酸和l-异亮氨酸等如上文其他方面所述。
138、本公开的其他方面提供了生产l-异亮氨酸的方法,其包括在培养基中培养包含以下的棒状杆菌属微生物:本公开的蛋白质变体、本公开的多核苷酸或多核苷酸变体。
139、本公开的生产l-异亮氨酸的方法可以包括在培养基中培养包含以下的棒状杆菌属微生物:本公开的蛋白质变体、本公开的多核苷酸、本公开的多核苷酸变体或本公开的载体。
140、在本公开中,“培养”是指在适当调节的环境条件下使本公开的棒状杆菌属微生物生长。本公开的培养过程可以根据本领域已知的合适的培养基和培养条件来进行。这种培养过程可由本领域技术人员根据选择的菌株容易地调整和使用。具体地,培养可以是分批、连续和/或补料分批,但不限于此。
141、在本公开中,术语“培养基”是指一种材料,其中混合了培养棒状杆菌属微生物所需的营养物作为主要成分,并提供营养物和生长因子等,包括生存和生长所必需的水。具体地,可以使用用于培养本公开的棒状杆菌属微生物的培养基和其他培养条件,只要它是用于培养普通微生物的培养基而没有特别限制,但是本公开的棒状杆菌属微生物可以在有氧条件下在含有合适的碳源、氮源、磷源、无机化合物、氨基酸和/或维生素等的普通培养基中,通过调节温度、ph等进行培养。
142、具体地,棒状杆菌属微生物的培养基可以在文献[(美国细菌学学会(americansociety for bacteriology)的“manual of methods for general bacteriology”(washington d.c., usa, 1981)]中找到。
143、在本公开中,作为碳源,可以包括碳水化合物如葡萄糖、蔗糖(saccharose)、乳糖、果糖、蔗糖(sucrose)、麦芽糖等;糖醇如甘露醇、山梨糖醇等;有机酸如丙酮酸、乳酸、柠檬酸等;氨基酸如谷氨酸、甲硫氨酸、赖氨酸等。此外,可以使用天然有机营养物,如淀粉水合物、糖蜜、黑糖蜜、米糠、木薯、甘蔗残渣和玉米浆,并且具体地,可以使用碳水化合物,如葡萄糖和无菌预处理的糖蜜(即,用还原糖转化的糖蜜)等,并且可以无限制地使用适当量的各种其他碳源。这些碳源可以单独使用,或者可以至少以两种组合使用,但不限于此。
144、作为氮源,可以使用无机氮源,如氨、硫酸铵、氯化铵、柠檬酸铵、磷酸铵、碳酸铵、硝酸铵等;有机氮源,如氨基酸,包括谷氨酸、甲硫氨酸、谷氨酰胺等,蛋白胨、nz-胺、肉提取物、酵母提取物、麦芽提取物、玉米浆、酪蛋白水合物、鱼或其降解产物、脱脂豆饼或其降解产物等。这些氮源可以单独使用或可以以至少两种组合使用,但不限于此。
145、作为磷源,可以包括磷酸二氢钾、磷酸氢二钾或其相应的含钠盐等。作为无机化合物,可以使用氯化钠、氯化钙、氯化铁、硫酸镁、硫酸铁、硫酸锰、碳酸钙等,并且除此之外,可以包括氨基酸、维生素和/或适当的前体等。这些组分或前体可以分批或连续方式添加。然而,其不限于此。
146、此外,在通过合适的方法培养本公开的棒状杆菌属微生物的过程中,通过向培养基中添加化合物如氢氧化铵、氢氧化钾、氨、磷酸、硫酸等,可以调节培养基的ph。此外,在培养过程中,可以使用消泡剂如脂肪酸聚乙二醇酯来抑制泡沫产生。此外,为了维持培养基的有氧状态,可以向培养基中注入氧气或含氧气体,或者为了维持无氧和微有氧状态,可以不注入气体或者可以注入氮气、氢气或二氧化碳气体,但不限于此。
147、本公开的培养中的培养温度可以是20至45℃,具体地,25℃至40℃、25℃至40℃、25℃至37℃、25℃至35℃、27℃至40℃、27℃至37℃、27℃至35℃、30℃至40℃、30℃至37℃、或30℃至35℃,但不限于此。在本公开的培养中,培养时间可以是约10至160小时,但不限于此。
148、通过本公开的培养生产的l-氨基酸可以释放到培养基中或保留在细胞中。
149、本公开的生产l-氨基酸的方法还可以包括制备本公开的棒状杆菌属微生物、制备用于培养菌株的培养基,或其组合(以任何顺序),例如在培养之前。
150、本公开的生产l-氨基酸的方法还可以包括根据棒状杆菌属微生物的培养(进行培养的培养基)从培养基中回收l-氨基酸。在培养后还可以包括回收。
151、根据本公开的微生物的培养方法,例如分批、连续或补料分批培养方法等,所述回收可以使用本领域已知的合适方法收集目标l-氨基酸。例如,可以使用离心、过滤、用结晶蛋白质沉淀剂处理(盐析)、提取、超声破碎、超滤、透析、各种类型的层析(如分子筛层析(凝胶过滤)、吸附层析、离子交换层析、亲和层析等)、hplc或这些方法的组合,并且使用本领域已知的合适方法,可以从培养基或微生物中回收目标l-氨基酸。
152、此外,本公开的生产l-氨基酸的方法可以额外包括纯化步骤。可以使用本领域已知的合适方法进行纯化。在一个实施方案中,当本公开的生产l-氨基酸的方法包括回收步骤和纯化步骤两者时,回收步骤和纯化步骤可以连续或不连续地进行而不考虑顺序,或者可以通过整合为一个步骤来进行,但不限于此。
153、在本公开的方法中,所述变体、多核苷酸、多核苷酸变体、载体和菌株等在上文其他方面中有所描述。
154、本公开的其他方面提供了用于生产l-异亮氨酸的组合物,其包含棒状杆菌属微生物,所述微生物包含选自由本公开的蛋白质变体、编码所述蛋白质变体的多核苷酸、本公开的多核苷酸变体、包含所述多核苷酸或多核苷酸变体的载体组成的组的至少一种;培养微生物的培养基;或其两种或更多种的组合。
155、本公开的组合物还可以包含用于生产氨基酸的组合物中通常使用的任何合适的赋形剂,并且这种赋形剂可以是例如防腐剂、润湿剂、分散剂、悬浮剂、缓冲剂、稳定剂或等渗剂等,但不限于此。
156、在本公开的组合物中,所述变体、多核苷酸、载体、菌株、培养基和l-异亮氨酸等如上文其他方面所述。
157、在本公开的另一个方面,本公开提供了增加微生物的l-异亮氨酸生产能力的方法、赋予微生物l-异亮氨酸生产能力的方法、或制备具有增加的l-异亮氨酸生产能力的微生物的方法,所述方法包括将本公开的新型蛋白质变体、编码所述变体的多核苷酸、本公开的多核苷酸变体和/或包含所述多核苷酸或多核苷酸变体的重组载体导入微生物(例如,用其转化微生物)。
158、在制备本公开的微生物的方法中,关于所述蛋白质变体、编码其的多核苷酸、多核苷酸变体、重组载体和微生物的细节如上所述。
159、根据本公开的其他方面,本公开提供了选自由以下组成的组的至少一种用于生产l-异亮氨酸、用于制备生产l-异亮氨酸的微生物、和/或用于赋予和/或增加微生物的l-异亮氨酸生产能力的用途:本公开的蛋白质变体;编码所述蛋白质变体的多核苷酸;包含所述多核苷酸的重组载体;以及包含所述蛋白质变体、编码所述蛋白质变体的多核苷酸和/或重组载体的微生物。
160、关于l-异亮氨酸生产、制备l-异亮氨酸生产微生物、和/或赋予和/或增加微生物的l-异亮氨酸生产能力的上述用途,关于所述蛋白质变体、多核苷酸、重组载体和微生物的细节如上所述。
161、根据本公开的其他方面,本公开提供了一种组合物、方法、产品、工艺或用途,其特征在于本公开中公开的至少一种元素。
162、有益效果
163、当培养包含本公开的变体的棒状杆菌属微生物时,与具有常规未修饰多肽的微生物相比,有可能以高产率生产l-异亮氨酸。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com