
干细胞及其在异种移植中的应用的制作方法
本发明涉及培养的全能/多能干细胞(如扩展潜能干细胞(epscs))和/或由其分化的细胞在异种移植中的应用,以及评估细胞、组织和/或器官用于异种移植的适用性的领域。
背景技术:
1、器官移植对于心脏病和肾衰竭等患者来说是挽救生命的,被认为是20世纪最伟大的医学成就之一。随着手术技术的快速发展和免疫抑制剂的应用,同种异体移植已成为生物医学中治疗终末期器官衰竭的唯一可用方法。然而,人类器官移植面临一个重大挑战,因为对移植手术的需求远远超过了供体器官的可用性。每年,在移植等待名单上的人中,只有不到一半能够接受器官移植。即使所有潜在捐赠者都选择捐赠,人类器官捐赠的供应也将继续无法满足需求。
2、对这种严重短缺的一种解决方案是“异种移植”,即将细胞、组织或器官从一个物种移植到另一个物种(例如,人类)的过程。虽然仍处于实验阶段,但对于患有严重心脏病和肾衰竭等疾病的患者来说,异种移植是一种潜在的挽救生命的选择。在可能适合异种移植的物种中,出于健康、安全和后勤等多方面的原因,家养动物如猪和牛在成为潜在的组织和器官来源方面被认为优于非人灵长类动物(如猴子)。猪是首选,因为它们成熟非常快,产仔数大,并且在婴儿期和成年期都具有与人类器官大小和功能相当的器官。它们也可以在微生物控制的环境中培育到高健康标准。然而,包含免疫排斥、凝血反应与炎症反应在内的物种屏障构成了一项重大挑战。
3、排斥反应,即受体的身体像攻击感染一样攻击新器官,是异种移植面临的最大实际障碍。传统上,在从一个人到另一个人的器官移植中,使用药物疗法(如环孢素)来抑制受体的免疫系统,以使移植器官能够正常工作而不被作为异物攻击和排斥。在异种移植中,当不被人体识别的组织被引入体内时,会发生一种更具攻击性的防御机制,称为“超急性排斥反应”。在几分钟内,个体的免疫系统就会开始摧毁移植的器官。
4、为克服这种器官排斥而开发的一项技术是制造“人源化”猪。在某些情况下,对猪进行基因改造以去除外来抗原表达。在某些情况下,这些经过基因改造的猪表达特定的人类蛋白质,使人类免疫系统更难将猪器官识别为属于不同物种。然而,当前利用猪体细胞进行基因工程以创造人源化猪的方法,由于基因编辑及后续表型分析方面的局限性,正面临巨大挑战。目前的猪供体是通过体细胞核移植(scnt)或克隆产生的。通常,crispr-cas9介导的基因组编辑在用于克隆的猪成纤维细胞中进行。然而,成纤维细胞的使用存在局限性。例如,复杂的基因组编辑及后续编辑结果的验证在成纤维细胞中难以进行。此外,评估基因编辑的功能性后果成本高昂且耗时,因为待检测的目标细胞必须来自克隆的动物。本公开内容满足了这些需求以及该领域的其他相关需求。
技术实现思路
1、一方面,本文提供了一种组合物,其包含猪全能/多能干细胞,其中所述猪全能/多能干细胞经遗传修饰以含有tp53中的失活突变。在一些实施方案中,所述猪全能/多能干细胞还经修饰以含有异种抗原相关基因中的失活突变。
2、另一方面,本文提供了一种组合物,其包含猪全能/多能干细胞,其中所述猪全能/多能干细胞经遗传修饰以含有异种抗原相关基因中的失活突变。
3、在一些实施方案中,所述异种抗原相关基因选自ggta1、cmah和b4galnt2组成的组。在一些实施方案中,所述猪全能/多能干细胞含有ggta1中的失活突变。在一些实施方案中,所述猪全能/多能干细胞含有cmah中的失活突变。在一些实施方案中,所述猪全能/多能干细胞含有b4galnt2中的失活突变。
4、在根据上述实施方案任一项的一些实施方案中,所述猪全能/多能干细胞还含有与器官生长相关的基因中的失活突变。在一些实施方案中,所述与器官生长相关的基因是ghr。
5、在根据上述实施方案任一项的一些实施方案中,所述失活突变是基因敲除。在一些实施方案中,通过基因编辑引入所述失活突变。
6、在根据上述实施方案任一项的一些实施方案中,所述猪全能/多能干细胞还包含异源核酸。在一些实施方案中,所述异源核酸编码免疫调节蛋白。在一些实施方案中,所述免疫调节蛋白是cd47。在一些实施方案中,所述异源核酸整合到所述全能/多能干细胞的基因组中的安全港基因座。在一些实施方案中,所述安全港基因座是rosa26。在一些实施方案中,所述异源核酸通过重组酶整合到所述全能/多能干细胞的基因组中。在一些实施方案中,所述重组酶是cre重组酶。
7、在一些实施方案中,所述异源核酸还在所述异源核酸的5'端包含lox71位点,并在所述异源核酸的3'端包含lox2272位点;或者,所述异源核酸还在所述异源核酸的3'端包含lox71位点,并在所述异源核酸的5'端包含lox2272位点。
8、在上述任一实施方案的一些实施方案中,所述猪全能/多能干细胞在遗传学和表观遗传学上是稳定的。
9、在上述任一实施方案的一些实施方案中,所述猪全能/多能干细胞是多能的。在一些实施方案中,所述猪全能/多能干细胞具有广泛的分化潜能。在一些实施方案中,所述猪全能/多能干细胞是扩展潜能干细胞(epscs)。
10、另一方面,本文提供了一种异种移植的方法,包括将在上述任一实施方案的所述的组合物引入有需要的个体,如人。
11、另一方面,本文提供了一种用于评估包含全能/多能干细胞的组合物用于异种移植的适用性的体外评估系统,其中所述系统包含由所述全能/多能干细胞分化的细胞和/或类器官。在一些实施方案中,所述细胞和/或类器官选自:内皮细胞、心肌细胞、心脏类器官、肝细胞、肝脏类器官、皮肤角质形成细胞、皮肤类器官、胰腺β细胞、胰岛、肠上皮细胞、肠道类器官、血细胞、视网膜色素上皮(rpe)细胞和肾脏类器官。
12、在一些实施方案中,根据上述关于体外评估系统的任一实施方案所述,所述包含全能/多能干细胞的组合物是上文所述的包含猪全能/多能干细胞的任一组合物。在一些替代实施方案中,所述全能/多能干细胞是未经修饰的。
13、在一些实施方案中,根据上述关于体外评估系统的任一实施方案所述,所述全能/多能干细胞是epscs。在一些实施方案中,所述全能/多能干细胞是猪全能/多能干细胞,例如猪epscs。
14、在另一方面,本文提供了一种评估包含全能/多能干细胞的组合物用于异种移植的适合性的方法,包括评估由所述全能/多能干细胞和/或由所述全能/多能干细胞分化的类器官引起的免疫应答。
15、在一些实施方案中,所述细胞和/或类器官选自由以下组成的组:内皮细胞、心肌细胞、心脏类器官、肝细胞、肝脏类器官、皮肤角质形成细胞、皮肤类器官、胰腺β细胞、胰岛、肠上皮细胞、肠道类器官、血细胞、视网膜色素上皮(rpe)细胞和肾脏类器官。
16、在一些实施方案中,根据上述关于评估方法的任一实施方案所述,所述包含全能/多能干细胞的组合物用于产生用于异种移植的克隆动物。
17、在一些实施方案中,所述细胞和/或类器官是心肌细胞和/或心脏类器官,并且所述异种移植是心脏移植。
18、在一些实施方案中,所述细胞和/或类器官是肝细胞和/或肝脏类器官,并且所述异种移植是肝脏移植。
19、在一些实施方案中,所述细胞和/或类器官是皮肤角质形成细胞和/或皮肤类器官,并且所述异种移植是皮肤移植。
20、在一些实施方案中,所述细胞和/或类器官是胰腺β细胞和/或胰岛,并且所述异种移植是胰岛移植。
21、在一些实施方案中,所述细胞和/或类器官是肠上皮细胞和/或肠道类器官,并且所述异种移植是肠道移植。
22、在一些实施方案中,所述细胞和/或类器官是血细胞,并且所述异种移植是输血。
23、在一些实施方案中,所述细胞和/或类器官是视网膜色素上皮(rpe)细胞,并且所述异种移植是rpe移植。
24、在一些实施方案中,所述细胞和/或类器官是肾脏类器官,并且所述异种移植是肾脏移植。
25、在一些实施方案中,所述细胞是内皮细胞,并且所述异种移植选自由心脏移植、肝脏移植、皮肤移植、胰岛移植、肠道移植、输血和rpe移植组成的组。
26、在一些实施方案中,根据上述关于评估方法的任一实施方案所述,所述全能/多能干细胞是猪epscs。
27、在一些实施方案中,根据上述关于评估方法的任一实施方案所述,所述方法还包括将所述全能/多能干细胞分化为所述细胞和/或类器官,包括例如将所述猪epscs分化为所述内皮细胞。
28、在一些实施方案中,根据上述关于评估方法的任一实施方案所述,所述全能/多能干细胞是经遗传修饰的。
29、在一些实施方案中,根据上述关于评估方法的任一实施方案所述,所述包含经遗传修饰的全能/多能干细胞的组合物是根据上述任一实施方案所述的组合物。
30、在一些实施方案中,根据上述关于评估方法的任一实施方案所述,所述免疫应答的评估选自由以下组成的组:异种抗原表达评估、补体介导的细胞毒性评估、抗体结合评估和巨噬细胞吞噬作用评估。在一些实施方案中,所述免疫应答的评估包括人抗体结合的评估。在一些实施方案中,所述免疫应答的评估包括人巨噬细胞吞噬作用的评估。
31、在一些实施方案中,根据上述关于评估方法的任一实施方案所述,所述方法包括将包含由经遗传修饰的epscs分化的内皮细胞的组合物的异种抗原活性与包含由未修饰的epscs分化的内皮细胞的组合物进行比较。
32、在另一方面,本文提供了一种从猪epscs生成内皮细胞群的方法,包括:(a) 将所述猪epscs置于将所述epsc分化为中胚层细胞的第一条件下;和 (b) 将所述中胚层细胞置于将所述中胚层细胞分化为内皮细胞的第二条件下。在一些实施方案中,所述epscs是经遗传修饰的。在一些实施方案中,所述方法还包括 (c) 将所述内皮细胞置于将所述内皮细胞分化为生血细胞的第三条件下。
33、在一些实施方案中,所述方法还包括在将所述猪epscs置于所述第一条件之前,在启动培养基中培养所述epscs。
34、在一些实施方案中,所述第一条件包含中胚层诱导培养基。
35、在一些实施方案中,所述第二条件包含内皮细胞诱导培养基。
36、附图简要说明
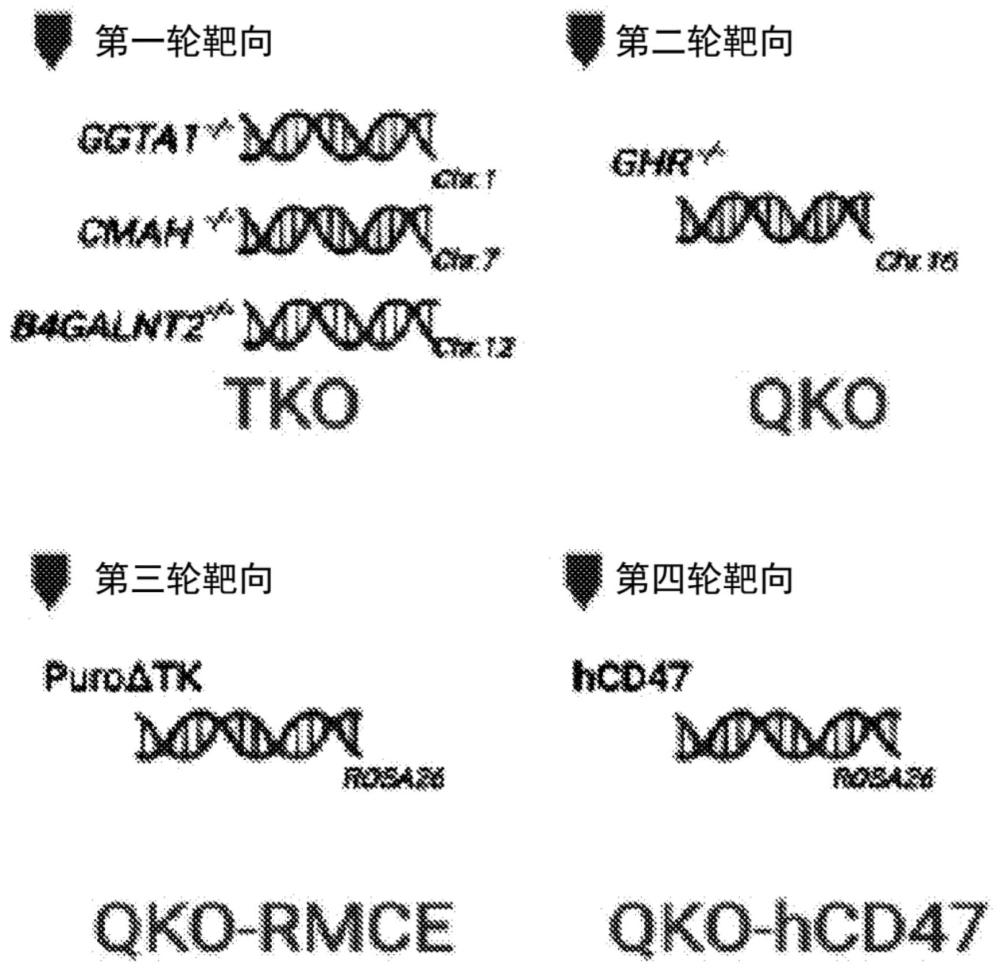
37、图1a-1h 描绘了用于异种移植的猪epscs的基因工程。图1a显示了在猪扩展潜能干细胞(epscs)基因组中进行了四轮基因靶向。第一轮靶向使用3对grna直接生成三重敲除(tko)猪epscs。第二轮靶向敲除生长激素受体ghr并生成四重敲除(qko)猪epscs。第三轮靶向是通过在rosa26基因座敲入(ki)lox66-puroδtk-lox2272盒,生成重组酶介导的盒式交换(rmce)主细胞系。第四轮靶向是通过盒式交换将人cd47 cdna引入qko-rmce主细胞系,从而生成qko-hcd47-epscs。图1b显示了rosa26基因座上rmce的示意图。图1c显示了tko效率的基因分型总结。图1d显示了基于tko-epscs的ghrko效率的基因分型总结。图1e显示了sanger测序结果,显示qko中四个基因(ggta1/cmah/b4galnt2/ghr)的移码基因组缺失。图1f显示了显示qko-epsc基因分型结果的琼脂糖凝胶图像。图1g显示了rmce、lox66-puroδtk-lox2272敲入效率的基因分型总结。图1h显示了hcd47整合效率的基因分型总结。
38、图2a-2e 描绘了通过rmce在qko-epscs中rosa26基因座的egfp整合。图2a显示了基因分型策略。图2b显示了rosa26基因座上egfp整合的基因分型结果。图2c显示了egfp靶向效率。图2d显示了egfp整合的sanger测序结果。图2e显示了egfp的表达。
39、图3显示了人cd47在pk7-qko-rmce主细胞系中整合的示意图。
40、图4a-4e 描绘了通过rmce在qko-epscs中rosa26基因座上的人cd47整合。图4a显示了rosa26基因座上人cd47整合的基因分型结果。图4b显示了基因分型策略。图4c显示了人cd47靶向效率。图4d显示了hcd47-qko-epsc明场图像。图4e显示了cd47整合的sanger测序结果。
41、图5显示了野生型和基因编辑的猪epscs的免疫荧光图像。
42、图6显示了来自猪野生型、tko和qko-hcd47 epsc细胞系的畸胎瘤组织学分析。
43、图7a-7f 显示了猪epsc源性内皮细胞的免疫应答评估。图7a显示了从猪epscs定向分化为内皮细胞的示意流程图。图7b显示猪epscs在没有α-gal表达的情况下免疫原性较差,而epsc源性内皮细胞显示出强免疫原性。图7c显示了epscs定向内皮细胞分化的图像。图7d显示了猪epsc源性内皮细胞上cd31表达的流式细胞术分析。图7e显示了不同细胞群体的pca分布。图7f显示了wt-epsc、q47-epsc、wt-endo、q47-endo、pef、ped的内皮特异性标志物基因表达。wt-epsc,野生型epsc;q47-epsc,qko-hcd47-epsc;wt-endo,野生型epsc源性内皮细胞;q47-endo,qko-hcd47-epsc源性内皮细胞;ped,猪永生化内皮细胞;pef,猪成纤维细胞。
44、图8a-8d 显示了猪epscs中有限的异种抗原表达。图8a是显示正常epscs表达neu5gc和sda聚糖表位,无α-gal表达的示意图。图8b显示了通过免疫荧光分析,在qko-hcd47-epscs上未检测到dba-凝集素(sda,由b4galnt2产生)。正常的pk7-wt-epsc和qko-hcd47-epscs对ib4-凝集素表达(α-gal,由ggta1产生)均为阴性。正常的pk7-wt-epscs为阳性对照。图8c显示,在无饲养层培养后,通过流式细胞术分析在qko-hcd47-epscs上未检测到neu5gc(由cmah产生)。正常的pk7-wt-epscs为阳性对照。图8d显示通过免疫荧光分析在qko-hcd47-epscs上人cd47的表达。正常的pk7-wt-epscs为阴性对照。
45、图9a-9g 显示了猪epsc源性内皮细胞的免疫应答评估。图9a显示了基因工程化的猪epsc源性内皮细胞具有降低的免疫原性。图9b显示了通过流式细胞术在q47-epsc源性内皮细胞上未检测到isb4-凝集素(α-gal,由ggta1产生)。wt-epsc源性内皮细胞为阳性对照。图9c显示了补体介导的细胞毒性测定结果。图9d显示了标准化死细胞百分比的计算和补体介导的细胞毒性测定结果。图9e显示了人抗体结合测定的免疫荧光图像。图9f显示了人抗体结合测定的流式结果。图9g显示了与wt-epsc源性内皮细胞和ped相比,q47-epsc源性内皮细胞中的巨噬细胞吞噬活性。
46、发明详述
47、本发明提供了包含猪全能/多能干细胞(例如猪扩展潜能干细胞(epscs))的组合物、使用猪全能/多能干细胞(例如猪epscs)和/或其分化细胞进行异种移植的方法,以及用于体外评估组合物(例如细胞、组织和/或器官)用于异种移植的适合性的方法和系统。
48、来源于植入前胚胎的猪扩展潜能干细胞(pepscs)在长期培养中具有遗传和表观遗传稳定性,具有广泛的体外和体内发育潜能,并允许高效的精准基因组编辑。
49、除了这些优势外,全能/多能干细胞(如pepscs)可以直接分化为细胞,例如内皮细胞,这些细胞可用于评估各个方面,如凝血调节、异种抗原表达、粘附分子、趋化因子和共刺激因子。全能/多能干细胞(如pepscs)可以直接分化为细胞/类器官,例如内皮细胞、心肌细胞、心脏类器官、肝细胞、肝脏类器官、皮肤角质形成细胞、皮肤类器官、胰腺β细胞、胰岛、肠上皮细胞、肠道类器官、血细胞、视网膜色素上皮(rpe)细胞和肾脏类器官,这些可用于评估包含全能干细胞和/或多能干细胞的组合物用于异种移植(例如心脏、肝脏、皮肤、胰岛、肠道、rpe、肾脏移植和输血)的适合性。猪epscs的发育潜能允许建立体外评估系统,以评估基因编辑的结果(例如潜在的免疫应答)。这种方法是有利的,因为传统的基于成纤维细胞的方法需要繁琐的程序来获得猪胚胎/胎儿或重编程细胞以获得诱导多能干细胞(ipscs),然后才能评估编辑结果。通过了解和操纵编辑结果,我们可以改善移植物功能,降低凝血、血栓形成、免疫排斥和内皮细胞活化的风险,并最终提高异种移植手术的成功率和可行性。这为评估免疫应答和评估猪内皮细胞在猪到人异种移植过程中与人血管系统的相容性提供了一种有价值的工具,同时绕过了生成克隆动物的要求。
50、本文所述的发明部分涉及一种包含猪全能/多能干细胞(例如猪扩展潜能干细胞(epscs))的组合物,其中所述猪全能/多能干细胞是经遗传修饰的。本文所述的发明还部分涉及一种异种移植的方法,包括将包含经遗传修饰的猪全能/多能干细胞(例如猪扩展潜能干细胞(epscs))的组合物引入有需要的个体。本文所述的发明还部分涉及一种用于评估包含全能/多能干细胞的组合物用于异种移植的适合性的体外评估系统,其中所述系统包含由所述全能/多能干细胞分化的细胞和/或类器官。本文所述的发明还部分涉及一种评估包含全能/多能干细胞的组合物用于异种移植的适合性的方法,包括评估由所述全能/多能干细胞和/或由所述全能/多能干细胞分化的类器官引起的免疫应答。此外,本文所述的发明还部分涉及一种从猪epscs生成内皮细胞群的方法。本文公开的组合物和方法为有效和精确地基因工程改造猪细胞以生成用于异种移植的组织和器官提供了解决方案。本文公开的组合物和方法还为快速准确地评估工程化猪细胞的免疫应答以评估其用于异种移植的适合性提供了解决方案。
51、本发明的一个方面涉及一种包含猪全能/多能干细胞的组合物,其中所述猪全能/多能干细胞经遗传修饰以含有tp53中的失活突变。
52、本发明的另一个方面涉及一种包含猪全能/多能干细胞的组合物,其中所述猪全能/多能干细胞经遗传修饰以含有异种抗原相关基因中的失活突变。
53、本发明的另一个方面涉及一种异种移植的方法,包括将本文公开的组合物引入有需要的个体。
54、本发明的另一个方面涉及一种用于评估包含全能/多能干细胞的组合物用于异种移植的适合性的体外评估系统,其中所述系统包含由所述全能/多能干细胞分化的细胞和/或类器官。
55、本发明的另一个方面涉及一种评估包含全能/多能干细胞的组合物用于异种移植的适合性的方法,包括评估由所述全能/多能干细胞和/或由所述全能/多能干细胞分化的类器官引起的免疫应答。
56、本发明的再一个方面涉及一种从猪epscs生成内皮细胞群的方法,包括:(a) 将所述猪epscs置于将所述epsc分化为中胚层细胞的第一条件下;和 (b) 将所述中胚层细胞置于将所述中胚层细胞分化为内皮细胞的第二条件下。
57、本技术中引用的所有出版物,包括专利文件、科学文章和数据库,其全部内容通过引用并入本文用于所有目的,如同每个单独出版物被单独通过引用并入一样。如果本文所阐述的定义与通过引用并入本文的专利、申请、公开申请和其他出版物中阐述的定义相矛盾或其它方面不一致,则以本文所阐述的定义为准。
58、本文使用的章节标题仅用于组织目的,不应被解释为限制所描述的主题。
59、i. 定义
60、下文讨论了一些术语和概念。它们旨在结合本公开的其余部分和附图来促进对本发明各个实施方案的理解。这些术语和概念可基于本发明领域公认的惯例以及贯穿本公开和/或附图提供的描述得到进一步阐明和理解。一些其他术语可以在本公开的其他部分和附图中明确或隐含地定义,并且可以基于本发明领域公认的惯例、贯穿本公开和/或附图提供的描述来使用和理解。未明确定义的术语也可以基于本发明领域公认的惯例来定义,并结合本公开和/或附图的上下文进行解释。
61、如本文所用,术语“一个”、“一种”和“所述”可以指“一个(种)”、“一个(种)或多个(种)”或“至少一个(种)”,除非另有特别说明。
62、术语“约”或“大约”在本文中用于指示一个值包括用于确定该值的设备、方法的固有误差变异,或仅仅是值的误差容限。例如,术语“约”或“大约”可以表示与预定值相差±1%、±5%、±10%、±15%或±20%的变异。
63、如本文所用,术语“分离”、“分开”或“纯化”及相关术语不一定指从样品中去除除目标组分之外的所有材料。相反,在一些实施方案中,这些术语用于指相对于样品中存在的其他一种或多种组分,富集一种或多种目标组分的量的过程。在一些实施方案中,“分离”、“分开”或“纯化”可用于从样品中去除或减少一种或多种组分的量。例如,表述“分离的细胞”可以指已与细胞培养物或生物体的其他细胞实质性分离或纯化的细胞。
64、术语“衍生”及指代细胞或生物样品的相关表述表明该细胞或样品在某个时间点是从所述来源获得的。例如,衍生自生物的细胞可以代表直接从该个体获得的原代细胞(即未修饰的),或者其可以被修饰,例如通过引入重组载体、暴露于特定条件或于特定条件培养、或永生化。在某些情况下,衍生自给定来源的细胞将经历细胞分裂和/或分化,使得原始细胞不再存在,但继续存在的细胞将被理解为衍生自同一来源。术语“衍生”、“衍生化”及相关术语和表述也可以在本公开中用于指从不同的起始或前体细胞群、细胞或培养物创建细胞群、细胞或培养物。例如,本公开中描述的内皮细胞可以被描述为源自扩展潜能干细胞(epsc)。
65、术语“包含”及相关术语(“包括”、“含有”等)在本公开中用于描述本发明的各种实施方案时,是开放式的,意味着它们不排除额外的元素,并且与术语“包括”、“含有”或“具有”同义。当本发明的实施方案使用术语“包含”描述时,其旨在包括其中术语“包含”被术语“由……组成”或“基本上由……组成”替换的实施方案。换言之,在本公开中使用术语“包含”及相关术语描述本发明的实施方案,也提供了使用“由……组成”或“基本上由……组成”替代“包含”的相关实施方案的描述。术语“由……组成”排除了描述中未指定的任何元素(步骤、成分等)。术语“基本上由……组成”旨在仅排除描述中未指定的、不会实质性影响实施方案的基本和新颖特征的那些元素。
66、术语“干细胞”指未分化的细胞,其能够增殖、自我更新并产生更多的祖细胞或前体细胞,这些细胞具有产生许多母细胞的能力,而这些母细胞又可以产生分化或可分化的子细胞。例如,子细胞可以被诱导增殖并产生随后分化为一种或多种成熟细胞类型的后代细胞,同时保留一个或多个具有亲本发育潜能的细胞。所有干细胞都具有三个重要特性:(1) 它们是非特化的,(2) 能够持续分裂和自我更新,以及 (3) 能够分化为特化细胞。根据发育潜能,有全能细胞(例如合子)、多能干细胞(例如esc、ipsc)和单能干细胞(例如神经干细胞和肌肉干细胞)。因此,干细胞包括各种类型和来自各种来源的胚胎干细胞、多能干细胞和单能干细胞。
67、“细胞潜能”描述了细胞分化为其他细胞类型的能力。细胞可以被指定为多能细胞、多功能细胞(可以分化为几种但并非所有细胞类型,例如脐带血干细胞和间充质干细胞)或寡能细胞(具有分化为少数细胞类型力,例如淋巴样细胞或血管细胞的能)。根据当前的理解,潜能存在于一个连续谱上。因此,基于潜能划分细胞类型之间的界限可能是流动的,并不一定是限制性的。
68、“全能干细胞”是能够通过分裂自我更新,并发育成早期胚胎的三个主要胚层以及胚外组织(如胎盘)的细胞。
69、“多能干细胞”是表现出未分化表型,并潜在地能够分化为三个胚层(内胚层、中胚层和外胚层)中任何胎儿或成体细胞类型的细胞。多能干细胞区别于全能干细胞,通常不能产生胚外细胞谱系。
70、本文所用术语“扩展潜能干细胞”或“epscs”指具有增强的产生胚外谱系能力的多能干细胞。本文所述的epscs可衍生于多种哺乳动物(包括但不限于猪、小鼠、人类和牛)的植入前胚胎。
71、“分化”是较不特化的细胞变得更特化的细胞类型的过程。例如,多细胞动物的早期发育以胚胎细胞的快速增殖为特征,然后这些细胞分化产生构成多细胞动物组织和器官的许多特化细胞类型。随着细胞分化,它们的增殖率通常会降低。某些类型的分化细胞永远不会再分裂,但许多分化细胞能够根据需要恢复增殖,以替换因损伤或细胞死亡而丢失的细胞。一些细胞在整个生命过程中持续分裂,以替换成年多细胞动物中更新率高的细胞。分化细胞的实例包括成纤维细胞、肝细胞、心肌细胞、成肌细胞、神经元、破骨细胞和淋巴细胞。
72、表述“经修饰的细胞”及相关术语和表述涵盖所有已经或衍生自已被人工修饰的细胞的细胞,与原始细胞或它们所来源的细胞相比,通过任何方法进行所述修饰。经修饰的细胞可以从原代细胞、次代细胞、干细胞、培养细胞和/或其他经修饰的细胞产生。修饰包括但不限于遗传修饰或工程改造,在这种情况下,经修饰的细胞可被称为“经遗传修饰的”或“经基因工程改造的”。遗传修饰可以通过各种导致外源或异源核酸整合到被修饰细胞中的方法来完成。此类方法的一些实例是通过病毒或病毒载体转导,或通过细胞膜上的瞬时孔将分离的核酸转染到细胞中。其他修饰包括将来源细胞暴露于生物和非生物分子或因子或培养条件。经修饰的细胞的一些实例是ipscs、经遗传修饰的细胞,包括用于基因疗法的那些,一个实例是基因编辑的细胞,例如使用crispr/cas9、talens或zfns修饰的那些。
73、在细胞培养背景下使用的术语“传代”、“传代培养”及相关术语和表述指继代培养,其通常涉及将细胞从先前的培养物转移到新鲜生长培养基中。进行传代以确保细胞在培养中的增殖。当细胞降低培养容器和/或培养基支持进一步细胞生长的能力时,培养物中的细胞增殖会减少或停止。例如,贴壁培养中的细胞可能占据所有可用的基质,没有剩余空间用于扩增,而悬浮培养中的细胞则超过培养基支持进一步生长的能力。为了使培养物中的细胞保持在适合持续生长的最佳密度并刺激进一步增殖,必须扩增培养物并提供新鲜培养基。为了分割贴壁细胞培养物,例如单层细胞培养物,如本公开中所述的分化epscs培养物,首先解离细胞,例如通过酶解离。酶解离可以通过以下方式进行:从培养板中移除孵育培养基,向板中加入缓冲液(如pbs)和酶解离试剂(如accutase、tryple或trypsin(例如,购自thermo fisher scientific)),在适当条件下用缓冲液和解离试剂孵育细胞,并通过离心、沉降、过滤或其他合适的方法收获所得的解离细胞。将解离的细胞转移到具有新鲜培养基的相似或等效的反应容器中,以产生较低的细胞密度。
74、如本文所用,“cre”指cre基因的酶表达产物,它是一种重组酶,可在lox位点(见下文定义)实现dna的位点特异性重组。一个cre基因可以通过本领域已知的方法从噬菌体p1中分离,例如,如abremski等人,cell, 32: 1301-1311 (1983) 所公开,其全部公开内容通过引用并入本文。
75、如本文所用,“lox位点”指一种核苷酸序列,在该序列处,cre基因的基因产物(在本文中称为“cre”)可以催化位点特异性重组。loxp位点是一个34个碱基对的核苷酸序列,可以通过本领域已知的方法从噬菌体p1中分离。从噬菌体p1中分离loxp位点的一种方法由hoess等人,proc. natl. acad. sci. usa, 79: 3398 (1982) 公开,其全部公开内容特此通过引用并入本文。
76、如本文所用,“标志物”指任何可被观察或检测到的分子。例如,标志物可以包括但不限于核酸,如特定基因的转录本,基因的多肽产物,非基因产物多肽,糖蛋白,碳水化合物,糖脂,脂质,脂蛋白或小分子(例如,分子量小于10,000 amu的分子)。当标志物的存在、不存在或量可通过实验观察或检测到时,此类标志物或其量可被描述为“可观察的”或“可检测的”。标志物的存在或不存在,如应用于本发明实施方案,意指通过用于检测此类标志物的适用方法检测到的标志物的可检测存在或不存在,并且可意指此类标志物的某些可检测或不可检测水平。换言之,存在可能意味着高于某一可检测水平的存在,而不存在可能意味着低于某一可检测水平的不存在,而不一定为零可检测水平。对于本文所述的大多数标志物,提供的符号是欧洲生物信息学研究所hugo基因命名委员会开发和/或认可的符号。
77、ii. 经遗传修饰的猪全能/多能干细胞
78、本技术在一个方面提供了一种包含猪全能/多能干细胞的组合物,其中所述猪全能/多能干细胞经遗传修饰以含有tp53中的失活突变。在一些实施方案中,所述猪全能/多能干细胞还经修饰以含有异种抗原相关基因中的失活突变。在一些实施方案中,所述异种抗原相关基因选自ggta1、cmah和b4galnt2组成的组。在一些实施方案中,所述epscs还含有与器官生长相关的基因中的失活突变。在一些实施方案中,所述与器官生长相关的基因是ghr。在一些实施方案中,所述失活突变是基因敲除。在一些实施方案中,所述猪全能/多能干细胞还包含异源核酸。在一些实施方案中,所述异源核酸编码免疫调节蛋白。
79、本技术在一个方面提供了一种包含猪全能/多能干细胞的组合物,其中所述猪全能/多能干细胞经遗传修饰以含有异种抗原相关基因中的失活突变。在一些实施方案中,所述异种抗原相关基因选自ggta1、cmah和b4galnt2组成的组。在一些实施方案中,所述猪全能/多能干细胞还含有与器官生长相关的基因中的失活突变。在一些实施方案中,所述与器官生长相关的基因是ghr。在一些实施方案中,所述失活突变是基因敲除。在一些实施方案中,所述猪全能/多能干细胞还包含异源核酸。在一些实施方案中,所述异源核酸编码免疫调节蛋白。
80、在一些实施方案中,所述猪全能/多能干细胞是扩展潜能干细胞(epscs)。
81、1.用于修饰的目标基因
82、在一个方面,提供了一种包含猪全能/多能干细胞(例如扩展潜能干细胞(epscs))的组合物,其中所述猪全能/多能干细胞(例如扩展潜能干细胞(epscs))经遗传修饰以含有目标基因中的失活突变。在一些实施方案中,所述目标基因是tp53。在一些实施方案中,所述目标基因是异种抗原相关基因。
83、肿瘤蛋白基因tp53被认为是细胞中的中央监控器,可被缺氧、不适当的癌基因信号或dna损伤激活。在无应激的健康细胞中,由tp53编码的促凋亡蛋白p53的半衰期很短(20分钟)。当细胞受到应激时,p53经历转录后修饰,其半衰期延长。之后,许多基因的转录被触发,分为两大类:引起细胞周期停滞的基因和引起细胞凋亡的基因。如果在细胞周期停滞期间dna损伤能够得到修复,则细胞恢复到正常状态;如果修复失败,则p53诱导细胞凋亡。
84、缺血再灌注损伤(iri)仍然是器官移植中的一个关键临床问题。它与急性和慢性排斥反应的发生率较高以及长期发病率和死亡率相关。细胞凋亡是器官移植过程中iri的主要发生事件。在再灌注期间,内皮细胞和实质细胞都容易发生凋亡或程序性细胞死亡。已有研究表明,p53在调节异种移植中的凋亡中具有重要作用。
85、在一些实施方案中,提供了一种包含猪全能/多能干细胞(例如扩展潜能干细胞(epscs))的组合物,其中所述猪全能/多能干细胞(例如扩展潜能干细胞(epscs))经遗传修饰以含有tp53中的失活突变。在一些实施方案中,所述失活突变是基因敲除。在一些实施方案中,所述失活突变是基因敲低。在一些实施方案中,所述失活突变包含点突变、缺失和/或插入。在一些实施方案中,敲除或敲低tp53减少异种移植中的细胞凋亡。
86、超急性排斥反应由接受者体内的异种反应性天然抗体(xnas)介导,并在异种移植物血液循环恢复后数分钟或数小时内发生。xnas与异种移植物的异种抗原结合,激活接受者体内的经典补体途径,导致异种移植物间质出血、水肿和血栓形成,并最终在数分钟或数小时内导致异种移植物失活和坏死。xnas识别的一种主要异种抗原是半乳糖-α1,3-半乳糖(α-gal)。α-gal由位于1号染色体的α-1,3-半乳糖基转移酶(ggta1)基因表达,在猪中发挥功能,但在人类、猿或旧世界猴中不发挥功能。
87、除α-gal外,另外两种非gal表位构成了异种移植的额外障碍。一种是n-羟乙酰神经氨酸(neu5gc),由cmp-n-乙酰神经氨酸羟化酶(cmah)基因编码(song等人,2010)。另一种是sda血型,由β-1,4-n-乙酰半乳糖氨基转移酶2(β4galnt2)产生。
88、在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))经遗传修饰以含有异种抗原相关基因中的失活突变。在一些实施方案中,所述异种抗原相关基因选自ggta1、cmah和b4galnt2组成的组。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))经遗传修饰以含有ggta1中的失活突变。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))经遗传修饰以含有cmah中的失活突变。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))经遗传修饰以含有b4galnt2中的失活突变。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))经遗传修饰以含有ggta1、cmah和b4galnt2中的失活突变。在一些实施方案中,所述失活突变是基因敲除。在一些实施方案中,所述失活突变是基因敲低。在一些实施方案中,所述失活突变包含点突变、缺失和/或插入。在一些实施方案中,敲除或敲低异种抗原相关基因(如ggta1、cmah和b4galnt2)有助于防止超急性排斥反应。
89、在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还经遗传修饰以含有与器官生长相关的基因中的失活突变。在一些实施方案中,所述与器官生长相关的基因是生长激素受体(ghr)。蛋白质生长激素受体嵌入全身细胞的外膜中,可以与生长激素结合。生长激素的结合刺激细胞的生长和分裂。在一些实施方案中,所述失活突变是基因敲除。在一些实施方案中,敲除ghr有助于控制异种移植物的过度生长。
90、在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还经遗传修饰以含有猪内源性逆转录病毒(perv)中的失活突变。perv以前病毒dna的形式整合到猪基因组中,并随着细胞增殖而复制。perv在六百多万年前整合到猪基因组中,并形成了三种亚型(perv-a、perv-b和perv-c)。两种亚型perv-a和-b可见于所有猪的基因组中,并且两者均可感染人细胞。perv对猪无害,然而,它们是否对人类有潜在危害仍不清楚。perv已被证实在体外可从猪传播给人。由于异种移植接受者处于强烈的免疫抑制状态下,避免perv感染是可取的。
91、多种基因编辑工具可能适用于工程化改造本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))以引入失活突变。基因编辑工具的实例包括但不限于 (1) 成簇规律间隔短回文重复序列(crispr)-crispr相关蛋白(cas),(2) 转录激活因子样效应物核酸酶(talens),(3) 锌指核酸酶(zfns),和 (4) 归巢内切酶或大范围核酸酶。
92、crispr是在原核生物(如细菌和古菌)基因组中发现的一族dna序列。这些序列来源于先前感染过该原核生物的噬菌体的dna片段。它们用于在随后感染期间检测和破坏来自类似噬菌体的dna。crispr-cas系统由crispr重复-间隔序列阵列(可进一步转录为crispr rna(crrna)和反式激活crispr rna(tracrrna))和一组crispr相关(cas)基因组成,这些cas基因编码具有核酸内切酶活性的cas蛋白。crispr-cas系统可分为2类(1类和2类)、6种类型(i至vi)和几个亚型,其中1类系统(i、iii和iv型)具有多cas蛋白效应复合物,2类系统(ii、v和vi型)具有单一效应蛋白。源自化脓性链球菌(spcas9)的ii型crispr-cas9系统是众多crispr-cas系统中表征最好且最常用的类别之一。crispr-cas9系统的主要组成部分是rna引导的cas9核酸内切酶和单向导rna(sgrna)。cas9蛋白具有两个核酸酶结构域,命名为hnh和ruvc,每个结构域切割靶双链dna的一条链。单向导rna(sgrna)是crrna和tracrrna的简化组合。cas9核酸酶和sgrna形成cas9核糖核蛋白(rnp),其可以结合并切割特定的dna靶标。此外,原型间隔子相邻基序(pam)序列是cas9蛋白结合靶dna所必需的。在一些实施方案中,在一轮基因编辑中使用crispr/cas修饰不止一个目标基因。例如,通过将靶向这些基因的sgrna同时引入epscs(例如,在一次电穿孔中),同时编辑ggta1、cmah和b4galnt2。
93、zfns是定制设计的cys2-his2锌指蛋白与foki限制性核酸内切酶切割结构域的融合体。zfns作为二聚体发挥作用,每个单体通过锌指dna结合结构域识别特定的“半位点”序列——通常为9至18个碱基对(bps)的dna。
94、talens在结构上与zfns相似。两种方法都使用fokl核酸酶切割dna,并且需要二聚化才能发挥功能,但是,dna结合结构域不同。talens使用转录激活因子样效应物(tales),即33-35个氨基酸重复的串联阵列。这些氨基酸重复具有单核苷酸识别能力,从而与zfns相比提高了靶向能力和特异性。
95、归巢内切酶,也称为大范围核酸酶,是一组天然存在的酶,可识别并切割长的dna序列(14-40 bps)。这些酶与其dna底物进行广泛的序列特异性接触,因此通常表现出高度的特异性。
96、碱基编辑是一种相对较新的基因组编辑方法,源自crispr-cas9。与传统的crispr系统不同,碱基编辑器(bes)不会在基因组中诱导双链断裂。碱基编辑系统使用“催化失活的”cas9(dcas9),其无法切割dna,与称为dna脱氨酶的细菌酶融合。胞苷脱氨酶(可诱导c到t替换)天然存在于细菌中,而腺嘌呤脱氨酶(可诱导a到g替换)则是专门为碱基编辑目的从细菌酶工程改造而来。将dcas9与胞苷脱氨酶(cbes)或腺嘌呤脱氨酶(abes)融合,并提供sgrna将其引导至靶序列,使研究人员能够引入dna替换。
97、为了在全能/多能干细胞(例如扩展潜能干细胞(epsc))中引入失活突变,在一些实施方案中,将全能/多能干细胞(例如扩展潜能干细胞(epsc))在猪epsc培养基中的10%fbs中更新,然后通过诸如电穿孔等方法将向导rna(如sgrna)和cas酶(如cas9)引入epsc。引入向导rna和cas酶后,将全能/多能干细胞(例如扩展潜能干细胞(epsc))接种在含有10%fbs的猪epsc培养基加y27632的饲养层孔中,y27632可抑制蛋白激酶p160rock。第二天将全能/多能干细胞(例如扩展潜能干细胞(epsc))更换为正常的猪epsc培养基。在一些实施方案中,大约10天后会出现单个电穿孔的猪全能/多能干细胞(例如扩展潜能干细胞(epsc))衍生的集落。
98、2.异源核酸
99、在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含额外的修饰。例如,在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))包含异源核酸。在一些实施方案中,所述异源核酸编码免疫调节蛋白。所述免疫调节蛋白可以是参与补体激活(如人cd46、人cd55、人cd59)、凝血调节(如人血栓调节蛋白、人内皮蛋白c受体、人血管性血友病因子(vwf))、免疫调节(如人cd47、hla-e、hla-g)和炎症控制(如人ho-1、a20)的蛋白质。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码人cd46的异源核酸。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码人cd55的异源核酸。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码人cd59的异源核酸。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码人血栓调节蛋白的异源核酸。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码人内皮蛋白c受体的异源核酸。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码人cd47的异源核酸。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码hla-e的异源核酸。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码人hla-g的异源核酸。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码人ho-1的异源核酸。在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码人a20的异源核酸。
100、在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码cd47(如人cd47)的异源核酸。人cd47在传递给巨噬细胞的“别吃我”信号中起着关键作用。在猪到人异种移植的背景下,细胞表面猪cd47的表达阻碍了这种自我耐受信号向人巨噬细胞的有效传递,导致猪异种移植物被吞噬。细胞表面的cd47可以通过与抑制性巨噬细胞受体sirpα结合来保护其免受巨噬细胞的吞噬。
101、在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))还包含编码选择标志物分子的异源核酸。选择标志物分子有助于选择已引入异源核酸的细胞(参见,例如,axel等人的美国专利号4,399,216、4,634,665和5,179,017)。例如,选择标志物分子可以赋予已引入异源核酸的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))药物抗性。
102、可以使用多种选择系统,包括但不限于单纯疱疹病毒胸苷激酶(wigler等人,cell11: 223 (1977))、次黄嘌呤-鸟嘌呤磷酸核糖转移酶(szybalska&szybalski, proc.natl. acad. sci. usa 48: 202 (1992))和腺嘌呤磷酸核糖转移酶(lowy等人,cell 22:817 (1980))基因可以分别用于tk-、hgprt-或aprt-细胞。此外,抗代谢物抗性可用作以下基因的选择基础:dhfr,其赋予对甲氨蝶呤的抗性(wigler等人,natl. acad. sci. usa77: 357 (1980);o'hare等人,proc. natl. acad. sci. usa 78: 1527 (1981));gpt,其赋予对霉酚酸的抗性(mulligan&berg, proc. natl. acad. sci. usa 78: 2072(1981));neo,其赋予对氨基糖苷类g-418的抗性(clinical pharmacy 12: 488-505; wuand wu, biotherapy 3: 87-95 (1991); tolstoshev, ann. rev. pharmacol. toxicol.32: 573-596 (1993); mulligan, science 260: 926-932 (1993); 和 morgan andanderson, ann. rev. biochem. 62: 191-217 (1993); tib tech 11(5): 155-215(1993));以及hygro,其赋予对潮霉素的抗性(santerre等人,gene 30: 147 (1984))。重组dna技术领域中通常已知的方法可常规应用于选择所需的重组克隆,并且此类方法描述于例如ausubel等人(编),current protocols in molecular biology, john wiley&sons,ny (1993);kriegler, gene transfer and expression, a laboratory manual,stockton press, ny (1990);以及dracopoli等人(编)的第12和13章,current protocolsin human genetics, john wiley&sons, ny (1994);colberre-garapin等人,j. mol.biol. 150: 1 (1981)。
103、在一些实施方案中,所述选择标志物分子是杀稻瘟菌素s脱氨酶(bsd)(izumi, 等人,exp cell res, 197: 229-33, 1991)。杀稻瘟菌素s是一种抗生素,在生物学研究中用于选择细胞培养物中的细胞。可以修饰细胞以表达杀稻瘟菌素抗性基因bsd或bsr,然后可以在抗生素处理下存活。杀稻瘟菌素s是一种核苷类似物抗生素,类似于核苷胞苷。杀稻瘟菌素通过破坏蛋白质翻译来作用于人类细胞、真菌和细菌。目标细胞表达杀稻瘟菌素s抗性基因bsd或bsr,然后可以在向培养基中加入杀稻瘟菌素s的情况下存活。
104、在一些实施方案中,所述选择标志物是新霉素抗性基因。在一些实施方案中,所述选择标志物是细菌新霉素抗性基因,例如neo。表达新霉素抗性基因的细胞对新霉素具有抗性,可以在含g418的培养基中进行选择。
105、在一些实施方案中,所述选择标志物分子是puroδtk。puroδtk是嘌呤霉素n-乙酰转移酶(puro)与截短形式的单纯疱疹病毒1型胸苷激酶(δtk)的融合体。表达puroδtk的细胞对嘌呤霉素具有抗性,并对1-(-2-脱氧-2-氟-1-β-d-阿拉伯呋喃糖基)-5-碘尿嘧啶(fiau)敏感。puroδtk作为融合蛋白发挥作用,并保留其组分用于正选择和负选择的全部活性。细胞的筛选可以通过嘌呤霉素和各种浓度的fiau启动,例如,2 μg/ml嘌呤霉素和2 μm更昔洛韦。
106、在一些实施方案中,将异源核酸(例如编码人cd47的核酸或编码puroδtk的核酸)整合到猪全能/多能干细胞(例如扩展潜能干细胞(epscs))的基因组中的安全港基因座处。安全港基因座是基因组中的一个位置,允许插入的转基因表达,而没有影响周围内源基因的风险。在安全港基因座插入异源核酸可以避免不期望的效应,如不稳定表型、基因沉默或意外基因表达。在一些实施方案中,所述安全港基因座选自由rosa26和ph11组成的组。
107、在一些实施方案中,所述安全港基因座是rosa26。rosa26在胚胎以及成体组织中普遍表达。将异源核酸靶向rosa26基因座是创建持续高水平表达异源核酸的经修饰细胞的理想方法。因此,在一些实施方案中,猪全能/多能干细胞(例如扩展潜能干细胞(epscs))包含编码cd47的异源核酸,其中所述异源核酸整合在rosa26处以获得cd47的持续表达。
108、在一些实施方案中,异源核酸(例如编码cd47的核酸)通过重组酶介导的盒式交换整合到猪全能/多能干细胞(例如扩展潜能干细胞(epscs))的基因组中。在一些实施方案中,所述重组酶是cre重组酶。在一些实施方案中,所述异源核酸在异源核酸的5'端和3'端包含lox位点。
109、cre重组酶(cre)是一种由4个亚基组成的343个氨基酸的蛋白质,可识别称为loxp位点的成对特异性34 bp dna序列。它首先创建一个dna环,然后根据loxp位点的方向,切除或倒置环化片段。
110、loxp(x-over p1的基因座 )是噬菌体p1上的一个位点,由34 bp组成。该位点包括一个不对称的8 bp序列(除中间两个碱基外可变),位于两组对称的13 bp序列之间。13 bp序列是回文序列,但8 bp间隔区不是,因此赋予了loxp序列一定的方向性。loxp位点由两个13碱基对的反向重复序列组成,由一个8碱基对的间隔区序列分隔。
111、当基因组中含有loxp位点的细胞表达cre时,loxp位点之间可能发生重组事件。通常,loxp位点成对出现用于遗传操作。cre重组酶蛋白结合到lox位点的第一个和最后一个13 bp区域,形成二聚体。然后该二聚体与另一个lox位点上的二聚体结合形成四聚体。lox位点具有方向性,由四聚体连接的两个位点方向平行。双链dna在cre蛋白的作用下在两个loxp位点都被切割。然后这些链与dna连接酶在快速有效的过程中重新连接。重组的结果取决于loxp位点的方向。在cre介导的重组后,如果两个loxp序列最初方向相同,则loxp侧翼(floxed)的序列将被切除并重组,留下一个loxp序列。两个loxp序列通过形成带有floxed序列的环而被拉近,并被cre重组酶切除。另一方面,如果loxp序列方向相反,则靶序列将被倒置,不发生切除。
112、在一些实施方案中,所述异源核酸包含经修饰的lox位点以提高cre介导的插入或替换的效率。合适的经修饰lox位点包括但不限于:lox2272、lox71和lox66。在一些实施方案中,所述异源核酸(例如编码cd47的核酸)包含在异源核酸5'端的lox71位点和在异源核酸3'端的lox2272位点。在一些实施方案中,所述异源核酸(例如编码cd47的核酸)包含在异源核酸3'端的lox71位点和在异源核酸5'端的lox2272位点。在一些实施方案中,所述异源核酸(例如编码puroδtk的核酸)包含在异源核酸5'端的lox66位点和在异源核酸3'端的lox2272位点。在一些实施方案中,所述异源核酸(例如编码puroδtk的核酸)包含在异源核酸3'端的lox66位点和在异源核酸5'端的lox2272位点。在一些实施方案中,经修饰的lox序列可防止片段在供体和猪全能/多能干细胞基因组之间循环,确保高效率。
113、在一些实施方案中,首先通过crispr/cas将侧翼为同源臂序列(如lox位点)的异源核酸(例如编码选择标志物分子的核酸)整合到猪全能/多能干细胞(例如扩展潜能干细胞(epscs))的基因组中。例如,在一些实施方案中,通过crispr/cas9将puroδtk编码序列以及侧翼连接puroδtk编码序列的lox66和lox2272位点引入猪全能/多能干细胞(例如扩展潜能干细胞(epscs))的基因组中。包含puroδtk编码序列及lox66和lox2272位点的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))随后可用于通过位于染色体上的lox66和第二异源核酸上的lox71之间的重组引入第二异源核酸(例如编码cd47并侧翼连接lox71和lox2272位点的核酸)。
114、在一些实施方案中,可以使用frt位点和来自酿酒酵母的翻转酶(flp)重组酶来整合异源核酸。最小的frt位点序列为34 bp,flp结合到侧翼为8 bp间隔区的两个13-bp臂上,即反向的位点特异性重组(交叉区域)。frt介导的切割发生在顶端链的不对称8bp间隔区前方,以及底链上该序列的后方。存在几种变体frt位点,但重组通常只能发生在两个相同的frt之间,通常不能发生在非同源的frt之间。
115、因此,在一些实施方案中,本文提供了一种包含猪扩展潜能干细胞(epscs)的组合物,所述epscs经遗传修饰以含有tp53中的失活突变,其中所述epscs还经修饰以含有选自ggta1、cmah和b4galnt2组成的组的异种抗原相关基因中的失活突变,以及在与器官生长相关的基因(如ghr)中的失活突变,其中所述失活突变是通过crispr/cas9引入的基因敲除,并且其中所述epscs还包含编码免疫调节蛋白(如cd47)的异源核酸,其中所述异源核酸通过cre重组酶整合到epscs的基因组中。
116、3.经遗传修饰的猪全能/多能干细胞的表征
117、在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))在遗传和表观遗传上是稳定的。例如,在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))维持正常的染色体数目(例如,未经历遗传修饰的猪细胞)。
118、在一些实施方案中,本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))是多能的。在一些实施方案中,所述猪全能/多能干细胞(例如扩展潜能干细胞(epscs))表达指示多能性的标志物基因,包括但不限于:oct4、nanog和sox2。在一些实施方案中,所述猪全能/多能干细胞(例如扩展潜能干细胞(epscs))具有广泛的分化潜能。例如,在一些实施方案中,所述猪全能/多能干细胞(例如扩展潜能干细胞(epscs))能够分化为外胚层、中胚层、内胚层和胚外谱系的细胞和组织。在一些实施方案中,所述猪全能/多能干细胞(例如扩展潜能干细胞(epscs))能够分化为细胞和组织,包括但不限于:有色素组织、横纹肌、平滑肌、软骨组织、内皮和上皮。在一些实施方案中,所述epscs能够形成畸胎瘤。
119、4.猪全能/多能干细胞(例如扩展潜能干细胞(epscs))的来源和培养
120、本发明的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))可以来源于多种来源。在一些实施方案中,猪全能/多能干细胞(例如扩展潜能干细胞(epscs))来源于猪植入前胚胎。从猪植入前胚胎衍生猪全能/多能干细胞(例如扩展潜能干细胞(epscs))和培养猪全能/多能干细胞(例如扩展潜能干细胞(epscs))的方法是本领域已知的。参见,例如,gao等人,nat cell biol. 2019 june 01; 21(6): 687--699,其通过引用以其整体并入本文。在一些实施方案中,所述epscs在epsc培养基中培养,所述培养基包含补充有chir99021、a419、xav939、iwr-1、维生素c、lif和激活蛋白的n2b27基础培养基。
121、iii. 异种移植的方法
122、本技术在一个方面提供了一种异种移植的方法,包括将本文公开的组合物引入有需要的个体。在一些实施方案中,异种移植的方法包括将源自本文公开的组合物的细胞、组织或器官引入有需要的个体。
123、在一些实施方案中,需要异种移植的个体是非人灵长类动物。将完整猪器官移植到非人灵长类动物中已有综述(参见例如ekser等人,transplant immun. 2009 21: 87-92; ekser and cooper. expert rev clin immunol. 2010 mar; 6(2): 219-30;mohiuddin, m. plos med. 2007 mar 27; 4(3): e75; pierson等人,xenotransplantation. 2009 sep-oct; 16(5): 263-80)。为了使猪器官的治疗用途可用于人类医疗,必须首先在非人灵长类动物临床前试验中获得改善的结果,然后在人体临床试验中重复或改进这些结果。本文公开的包含经遗传修饰的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))的组合物可以提供猪供体器官的来源以满足这些要求。根据本发明的器官可以选自以下:心脏、肺、肝脏、肾脏、肠道、脾脏、全血、红细胞、血小板、其他血液制品、视网膜色素上皮(rpe)、皮肤和胰腺。
124、在一些实施方案中,有需要的个体是人类。在一些实施方案中,有需要的个体是患有选自以下组病症的患者:心脏功能障碍、肝脏功能障碍、肾脏功能障碍、肠道功能障碍、脾脏功能障碍、皮肤创伤、胰腺功能障碍、视网膜疾病、血液病症/损失和肺功能障碍。在一个实施方案中,本发明的异种移植器官可以在接受者体内像同种异体移植物一样存活和发挥功能。在其他实施方案中,本文所述的器官可以在获得人类器官之前用作桥接器官。在一个实施方案中,桥接器官可以在接受者体内使用至少3天。在其他实施方案中,桥接器官可以在接受者体内使用以下时间段:至少4、5、6、7、8、9、10、14、21、28天。有关移植程序的详细信息,参见,例如,handbook of animal models in transplantation research, edited byd. v. cramer, l. podesta, l. makowka 1994 crc press,例如,第3、7、8、9和14章;cooper等人“report of the xenotransplantation advisory committee of theinternational society for heart and lung transplantation” december 2000 thejournal of heart and lung transplantation, pp 1125-1165。
125、可以采用多种方法从本公开的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))获得用于异种移植的器官。首先,本公开的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))可以潜在地作为核供体用于生成克隆猪。其次,本公开的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))可以潜在地用于通过囊胚互补和嵌合体测定中的种系传递来生成猪器官。最后,本公开的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))可用于创建类囊胚(人工胚泡对应物),其可以潜在地移植到猪子宫中以潜在地生成猪。此类方法在xuan等人(cells. 2023 aug; 12(16): 2075)中进行了综述,其通过引用以其整体并入本文。
126、在一些实施方案中,本公开的猪全能/多能干细胞(例如扩展潜能干细胞(epscs))用于生成用于异种移植的克隆猪。在一些实施方案中,全能/多能干细胞在通过第iv.1和iv.2节所述的体外评估系统和方法评估后,用于生成克隆动物(如克隆猪)。可以从克隆猪中收获各种器官用于异种移植。
127、生产克隆动物的方法是本领域已知的。转基因猪的生产描述于例如wheeler&walters (2001) theriogenology, 56(8), 1345-1369。使用epscs生产克隆猪的方法描述于us20210230556a1。例如,用于异种移植的克隆猪可以通过将猪epscs注射到胚泡中以生成嵌合体,并在适合发育成猪的条件下培养胚泡来生产。
128、在一些实施方案中,所述异种移植是心脏移植。在一些实施方案中,所述异种移植是肝脏移植。在一些实施方案中,所述移植是皮肤移植。在一些实施方案中,所述异种移植是胰岛移植。在一些实施方案中,所述异种移植是肠道移植。在一些实施方案中,所述异种移植是输血。在一些实施方案中,所述异种移植是视网膜色素上皮(rpe)移植。在一些实施方案中,所述异种移植是肾脏移植。
129、iv. 体外评估的系统和方法
130、本发明还提供了用于评估包含全能干细胞和/或多能干细胞的组合物用于异种移植的适合性的评估系统和方法。在一些实施方案中,所述系统和方法利用选自以下组分的细胞/类器官:内皮细胞、心肌细胞、心脏类器官、肝细胞、肝脏类器官、皮肤角质形成细胞、皮肤类器官、胰腺β细胞、胰岛、肠上皮细胞、肠道类器官、血细胞、视网膜色素上皮(rpe)细胞和肾脏类器官,这些细胞/类器官由全能/多能干细胞分化而来,允许通过绕过生成克隆动物以获得用于评估免疫应答的细胞和/或组织(如内皮细胞)的需求,快速准确地评估免疫应答。
131、1.体外评估系统
132、本发明的一个方面提供了一种用于评估包含全能干细胞和/或多能干细胞的组合物用于异种移植的适合性的体外评估系统,其中所述系统包含由所述全能/多能干细胞分化的细胞和/或类器官。在一些实施方案中,所述细胞和/或类器官选自由以下组成的组:内皮细胞、心肌细胞、心脏类器官、肝细胞、肝脏类器官、皮肤角质形成细胞、皮肤类器官、胰腺β细胞、胰岛、肠上皮细胞、肠道类器官、血细胞、视网膜色素上皮(rpe)细胞和肾脏类器官。在一些实施方案中,所述全能干细胞和/或多能干细胞是epscs。在一些实施方案中,所述全能干细胞和/或多能干细胞是猪全能干细胞和/或多能干细胞。在一些实施方案中,所述全能干细胞和/或多能干细胞是猪epscs。在一些实施方案中,所述系统包含由猪epscs分化的内皮细胞。在一些实施方案中,所述全能干细胞和/或多能干细胞(如猪epscs)如第ii节所述是经遗传修饰的。在一些实施方案中,所述系统包含或还包含由未修饰的全能干细胞和/或多能干细胞(如epscs)分化的细胞和/或类器官的组合物。
133、在一些实施方案中,所述细胞和/或类器官是心肌细胞和/或心脏类器官,并且所述异种移植是心脏移植。在一些实施方案中,所述细胞和/或类器官是肝细胞和/或肝脏类器官,并且所述异种移植是肝脏移植。在一些实施方案中,所述细胞和/或类器官是皮肤角质形成细胞和/或皮肤类器官,并且所述异种移植是皮肤移植。在一些实施方案中,所述细胞和/或类器官是胰腺β细胞和/或胰岛,并且所述异种移植是胰岛移植。在一些实施方案中,所述细胞和/或类器官是肠上皮细胞和/或肠道类器官,并且所述异种移植是肠道移植。在一些实施方案中,所述细胞和/或类器官是血细胞,并且所述异种移植是输血。在一些实施方案中,所述细胞和/或类器官是视网膜色素上皮(rpe)细胞,并且所述异种移植是rpe移植。
134、在一些实施方案中,所述细胞和/或类器官是内皮细胞,并且所述异种移植选自由心脏移植、肝脏移植、皮肤移植、胰岛移植、肠道移植、输血和rpe移植组成的组。内皮细胞在异种移植(如猪到人异种移植)中起着至关重要的作用。它们与人血管系统的相容性对于维持移植物正常功能以及预防凝血、血栓形成和免疫排斥等并发症至关重要。
135、在解剖学上,内皮细胞衬于血管内壁,有助于血管的结构完整性和稳定性。它们还分泌参与凝血调节的各种因子,如血管性血友病因子和组织因子途径抑制物。这些因子有助于维持凝血和抗凝血之间的平衡,以防止不必要的凝块形成。
136、此外,内皮细胞表达mhc抗原、α-gal、neu5gc、sda表位,这些是可以被免疫细胞识别的异种抗原,可能导致免疫排斥。这些抗原的表达可以触发免疫应答并导致移植物破坏(estrada等人,xenotransplantation, 2015.22(3): p. 194-202)。此外,内皮细胞响应损伤或激活而表达粘附分子、趋化因子和共刺激因子。这些分子促进免疫细胞募集、粘附和激活,进一步影响异种移植过程中的免疫应答。
137、猪epscs虽然表达neu5gc和sda表位,但缺乏最关键的α-gal表位,限制了它们用于评估免疫应答。相比之下,内皮细胞具有丰富的聚糖表位表达,并且与免疫反应、血栓形成和组织损伤密切相关,为这些研究提供了一个有前景的平台。
138、因此,在一些实施方案中,本文提供了一种用于评估包含猪epscs的组合物用于异种移植的适合性的体外评估系统,其中所述系统包含由所述猪epscs分化的细胞和/或类器官。
139、2.体外评估方法
140、本发明的一个方面提供了一种评估包含全能干细胞和/或多能干细胞的组合物用于异种移植的适合性的方法,包括评估由所述全能/多能干细胞和/或由所述全能干细胞和/或多能干细胞分化的类器官引起的免疫应答。所述细胞和/或类器官可以包括但不限于内皮细胞、心肌细胞、心脏类器官、肝细胞、肝脏类器官、皮肤角质形成细胞、皮肤类器官、胰腺β细胞、胰岛、肠上皮细胞、肠道类器官、血细胞、视网膜色素上皮(rpe)细胞和肾脏类器官。在一些实施方案中,所述全能/多能干细胞是猪全能/多能干细胞。在一些实施方案中,所述全能/多能干细胞是epscs。在一些实施方案中,所述全能/多能干细胞是猪epscs。在一些实施方案中,所述免疫应答的评估选自由以下组成的组:异种抗原表达评估、补体介导的细胞毒性评估、抗体结合评估和巨噬细胞吞噬作用评估。
141、在一些实施方案中,所述细胞和/或类器官是心肌细胞和/或心脏类器官,并且所述异种移植是心脏移植。在一些实施方案中,所述细胞和/或类器官是肝细胞和/或肝脏类器官,并且所述异种移植是肝脏移植。在一些实施方案中,所述细胞和/或类器官是皮肤角质形成细胞和/或皮肤类器官,并且所述异种移植是皮肤移植。在一些实施方案中,所述细胞和/或类器官是胰腺β细胞和/或胰岛,并且所述异种移植是胰岛移植。在一些实施方案中,所述细胞和/或类器官是肠上皮细胞和/或肠道类器官,并且所述异种移植是肠道移植。在一些实施方案中,所述细胞和/或类器官是血细胞,并且所述异种移植是输血。在一些实施方案中,所述细胞和/或类器官是视网膜色素上皮(rpe)细胞,并且所述异种移植是rpe移植。在一些实施方案中,所述细胞是内皮细胞,并且所述异种移植选自由心脏移植、肝脏移植、皮肤移植、胰岛移植、肠道移植、输血和rpe移植组成的组。
142、在一些实施方案中,所述免疫应答的评估包括异种抗原表达的评估。例如,在一些实施方案中,待评估的异种抗原是α-gal、neu5gc和/或sda。异种抗原的表达可以通过定量聚合酶链反应(rt-qpcr)、微阵列、rna测序、western印迹、免疫荧光、流式细胞术和/或酶联免疫吸附测定(elisa)进行分析。
143、在一些实施方案中,所述免疫应答的评估包括补体介导的细胞毒性的评估。补体介导的细胞毒性是一种免疫应答,其中靶细胞(例如,异种移植物的细胞)通过补体级联在靶细胞表面的激活和募集而被裂解。补体系统被人igg1、igg3和igm抗体有效激活,而被igg2抗体弱激活。评估补体介导的细胞毒性的方法是本领域已知的。例如,pena等人(methods mol biol. 2013 1034: 257-83)描述了补体依赖性细胞毒性交叉配型方法,其通过引用以其整体并入本文。
144、在一些实施方案中,所述免疫应答的评估包括抗体结合的评估。在一些实施方案中,所述免疫应答的评估包括人抗体结合的评估。在一些实施方案中,所述免疫应答的评估包括人igg-555结合的评估。在一些实施方案中,所述免疫应答的评估包括人igm-488结合的评估。评估抗体结合的方法是本领域已知的(参见,例如,yue等人,nat biomed eng,2021. 5(2): p. 134-143,其通过引用以其整体并入本文)。
145、在一些实施方案中,所述免疫应答的评估包括巨噬细胞吞噬作用的评估。在一些实施方案中,所述免疫应答的评估包括人巨噬细胞吞噬作用的评估。巨噬细胞已被证明在异种移植物排斥中的炎症、凝血和吞噬作用中发挥关键作用。巨噬细胞吞噬作用可以通过巨噬细胞吞噬作用测定来评估。例如,在一些实施方案中,通过将人巨噬细胞与靶细胞(例如,猪epsc源性内皮细胞)共培养并确定细胞死亡和/或巨噬细胞吞噬百分比来评估巨噬细胞吞噬作用。
146、在一些实施方案中,所述方法还包括比较经遗传修饰的细胞和/或类器官(如epsc源性内皮细胞)的免疫应答与野生型细胞和/或类器官(例如,由未修饰的epscs分化的内皮细胞)的免疫应答。
147、在一些实施方案中,所述方法还包括将所述全能/多能干细胞分化为所述细胞和/或类器官。本领域普通技术人员应当理解,本文所述的细胞和/或类器官(如内皮细胞)可以使用本领域已知的方法以及以下章节讨论的新方法从全能/多能干细胞(如epscs)衍生。
148、因此,在一些实施方案中,本文提供了一种评估包含猪epscs的组合物用于异种移植的适合性的方法,包括评估由所述猪epscs和/或由所述猪epscs分化的类器官引起的免疫应答。
149、3.分化全能/多能干细胞的方法
150、本发明的一个方面还提供了一种从全能/多能干细胞生成分化细胞/类器官群的方法。在一些实施方案中,本文提供了一种从猪epscs生成内皮细胞群的方法,包括:(a) 将所述猪epscs置于将所述epsc分化为中胚层细胞的第一条件下;和 (b) 将所述中胚层细胞置于将所述中胚层细胞分化为内皮细胞的第二条件下。在本发明的一些实施方案中,从猪epscs生成内皮细胞的过程模拟了猪体内内皮细胞的分化过程。在一些实施方案中,所述epscs是经遗传修饰的。
151、在一些实施方案中,所述全能/多能干细胞是无饲养层细胞的。去除饲养层细胞的方法是本领域已知的(参见,例如,gao等人,nat cell biol, 2019.21(6): p. 687-699,其通过引用以其整体并入本文)。
152、在一些实施方案中,所述第一条件包含中胚层诱导培养基。在一些实施方案中,所述中胚层诱导培养基包含选自下组的一种或多种:chir99021、bmp4、fgf2和激活蛋白 a。在一些实施方案中,将全能/多能干细胞(如猪epscs)置于所述第一条件下约24小时至约96小时。在一些实施方案中,将全能/多能干细胞(如猪epscs)置于所述第一条件下约24小时。在一些实施方案中,将全能/多能干细胞(如猪epscs)置于所述第一条件下约48小时。在一些实施方案中,将全能/多能干细胞(如猪epscs)置于所述第一条件下约72小时。在一些实施方案中,将全能/多能干细胞(如猪epscs)置于所述第一条件下约96小时。在一些实施方案中,将全能/多能干细胞(如猪epscs)置于所述第一条件下直至它们分化(如分化为中胚层细胞)。在一些实施方案中,基于细胞为brachyury+和oct4-来评估中胚层细胞。
153、在一些实施方案中,所述第二条件包含内皮细胞诱导培养基。在一些实施方案中,所述内皮细胞诱导培养基包含选自下组的一种或多种:vegf、毛喉素和bmp4。在一些实施方案中,将细胞(如中胚层细胞)置于所述第二条件下约24小时至约120小时。在一些实施方案中,将细胞(如中胚层细胞)置于所述第二条件下约24小时。在一些实施方案中,将细胞(如中胚层细胞)置于所述第二条件下约48小时。在一些实施方案中,将细胞(如中胚层细胞)置于所述第二条件下约72小时。在一些实施方案中,将细胞(如中胚层细胞)置于所述第二条件下约96小时。在一些实施方案中,将细胞(如中胚层细胞)置于所述第二条件下约120小时。在一些实施方案中,将细胞(如源自猪epscs的中胚层细胞)置于所述第二条件下直至它们进一步分化(如进一步分化为内皮细胞)。在一些实施方案中,基于细胞为血管性血友病因子(vwf)+、cd31+和血管紧张素转化酶(ace/cd143)+来评估内皮细胞。
154、分化状态可以通过细胞形态和标志物基因表达等特征来评估,例如内皮细胞标志物基因,包括鹅卵石样细胞形态、细胞中weibel-palade小体的存在、血管性血友病因子(vwf)表达、pecam1、cdh5、eng和血管紧张素转化酶(ace/cd143),这些可用于鉴定内皮细胞。
155、在一些实施方案中,所述方法还包括在将全能/多能干细胞(如猪epscs)置于所述第一条件之前,在启动培养基中培养全能/多能干细胞(如猪epscs)。在一些实施方案中,所述启动培养基是essential 8培养基。在一些实施方案中,将全能/多能干细胞(如猪epscs)在启动培养基中培养约24小时至约96小时。在一些实施方案中,将全能/多能干细胞(如猪epscs)在启动培养基中培养约24小时。在一些实施方案中,将全能/多能干细胞(如猪epscs)在启动培养基中培养约48小时。在一些实施方案中,将全能/多能干细胞(如猪epscs)在启动培养基中培养约72小时。在一些实施方案中,将全能/多能干细胞(如猪epscs)在启动培养基中培养约96小时。
156、在一些实施方案中,所述方法还包括在步骤(b)之后,(c) 将分化细胞(如内皮细胞)置于将分化细胞(如内皮细胞)分化为生血细胞的第三条件下。在一些实施方案中,所述第三条件包含内皮扩增培养基。在一些实施方案中,将分化细胞(如内皮细胞)置于所述第三条件下约24小时至约96小时。在一些实施方案中,将分化细胞(如内皮细胞)置于所述第三条件下约24小时。在一些实施方案中,将分化细胞(如内皮细胞)置于所述第三条件下约48小时。在一些实施方案中,将分化细胞(如内皮细胞)置于所述第三条件下约72小时。在一些实施方案中,将分化细胞(如内皮细胞)置于所述第三条件下约96小时。
157、在一些实施方案中,从猪epscs生成内皮细胞群的方法包括在启动培养基中培养epscs,将猪epscs置于将epsc分化为中胚层细胞的第一条件下,将中胚层细胞置于将中胚层细胞分化为内皮细胞的第二条件下,以及将内皮细胞置于将内皮细胞分化为生血细胞的第三条件下。
158、在一些实施方案中,从猪epscs生成内皮细胞群的方法包括在essential 8培养基中培养epscs;在包含选自下组的一种或多种的中胚层诱导培养基中培养猪epscs以将epsc分化为中胚层细胞:chir99021、bmp4、fgf2和激活蛋白a;在包含选自下组的一种或多种的内皮细胞诱导培养基中培养中胚层细胞以将中胚层细胞分化为内皮细胞:vegf、毛喉素和bmp4;在内皮扩增培养基中培养内皮细胞以将内皮细胞分化为生血细胞。
159、在一些实施方案中,从猪epscs生成内皮细胞群的方法包括在essential 8培养基中培养epscs约24小时至约96小时;在包含选自下组的一种或多种的中胚层诱导培养基中培养猪epscs约24小时至约96小时以将epsc分化为中胚层细胞:chir99021、bmp4、fgf2和激活蛋白a;在包含选自下组的一种或多种的内皮细胞诱导培养基中培养中胚层细胞约24小时至约120小时以将中胚层细胞分化为内皮细胞:vegf、毛喉素和bmp4;在内皮扩增培养基中培养内皮细胞约24小时至约96小时以将内皮细胞分化为生血细胞。
160、在一些实施方案中,通过本文公开的方法获得的分化细胞(如内皮细胞)可以经历多次传代和冻融循环,同时保持其完整性而无明显差异。在一些实施方案中,分化细胞(如内皮细胞)可以经历2次传代而无明显差异。在一些实施方案中,分化细胞(如内皮细胞)可以经历3次传代而无明显差异。在一些实施方案中,分化细胞(如内皮细胞)可以经历4次传代而无明显差异。在一些实施方案中,分化细胞(如内皮细胞)可以经历5次传代而无明显差异。在一些实施方案中,分化细胞(如内皮细胞)可以经历6次传代而无明显差异。在一些实施方案中,分化细胞(如内皮细胞)可以经历7次传代而无明显差异。在一些实施方案中,分化细胞(如内皮细胞)可以经历8次传代而无明显差异。然而,延长的传代次数可能导致分化细胞(如内皮细胞)增殖能力下降。在一些实施方案中,分化细胞(如内皮细胞)在后续使用前经历的传代次数不超过20次。在一些实施方案中,分化细胞(如内皮细胞)在后续使用前经历的传代次数不超过15次。在一些实施方案中,分化细胞(如内皮细胞)在后续使用前经历的传代次数不超过10次。
161、示例性实施方案
162、实施方案1:一种包含猪全能/多能干细胞的组合物,其中所述猪全能/多能干细胞经遗传修饰以含有tp53中的失活突变。
163、实施方案2:根据实施方案1所述的组合物,其中所述猪全能/多能干细胞还经修饰以含有异种抗原相关基因中的失活突变。
164、实施方案3:一种包含猪全能/多能干细胞的组合物,其中所述猪全能/多能干细胞经遗传修饰以含有异种抗原相关基因中的失活突变。
165、实施方案4:根据实施方案2或3所述的组合物,其中所述异种抗原相关基因选自ggta1、cmah和b4galnt2组成的组。
166、实施方案5:根据实施方案2-4中任一项所述的组合物,其中所述猪全能/多能干细胞含有ggta1中的失活突变。
167、实施方案6:根据实施方案2-5中任一项所述的组合物,其中所述猪全能/多能干细胞含有cmah中的失活突变。
168、实施方案7:根据实施方案2-6中任一项所述的组合物,其中所述猪全能/多能干细胞含有b4galnt2中的失活突变。
169、实施方案8:根据实施方案1-7中任一项所述的组合物,其中所述猪全能/多能干细胞还含有与器官生长相关的基因中的失活突变。
170、实施方案9:根据实施方案8所述的组合物,其中所述与器官生长相关的基因是ghr。
171、实施方案10:根据实施方案1-9中任一项所述的组合物,其中所述失活突变是基因敲除。
172、实施方案11:根据实施方案10所述的组合物,其中所述失活突变通过基因编辑引入。
173、实施方案12:根据实施方案1-11中任一项所述的组合物,其中所述猪全能/多能干细胞还包含异源核酸。
174、实施方案13:根据实施方案12所述的组合物,其中所述异源核酸编码免疫调节蛋白。
175、实施方案14:根据实施方案13所述的组合物,其中所述免疫调节蛋白是cd47。
176、实施方案15:根据实施方案12-14中任一项所述的组合物,其中所述异源核酸整合到所述全能/多能干细胞的基因组中安全港基因座处。
177、实施方案16:根据实施方案15所述的组合物,其中所述安全港基因座是rosa26。
178、实施方案17:根据实施方案15或16所述的组合物,其中所述异源核酸通过重组酶整合到所述全能/多能干细胞的基因组中。
179、实施方案18:根据实施方案17所述的组合物,其中所述重组酶是cre重组酶。
180、实施方案19:根据实施方案12-18中任一项所述的组合物,其中所述异源核酸还包含在所述异源核酸5'端的lox71位点和在所述异源核酸3'端的lox2272位点,或者所述异源核酸还包含在所述异源核酸3'端的lox71位点和在所述异源核酸5'端的lox2272位点。
181、实施方案20:根据实施方案1-19中任一项所述的组合物,其中所述猪全能/多能干细胞在遗传和表观遗传上是稳定的。
182、实施方案21:根据实施方案1-20中任一项所述的组合物,其中所述猪全能/多能干细胞是多能的。
183、实施方案22:根据实施方案1-21中任一项所述的组合物,其中所述猪全能/多能干细胞具有广泛的分化潜能。
184、实施方案23:根据实施方案1-22中任一项所述的组合物,其中所述猪全能/多能干细胞是扩展潜能干细胞(epscs)。
185、实施方案24:一种异种移植的方法,包括将实施方案1-23中任一项所述的组合物引入有需要的个体。
186、实施方案25:根据实施方案24所述的方法,其中所述个体是人类。
187、实施方案26:一种用于评估包含全能/多能干细胞的组合物用于异种移植的适合性的体外评估系统,其中所述系统包含由所述全能/多能干细胞分化的细胞和/或类器官。
188、实施方案27:根据实施方案26所述的体外评估系统,其中所述细胞和/或类器官选自由以下组成的组:内皮细胞、心肌细胞、心脏类器官、肝细胞、肝脏类器官、皮肤角质形成细胞、皮肤类器官、胰腺β细胞、胰岛、肠上皮细胞、肠道类器官、血细胞、视网膜色素上皮(rpe)细胞和肾脏类器官。
189、实施方案28:根据实施方案26或27所述的体外评估系统,其中所述全能/多能干细胞是经遗传修饰的。
190、实施方案29:根据实施方案26-28中任一项所述的体外评估系统,其中所述包含全能/多能干细胞的组合物是根据实施方案1-23中任一项所述的组合物。
191、实施方案30:根据实施方案26-29中任一项所述的体外评估系统,其中所述全能/多能干细胞是未经修饰的。
192、实施方案31:根据实施方案26-30中任一项所述的体外评估系统,其中所述全能/多能干细胞是epscs。
193、实施方案32:根据实施方案26-30中任一项所述的体外评估系统,其中所述全能/多能干细胞是猪全能/多能干细胞。
194、实施方案33:根据实施方案26-32中任一项所述的体外评估系统,其中所述全能/多能干细胞是猪epscs。
195、实施方案34:一种评估包含全能/多能干细胞的组合物用于异种移植的适合性的方法,包括评估由所述全能/多能干细胞和/或由所述全能/多能干细胞分化的类器官引起的免疫应答。
196、实施方案35:根据实施方案34所述的方法,其中所述细胞和/或类器官选自由以下组成的组:内皮细胞、心肌细胞、心脏类器官、肝细胞、肝脏类器官、皮肤角质形成细胞、皮肤类器官、胰腺β细胞、胰岛、肠上皮细胞、肠道类器官、血细胞、视网膜色素上皮(rpe)细胞和肾脏类器官。
197、实施方案36:根据实施方案26-33中任一项所述的体外评估系统或根据实施方案34或35所述的方法,其中所述包含全能/多能干细胞的组合物用于产生用于异种移植的克隆动物。
198、实施方案37:根据实施方案26-33中任一项所述的体外评估系统或根据实施方案34或35所述的方法,其中所述细胞和/或类器官是心肌细胞和/或心脏类器官,并且所述异种移植是心脏移植。
199、实施方案38:根据实施方案26-33中任一项所述的体外评估系统或根据实施方案34或35所述的方法,其中所述细胞和/或类器官是肝细胞和/或肝脏类器官,并且所述异种移植是肝脏移植。
200、实施方案39:根据实施方案26-33中任一项所述的体外评估系统或根据实施方案34或35所述的方法,其中所述细胞和/或类器官是皮肤角质形成细胞和/或皮肤类器官,并且所述异种移植是皮肤移植。
201、实施方案40:根据实施方案26-33中任一项所述的体外评估系统或根据实施方案34或35所述的方法,其中所述细胞和/或类器官是胰腺β细胞和/或胰岛,并且所述异种移植是胰岛移植。
202、实施方案41:根据实施方案26-33中任一项所述的体外评估系统或根据实施方案34或35所述的方法,其中所述细胞和/或类器官是肠上皮细胞和/或肠道类器官,并且所述异种移植是肠道移植。
203、实施方案42:根据实施方案26-33中任一项所述的体外评估系统或根据实施方案34或35所述的方法,其中所述细胞和/或类器官是血细胞,并且所述异种移植是输血。
204、实施方案43:根据实施方案26-33中任一项所述的体外评估系统或根据实施方案34或35所述的方法,其中所述细胞和/或类器官是视网膜色素上皮(rpe)细胞,并且所述异种移植是rpe移植。
205、实施方案44:根据实施方案26-33中任一项所述的体外评估系统或根据实施方案34或35所述的方法,其中所述细胞和/或类器官是肾脏类器官,并且所述异种移植是肾脏移植。
206、实施方案45:根据实施方案26-33中任一项所述的体外评估系统或根据实施方案34或35所述的方法,其中所述细胞是内皮细胞,并且所述异种移植选自由心脏移植、肝脏移植、皮肤移植、胰岛移植、肠道移植、输血和rpe移植组成的组。
207、实施方案46:根据实施方案34-45中任一项所述的方法,其中所述全能/多能干细胞是猪epscs。
208、实施方案47:根据实施方案34-46中任一项所述的方法,还包括将所述全能/多能干细胞分化为所述细胞和/或类器官。
209、实施方案48:根据实施方案47所述的方法,包括将所述猪epscs分化为所述内皮细胞。
210、实施方案49:根据实施方案34-48中任一项所述的方法,其中所述全能/多能干细胞是经遗传修饰的。
211、实施方案50:根据实施方案49所述的方法,其中所述包含经遗传修饰的全能/多能干细胞的组合物是根据实施方案1-23中任一项所述的组合物。
212、实施方案51:根据实施方案34-50中任一项所述的方法,其中所述免疫应答的评估选自由以下组成的组:异种抗原表达评估、补体介导的细胞毒性评估、抗体结合评估和巨噬细胞吞噬作用评估。
213、实施方案52:根据实施方案51所述的方法,其中所述免疫应答的评估包括人抗体结合的评估。
214、实施方案53:根据实施方案51或52所述的方法,其中所述免疫应答的评估包括人巨噬细胞吞噬作用的评估。
215、实施方案54:根据实施方案49-53中任一项所述的方法,还包括将包含由经遗传修饰的全能/多能干细胞分化的细胞和/或类器官的组合物的异种抗原活性与包含由未修饰的全能/多能干细胞分化的细胞和/或类器官的组合物进行比较。
216、实施方案55:一种从猪扩展潜能干细胞(epscs)生成内皮细胞群的方法,包括:(a)将所述猪epscs置于将所述epsc分化为中胚层细胞的第一条件下;和 (b) 将所述中胚层细胞置于将所述中胚层细胞分化为内皮细胞的第二条件下。
217、实施方案56:根据实施方案55所述的方法,其中所述epscs是经遗传修饰的。
218、实施方案57:根据实施方案55或56所述的方法,还包括 (c) 将所述内皮细胞置于将所述内皮细胞分化为生血细胞的第三条件下。
219、实施方案58:根据实施方案55-57中任一项所述的方法,还包括在将所述猪epscs置于所述第一条件之前,在启动培养基中培养所述epscs。
220、实施方案59:根据实施方案55-58中任一项所述的方法,其中所述第一条件包含中胚层诱导培养基。
221、实施方案60:根据实施方案55-59中任一项所述的方法,其中所述第二条件包含内皮细胞诱导培养基。
222、实施例实施例1:方法
223、1.源自植入前胚胎的猪epscs
224、以下实验中采用了猪epsc pk7细胞系(gao等人,nat cell biol, 2019.21(6):p. 687-699)。在收获猪胚胎前至少24小时准备snl(76/7)饲养层细胞。从当地屠宰场获取猪子宫,并在温控容器中运送到实验室。使用30 ml注射器和emcare冲洗液(icpbioreproduction,ecpvà-100)从猪子宫中冲洗出胚胎,并在解剖显微镜下手动收集猪胚胎,然后转移到饲养层板上,并在补充有10 μm y-27632(mce, hy-10071)的pepsc培养基中培养。将板在37℃、5% co2下孵育,不扰动,直至胚胎附着。在接种胚胎约48小时后,进行半量换液以尽量减少对胚胎的扰动。在整个过程中监测培养孔中的生长物。大约在第5至7天,观察到第一批生长物,大约在第12-14天,观察到直径约为100-200 μm的集落。然后挑选集落并转移到新的饲养层板上,称为p0。
225、pk7猪epscs根据已发表的方案稍作修改在snl(76/7)饲养层细胞上培养。简言之,epsc培养基由n2b27基础培养基组成,并补充有以下成分:0.2 μm chir99021(tocris,目录号4423)、0.02 μm a419(tocris,3914)、2.0 μm xav939(sigma,x3004)、1.0 μm iwr-1(tocris,3532)、65.0 μg/ml维生素c(sigma,49752-100g)、10.0 ng/ml lif(干细胞研究所,剑桥大学)和20.0 ng/ml 激活蛋白(干细胞研究所)。每3至5天对细胞进行传代,典型的传代比例为1:10至1:20。
226、2.从猪epscs衍生内皮细胞
227、为了启动猪内皮细胞的分化,收获5000个无饲养层细胞的猪epscs,并置于1%matrigel包被的12孔板上(matrigel,corning,356231)。饲养层细胞的去除在下面的“猪epsc饲养层去除”部分中有更详细的描述。随后,将猪epscs在essential 8培养基(gibco,a1517001)中启动48小时。启动阶段之后,细胞转变为“植入后”样阶段,称为第0天。
228、将启动后的猪epscs通过暴露于中胚层诱导培养基(stemcell technologies,05220)中48小时而不扰动,定向分化为中胚层。随后,在第2天,通过使用内皮细胞诱导培养基(stemcell technologies,08005)进一步引导细胞向内皮谱系分化,维持额外4天,每隔一天更换一次培养基。
229、到第6天,细胞已有效地定向于内皮谱系,使其适合用于继代培养或更广泛的分析。在此期间,通过流式细胞术评估其cd31阳性率,中位cd31+率约为73.3%。这些内皮细胞与培养物中其他杂细胞类型共存,被鉴定为第0代(p0),并可使用内皮扩增培养基(stemcell technologies,08007)进一步扩增。值得注意的是,通过该方案产生的内皮细胞可直接用于免疫应答评估。此外,这些细胞可以经历多次传代和冻融循环,在传代至第8代时保持其完整性而无明显差异。当细胞达到完全汇合时,可以以1:3的传代比例将其传代到matrigel包被的板上。然而,延长的传代次数可能导致其增殖能力下降。
230、3.用于内皮分化的猪epsc饲养层去除
231、饲养层细胞的去除遵循已建立的猪epsc传代方案,稍作修改,如gao等人先前详述(nat cell biol, 2019.21(6): p. 687-699)。该程序对于分离纯的猪epscs至关重要,并依赖于使用解离试剂(如edta或relesr(stemcell technologies,100-0483))时观察到的差异脱附特性。
232、当纯猪epscs达到70-90%汇合时进行收集。首先,用dpbs冲洗细胞,然后加入0.5mm edta并在37℃下孵育7至10分钟。或者,可以加入relesr,然后孵育5至7分钟。随后,可以在显微镜下确认epsc集落从培养板上的脱附。轻轻摇动和轻拍板底有助于脱附过程。
233、为了进一步促进脱附,同时中和解离过程,使用p1000移液器小心地逐滴加入等体积的m10培养基。上清液中可能存在一些残留的饲养层细胞;然而,这种存在不会对整体分化过程产生负面影响。
234、将含有epsc集落的上清液收集到15ml管中,并在室温下以200g离心2分钟。离心后,将所得沉淀重悬于培养基中,直至后续实验。
235、4.人巨噬细胞培养
236、吞噬作用测定中使用的巨噬细胞来源于thp1细胞,由香港大学rio sugimura博士慷慨提供。thp1细胞维持遵循atcc建议(https://www.atcc.org/products/tib-202)。细胞在含10%热灭活fbs、200 g/l葡萄糖(gibco,cat:a24940-01)、1 mm丙酮酸钠(gibco,cat:11360070)和55 μm 2-巯基乙醇(gibco,cat:21985023)的rpmi基础培养基(gibco,cat:22400-71)中培养。接种密度为2至5×10⁵/ml,每2至3天更换一次培养基。通常在细胞达到1至2×106/ml时进行传代,分拆比例为1:4至1:6。通常在传代后3至5天内达到汇合。细胞维持在5% co2和37℃下。
237、当thp1达到对数生长期时,进行从thp1到巨噬细胞的分化。向thp1培养基中加入150 nm pma,持续24小时。巨噬细胞状态的标志是从悬浮状态转变为贴壁状态。这些贴壁的巨噬细胞可以通过在thp1培养基(不含pma)中加入20 ng/ml ifn-γ和10 pg/ml lps处理2天,极化为促炎性m1亚型。一旦极化,细胞即可用于吞噬作用测定。
238、5.猪epscs的基因工程
239、在猪pk7 epscs中进行了靶向(ggta1、cmah、b4galnt2和ghr)的crispr/cas9介导的基因敲除。设计了两组sgrna以产生带型偏移,从而干扰基因功能。设计基因分型引物以扩增靶向区域,并通过琼脂糖凝胶电泳检测野生型和突变型pk7 epscs之间的带型偏移。从ensembl数据库(www.ensembl.org)下载基因组序列,并将基因组中的目标靶向区域上传至crispor(http://crispor.tefor.net/)以选择具有高特异性和低脱靶效应的sgrna。
240、用于在猪rosa26基因座插入外源基因的敲入向导rna和同源臂(ha)序列设计由gao等人详述(nat cell biol, 2019.21(6): p. 687-699)。使用5'和3'连接pcr引物检测成功整合。
241、向导rna通过synthego订购和合成(https://www.synthego.com/)。基因分型引物从idt订购。向导rna序列和基因分型引物序列列于表e1和e2中。
242、表e1. 向导rna序列
243、
244、表e2. 基因分型引物序列
245、
246、6.电穿孔
247、在电穿孔前三个或四个小时,将猪epscs更换为含10% fbs的猪epsc培养基。在10μl neon转染系统(invitrogen, mpk1025)中使用大约1至2×10⁵个猪epscs。用tryple(gibco, 12604021)在37℃下消化猪epscs 5分钟,然后轻轻吹打以解离细胞。然后将猪epsc/饲养层混合物通过40μm细胞过滤器,以去除大部分饲养层细胞并获得单个epsc悬浮液。在重悬缓冲液r(invitrogen, mpk1025)中计数猪epsc细胞数,密度为2-4×10⁷。将5μl含有1-2×10⁵个epscs的细胞在重悬缓冲液r中转移到1.5ml管中,该管中已含有另一7μldna(在重悬缓冲液r中),总体积为12μl,用于一次电穿孔。对于敲除实验,dna混合物含有400ng cas9蛋白(thermo, a36498)、两组1.2 pmol sgrna(由synthego合成的sgrna)。对于敲入实验,dna混合物含有200 ng cas9蛋白、1.2 pmol sgrna和1.5-3μg供体质粒。cas9蛋白、sgrna和供体质粒的总体积小于1μl。对于cre介导的盒式交换,使用1μg cre质粒和500ng-1μg供体dna。用1200 v、20 ms、2个脉冲对猪epscs进行电穿孔,之后将电穿孔的epscs接种在用含10μm y27632(mce, hy-10071)的10%fbs猪epsc培养基预热的两个饲养层孔中,第二天更换为正常的猪epsc培养基。大约第10天出现单个电穿孔猪epsc衍生的集落。
248、7.基因分型
249、电穿孔一周后,当多个集落出现时,收集一个孔的细胞用于基因组dna提取。使用野生型基因组dna作为对照。通过pcr扩增来自电穿孔猪epsc衍生集落和对照的dna样品,然后进行凝胶电泳,以分析电穿孔猪epsc样品与野生型对照之间的条带大小,从而评估总体基因编辑效率。对于使用两个sgrna的敲除实验,预期有两条带,上部条带代表野生型条带,下部条带代表敲除条带。敲除条带的亮度可以指示敲除效率。对于敲入实验,使用来自电穿孔猪epsc的dna测试各种连接pcr条件,并使用野生型基因组dna作为对照。正确的条带大小表示外源盒的成功整合。
250、8.集落挑选和sanger测序
251、根据批量基因分型结果,大约在第12天,当单个epsc集落肉眼可见时进行挑选。将挑选的单个猪epsc集落在含10μm y27632的tryple中于37℃消化3分钟。一半集落直接裂解用于基因分型pcr扩增。另一半进一步培养和扩增。通过sanger测序进一步验证基因组编辑结果。
252、9.用于rosa26靶向的rmce载体构建
253、外源盒侧翼为lox66(5')和lox2272(3'),并包含由cag启动子驱动的purοδtk(cag-puroδtk)。猪rosa26 5'和3'同源臂先前已克隆到prosa26-ef1a-h2b-mcherry载体中。将ef1a-h2b-mcherry片段替换为侧翼为lox66和lox2272盒的cag-puroδtk,然后用于靶向。prosa26-ef1a-h2b-mcherry载体在gao等人(nat cell biol, 2019.21(6): p. 687-699)中有详细描述。
254、10.在猪rosa26基因座通过cre介导的盒式交换整合人cd47
255、从4tg质粒(由björn petersen博士慷慨分享)中pcr扩增出带有cag启动子和polya信号的人cd47 cdna。为了允许cre介导的盒式交换,在pcr引物中包含了带有lox序列的34bp突出端。具体来说,正向引物设计为包含以下lox71序列,从5'到3':ataacttcgtataatgtatgctatacgaacggtaccagatatacgcgttgatctcc(seq id no:22)。反向引物设计为包含以下lox2272序列,从5'到3':ataacttcgtataggatactttatacgaagttatgctagctgaggatcgatacgac(seq id no:23)。通过凝胶电泳进一步分析pcr扩增的人cd47交换盒,并通过sanger测序进一步确认。将扩增的pcr产物进一步通过离心柱纯化用于靶向(tiangen,4992196)。
256、11.基因工程细胞的药物筛选
257、为了富集rmce主细胞系,使用2μg/ml嘌呤霉素(invivogen,ant-pr-1)进行正选择。对于在rosa26基因座整合人cd47期间的负选择,使用2μm更昔洛韦(mce,hy-13637)。电穿孔后维持药物暴露2天,以富集正确靶向的细胞。
258、12.人抗体结合测定
259、将混合的正常人男性ab血清(innovative research,iser50ml)在56℃水浴中热灭活30分钟,并以1000rpm离心5分钟以去除固体成分。然后将血清在facs缓冲液(0.2%bsa,5mm edta in dpbs)中稀释,并与猪epsc源性内皮细胞在室温下孵育30分钟。用冷hbss冲洗三次后,向细胞中加入稀释的抗人igg-555(thermo fisher,a-21433)和抗人igm-488(thermo fisher,a-21215),在室温下孵育30分钟,然后用dapi进行核染色。对于流式细胞术,使用acea novocyte quanteon和flowjo软件分析细胞;或者,对于成像,在捕获荧光图像前用4% pfa固定细胞。该方案改编自yue等人(nat biomed eng, 2021. 5(2): p. 134-143)。
260、13.补体介导的细胞毒性
261、将热灭活的人血清(稀释50%)与靶细胞在4℃下孵育30分钟。使用不含人血清的对照组来建立背景细胞活力。用冷hbss冲洗三次后,加入在facs缓冲液中以1:5比例稀释的婴儿兔补体(bio-rad,c12ca.1),并在37℃下孵育30分钟。重复洗涤,然后将细胞重悬于100 μl冷的live/dead染色溶液中,该溶液含有1 μg/ml fda + 0.1 μg/ml dapi。
262、然后使用acea novocyte quanteon流式细胞仪分析细胞。基于fda和dapi染色采用四重设门来区分活细胞和死细胞,死细胞定义为fda阴性和dapi阳性。为了计算细胞毒性评分,我们使用了图9d中所示的公式。
263、14.巨噬细胞吞噬作用测定
264、通过用150nm pma处理24小时,然后用10ng/ml lps和25ng/ml ifn-γ处理48小时,实现thp1分化为m1巨噬细胞。随后,用dioc(thermo fisher, l7010)标记靶细胞(猪epsc源性内皮细胞;ped),方法是在每1ml培养基中加入2μl dioc,并在37℃下孵育过夜。dpbs洗涤后,收集标记的细胞,计数,并以106个细胞/1000μl m1培养基的浓度重悬。对于共培养实验,将dioc标记的靶细胞与等量的巨噬细胞(即e:t比为1:1)在37℃下共培养4小时。两个对照组,即仅靶细胞组和仅效应细胞组,接受相同的处理。然后用cd11b-apc-cy7抗体(bd,560914)在冰上避光标记巨噬细胞30分钟,然后用dapi进行活细胞染色。使用aceanovocyte quanteon进行流式细胞术,并使用flowjo软件进行后续分析。
265、实施例2:生成经遗传修饰的猪扩展潜能干细胞(epscs)
266、1.去除猪异种抗原以获得三重敲除epscs(tko-epsc)
267、为了破坏异种抗原表达,如实施例1所述,通过crispr/cas9同时靶向并敲除参与猪体内α-半乳糖基、neu5gc和sda抗原表位合成的ggta1、cmah和b4galnt2。在一次电穿孔中引入三对分别靶向ggta1、cmah和b4galnt2的sgrna,以生成三重敲除(tko)猪epscs(图1a)。单次电穿孔最大限度地减少了多轮遗传修饰的需要,简化了过程并减少了所需时间。
268、具体来说,为了干扰ggta1基因功能,通过两个sgrna靶向外显子7以缺失c端催化结构域。sanger测序分析显示一个454 bp的移码缺失(图1e)。同样,成功靶向cmah的外显子1,导致精确的136 bp移码缺失(图1e)。此外,b4galnt2的外显子3也通过2 bp的移码缺失达到了预期结果(图1e)。图1e中的序列显示在表e3中。
269、表e3. 图1e中的序列
270、
271、如图1c和1f所示,ggta1的基因分型分析显示11%的集落显示纯合敲除带,20%显示杂合敲除带;cmah基因分型显示纯合敲除带率更高,为33%,杂合敲除带为39%;而另一方面,b4galnt2的基因分型显示成功敲除的频率低得多,96%在琼脂糖凝胶图像上显示为杂项、插入缺失或未编辑模式,其中只有4%在sanger测序中显示2bp缺失。实现tko的总效率在总共46个集落中为4%。
272、2.猪ghr去除(qko-epsc)
273、鉴于pk7 epsc细胞系源自德国长白猪,其在完全成熟时可达到最大体重300公斤,因此控制猪异种移植物的过度生长至关重要。已有报道称,人类和猪的ghr突变都不会损害其生殖能力,但会导致器官尺寸变小。因此,基于上述第一轮靶向(tko-epscs),进行了另一轮基因工程以干扰生长激素受体基因ghr,以减小器官尺寸(图1a)。
274、为了破坏猪tko-epscs中ghr基因的功能,设计了两个sgrna靶向外显子7(表e1)。从tko-epscs中挑选的总共16个集落中,有3个集落(19%)显示纯合ko带(图1d和图1f),随后通过sanger测序确认,显示一个110bp的移码缺失(图1e)。
275、因此,使用两轮crispr/cas9靶向成功生成了四重敲除(qko)pk7 epsc细胞系。
276、3.猪rmce主细胞系生成(qko-rmce-epsc)
277、为了实现进一步的修饰,我们基于上述pk7野生型(wt)epscs和qko epscs建立了一个主细胞系。利用cre-loxp系统可以在两个lox位点之间进行高效的盒式交换,为基因修饰提供了一个多功能平台(图1b)。
278、通过重组酶介导的盒式交换(rmce)方法引入特定基因修饰涉及两个连续步骤(图1b)。首先,将含有由lox66和lox2272位点侧翼的cag启动子的puroδtk片段引入rosa26基因座。将puroδtk组装到供体载体质粒或rmce质粒中,该质粒也含有靶向猪rosa26基因座的5'和3'同源臂。通过使用crispr/cas9在敲入位点介导双链断裂以及外源同源修复模板的存在,将供体片段引入靶位点。然后采用嘌呤霉素药物筛选来分选经历了供体片段随机或精确整合的细胞。对单个嘌呤霉素抗性集落进行连接pcr基因分型分析,并通过sanger测序进一步确认。
279、通过分析基因分型结果(图1g)评估了在qko-epscs中构建猪rmce主细胞系的靶向效率。在总共检查的42个集落中,27个集落(64.3%)在5'连接处显示成功整合,24个集落(57.1%)在3'连接处显示成功整合,共有22个集落(52.4%)在5'和3'连接处均显示成功整合。这些结果表明在生成所需rmce主细胞系中具有中到高的位点特异性整合效率。
280、在下一步中,基于qko和wt epscs中的rmce主细胞系,我们通过盒式交换(图1b)成功引入了目标基因(goi),例如各种免疫调节基因,该交换由cre重组酶在两个lox位点方向相同时介导。将goi片段整合到含有两端lox71和lox2272位点的供体片段中。这种修饰的lox序列防止片段在供体和猪基因组之间循环,确保高效率。使用更昔洛韦进行负选择以筛选goi整合细胞系。为了确定用于筛选的最佳更昔洛韦浓度,进行了药物滴定实验,结果显示2 μm更昔洛韦处理2天为有效筛选提供了适宜条件。这种正负药物筛选相结合的方法产生了高靶向效率。
281、为了验证该主细胞系平台的有效性,使用egfp作为goi。在cre重组酶和更昔洛韦筛选促进成功交换后,cag启动子驱动的egfp整合到rosa26基因座,产生可见的绿色,如图2a-2e所示。值得注意的是,靶向效率为100%,因为挑选的两个绿色集落均显示出预期的基因分型和sanger测序结果。扩增egfp-qko-epsc细胞系以促进其未来应用,例如在嵌合体测定中识别供体贡献,在共培养和其他分子实验中追踪供体细胞的位置和身份。图2d中的序列显示在表e4中。
282、表e4. 图2d中的序列
283、
284、4. 人源化基因整合(qko-hcd47-epsc)
285、在建立主epsc细胞平台之后,选择人cd47 cdna作为第一个待整合到qko-epscs中的goi(图1a)。人cd47在传递给巨噬细胞的“别吃我”信号中起着关键作用。在猪到人异种移植的背景下,细胞表面猪cd47的表达阻碍了这种自我耐受信号向人巨噬细胞的有效传递,导致猪异种移植物被吞噬。
286、图3描绘了在qko-epscs中使用rmce在猪rosa26基因座整合人cd47。简言之,人cd47 cdna由cag启动子驱动,该供体片段进一步侧翼为lox71和lox2272。基因分型结果证实了人cd47在rosa26基因座的靶向整合,并通过sanger测序进一步验证。靶向效率确定为92%,12个集落中有11个显示出预期的整合(图1h)。hcd47-qko-epscs在培养中显示出强劲的生长,具有圆顶形集落和高核质比的特征(图4a-4e)。cd47整合也通过sanger测序确认(图4e)。图4e中的序列显示在表e5中。人cd47的免疫荧光染色证实了其在qko-hcd47-epscs中的表达,而在野生型epscs中未观察到表达(图1d)。这一观察结果证实了人cd47基因在qko-hcd47-epscs中的成功整合和表达,从而为猪到人移植领域的未来研究建立了一个有价值的细胞系。
287、表e5. 图4e中的序列
288、
289、实施例3:经遗传修饰的猪epscs的分子表征
290、进行分子表征以研究多重基因修饰,包括敲除异种相关基因(ggta1、cmah、b4galnt2)和在rosa26基因座插入人源化相关基因(人cd47),对epscs的多能性、分化潜能和基因组稳定性的潜在影响。
291、尽管经历了多重基因编辑事件,包括敲除异种相关基因和插入人cd47基因,但经遗传修饰的猪epscs仍保留了其多能性,显示正常的染色体数目,并维持了其发育潜能(图5-6)。
292、实施例4:从猪epscs分化内皮细胞
293、本实施例展示了猪epscs分化为内皮细胞的过程。
294、分化过程涉及三个步骤(图7a和7c)。首先,在essential 8培养基中培养细胞,这模拟了植入后阶段并为分化启动了细胞。接下来,加入中胚层培养基两天,以促进向中胚层谱系的定向。最后,使用内皮细胞诱导培养基生成早期内皮祖细胞。
295、在分化过程中,第7天至第9天,收集内皮细胞进行cd31分析或进一步传代扩增用于下游实验。在内皮培养基诱导一天后,观察到生血内皮细胞聚集体,表明具有造血潜能(图7c)。流式细胞术分析显示,初始批次内皮分化的分化效率约为68%。使用不同cd31抗体的后续分化批次显示出超过90%的效率,与猪永生化内皮细胞ped相似(图7d)。在形态上,猪epsc源性内皮细胞表现出鹅卵石样结构,类似于猪永生化内皮细胞系(图7c)。pca分析显示,ped和epsc源性内皮细胞(wt-endo,q47-endo)的基因表达模式相似,两者均增加了内皮标志物基因的表达,pecam1、cdh5、eng和vwf(图7f),而pef和wt-epsc分布较远,表明转录组差异。这些发现证明了使用优化的三步方案成功将猪epscs分化为内皮细胞。
296、实施例5:猪epsc源性内皮细胞的免疫应答评估
297、本实施例展示了猪epsc源性内皮细胞的免疫应答评估。
298、为了评估α-gal表达,对epsc源性内皮细胞进行了流式细胞术分析。虽然正常的猪epscs表现出极少的α-gal(图8a),但野生型猪epscs源性内皮细胞表现出96.6%的α-gal表达阳性染色(图8b)。相比之下,在ggta1基因被功能性敲除的qko-hcd47内皮细胞中,α-gal表达水平显著降低,仅有2.55%阳性染色。
299、补体介导的细胞毒性是猪到人异种移植中免疫排斥的关键方面,主要由细胞表面α-gal表位的存在触发。为了评估epsc源性内皮细胞对补体介导的细胞毒性的敏感性,我们进行了补体杀伤测定。我们使用qko-hcd47-epsc源性内皮细胞(q47-endo)、野生型内皮细胞(wt-endo)和猪ped细胞系(阳性对照)进行了活/死流式细胞术实验。结果(图9c和9d)表明,与野生型内皮细胞(68.5%)和ped(55%)相比,qko-hcd47-endo表现出显著较低的死亡百分比 (34.1%),表明对epsc源性内皮细胞的遗传修饰赋予了增强的补体介导的细胞毒性的保护。
300、此外,进行了免疫荧光和流式细胞术分析以评估人免疫球蛋白(igg和igm)与epsc源性内皮细胞的结合(图9e和9f)。与补体杀伤测定一致,观察到与野生型内皮细胞相比,q47-endo细胞对人免疫球蛋白的结合能力降低。这一发现表明,对猪epsc细胞进行异种抗原去除和人cd47整合的遗传修饰有效地阻止了人免疫球蛋白的结合,从而降低了抗体介导的免疫排斥风险。
301、为了评估转基因人cd47表达对巨噬细胞吞噬作用的潜在保护效果,进行了体外共培养测定。巨噬细胞对不同细胞类型显示出不同水平的吞噬作用(图9g)。猪ped细胞系对吞噬作用最敏感(46.6%),其次是wt-endo细胞(40.5%)。相比之下,包含敲除ggta1、cmah、b4galnt2和ghr基因以及插入人cd47等修饰的q47-endo细胞对巨噬细胞吞噬作用的敏感性较低(19%)。这些发现表明,人cd47 cdna的整合可能赋予对巨噬细胞吞噬作用的保护。这种保护效果可能归因于异种抗原的下调以及人cd47与其在巨噬细胞上受体之间的相互作用,从而抑制吞噬作用。
302、这些发现显示了epsc源性内皮细胞作为一种用于评估不同遗传修饰策略的免疫应答并最终为开发改进的异种移植策略铺平道路的有价值的工具的潜力和独特性。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com