
重组酿酒酵母菌株及其在生料发酵制备乙醇中的应用的制作方法
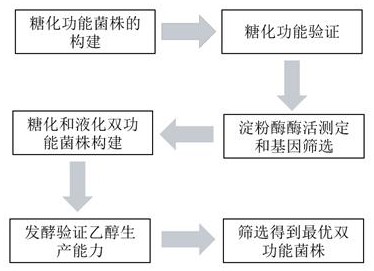
本发明涉及基因工程,尤其涉及重组酿酒酵母菌株及其在生料发酵制备乙醇中的应用。
背景技术:
1、生物燃料乙醇是以生物质原料为底物经微生物发酵产生的可再生能源,在化工、医疗、交通、航天等领域应用广泛。淀粉质原料因来源广、成本低,成为工业化生产乙醇的主要原料。传统工艺需将原料粉碎后高温蒸煮至90-110℃,并添加α-淀粉酶和糖化酶分别进行液化和糖化,再由酿酒酵母发酵。该工艺能耗高、成本高,高温蒸煮和酶制剂费用占总成本的30-40%。
2、生料发酵技术无需高温蒸煮和外源酶制剂,利用微生物自身分泌的淀粉酶系同步完成糖化与发酵,可显著降低能耗与成本。然而,现有生料发酵主要依赖根霉、黑曲霉等丝状真菌,其乙醇产量低(通常仅4-6% v/v)、乙醇耐受性差,难以实现高浓度发酵。酿酒酵母虽乙醇产量高、耐受性强,但野生型不具备生淀粉水解能力。
3、尤其值得注意的是,现有重组酿酒酵母菌株对生淀粉原料的颗粒度较为敏感。实际工业生产中使用的玉米粉颗粒度较大,而现有菌株通常需要使用经过精细研磨的细粉原料才能获得较好的发酵效果,这严重限制了其在工业上的应用。此外,现有重组菌株普遍存在酶活性不足、对生淀粉底物特异性不强、酶分泌效率低以及糖化酶与α-淀粉酶协同作用不佳等问题,导致生料发酵效果不理想。
4、针对上述问题,已有一些技术探索。例如,有研究利用根霉进行生料发酵,但乙醇产量低、耐受性差。另有方法通过向酿酒酵母导入单一α-淀粉酶基因,使其获得液化能力,但因缺乏糖化酶,仍需外源添加。还有研究同时导入α-淀粉酶和糖化酶基因,但所用酶对生淀粉水解效率低,仅能减少部分外源酶用量,无法完全摆脱依赖。亦有文献通过优化启动子和信号肽提高酶表达量,但淀粉酶对生淀粉作用效率仍有限,且未充分优化酶协同作用和工艺条件,难以达到工业化要求的乙醇浓度。
5、综上,现有技术尚缺乏一种能够利用较大颗粒度玉米粉、在不添加外源酶条件下实现高浓度乙醇生料发酵的重组酿酒酵母菌株及相应工艺。
技术实现思路
1、有鉴于此,本发明要解决的技术问题在于提供重组酿酒酵母菌株及其在生料发酵制备乙醇中的应用。
2、本发明提供的重组酿酒酵母菌,其表达糖化酶突变体和/或α-淀粉酶截短体;
3、所述糖化酶突变体来源于扣囊覆膜酵母(
saccharomycopsis fibuligera),其相对于野生型扣囊覆膜酵母糖化酶具有s165g和/或l494i突变;
4、所述α-淀粉酶截短体来源于米根霉(
rhizopus oryzae),其相对于野生型米根霉α-淀粉酶缺失n端第2~25位的氨基酸。
5、本发明中,筛选和改造对生淀粉具有高活性的糖化酶和α-淀粉酶,提高酶对生淀粉致密结晶结构的水解效率;本发明还优化糖化酶和α-淀粉酶的基因整合位点和表达比例,实现两种酶的协同作用,提高糖化效率;通过在酿酒酵母底盘细胞中表达改造后的糖化酶基因和/或α-淀粉酶基因,构建能够高效分泌淀粉水解酶系的重组酿酒酵母菌株,使其能够直接利用未经高温蒸煮的玉米粉类生淀粉原料,特别是大颗粒的原料,在不添加外源酶制剂的条件下,实现同步产酶、液化糖化、乙醇发酵的过程集成,达到高浓度乙醇生产的目标。
6、本发明所述的重组酿酒酵母可以仅表达糖化酶突变体、或仅表达α-淀粉酶截短体、或者共同表达二者。所述糖化酶突变体和α-淀粉酶截短体既可以以游离质粒形式存在于酵母细胞内,也可以整合至酵母基因组中,还可以一个游离一个整合,以满足不同应用场景的需求。游离表达便于快速调试和基因操作,整合表达则保证遗传稳定性,两者各有优势,均在本发明保护范围内。
7、本发明中,糖化酶突变体和/或α-淀粉酶截短体为整合式表达,所述糖化酶突变体的拷贝数为2~4个,所述α-淀粉酶截短体的拷贝数为1~2个。
8、本发明将外源基因整合至酿酒酵母基因组中,相较于游离质粒表达,具有遗传稳定性高的优势,在无选择压力的长期发酵过程中不会发生质粒丢失,更适合工业化生产。本发明通过将目标基因以多拷贝形式整合至基因组的不同位点,实现了基因剂量的增加,进一步提高了酶蛋白的表达量和胞外酶活。
9、本发明研究表明,拷贝数增加后,重组酿酒酵母的胞外糖化酶活力升高,但拷贝数过高,则酵母的代谢负担加重,生长受到抑制,反而导致发酵效率下降。本发明中糖化酶突变体的拷贝数控制在2~4个、α-淀粉酶截短体控制在1~2个,可在保证高酶活的同时避免过度代谢负担,实现最佳发酵性能。
10、整合位点的选择直接影响外源基因的表达水平和稳定性。本发明选择的整合位点均为酿酒酵母基因组中的非必需区域或高拷贝重复区域,整合后不会影响酵母的正常生长和代谢。所述糖化酶突变体整合位点选自x-3、int12、int19、int30、int4、int17中的一个或多个;所述α-淀粉酶截短体的整合位点为x-3。
11、例如,所述糖化酶突变体的拷贝数是一个,则其整合位点为x-3、int12、int19、int30、int4或int17中的任意一个;
12、若所述糖化酶突变体的拷贝数为两个,则可选择其中任意两个位点进行整合,例如:x-3和int12、x-3和int19、x-3和int30、x-3和int4、x-3和int17、int12和int19、int12和int30、int12和int4、int12和int17、int19和int30、int19和int4、int19和int17、int30和int4、int30和int17、int4和int17。
13、若所述糖化酶突变体的拷贝数为三个,则可选择其中任意三个位点进行整合,例如:x-3、int12和int19;x-3、int12和int30;x-3、int12和int4;x-3、int12和int17;x-3、int19和int30;x-3、int19和int4;x-3、int19和int17;x-3、int30和int4;x-3、int30和int17;x-3、int4和int17;int12、int19和int30;int12、int19和int4;int12、int19和int17;int12、int30和int4;int12、int30和int17;int12、int4和int17;int19、int30和int4;int19、int30和int17;int19、int4和int17;int30、int4和int17。
14、若所述糖化酶突变体的拷贝数为四个,则可选择其中任意四个位点进行整合,例如:x-3、int12、int19和int30;x-3、int12、int19和int4;x-3、int12、int19和int17;x-3、int12、int30和int4;x-3、int12、int30和int17;x-3、int12、int4和int17;x-3、int19、int30和int4;x-3、int19、int30和int17;x-3、int19、int4和int17;x-3、int30、int4和int17;int12、int19、int30和int4;int12、int19、int30和int17;int12、int19、int4和int17;int12、int30、int4和int17;int19、int30、int4和int17。
15、若所述糖化酶突变体的拷贝数为五个,则可选择其中任意五个位点进行整合,例如:x-3、int12、int19、int30和int4;x-3、int12、int19、int30和int17;x-3、int12、int19、int4和int17;x-3、int12、int30、int4和int17;x-3、int19、int30、int4和int17;int12、int19、int30、int4和int17。
16、若所述糖化酶突变体的拷贝数为六个,则可选择其中任意六个位点进行整合,例如:x-3、int12、int19、int30、int4和int17。
17、本发明中,α-淀粉酶截短体的拷贝数为1个,或者也可以为2个,其整合位点均为x-3。当α-淀粉酶截短体以单拷贝形式存在时,整合于x-3位点;当为双拷贝时,两个拷贝均整合于x-3位点的不同等位基因位置,或通过串联重复方式整合于同一x-3位点区域,以确保表达稳定性与协同效应。
18、基于上述构建策略,本发明提供了一系列具有明确基因型的重组酿酒酵母菌株,包括但不限于:
19、sfgas165g x-3::adl1 int30:: sfgas165g;
20、sfgas165g x-3::adl1 int12:: sfgas165g int30:: sfgas165g;
21、sfgas165g x-3::adl1 int19::adl1 int30:: sfgas165g;
22、sfgas165g x-3::adl1 int19::adl1 int30::sfgas165g int12:: sfgas165g;
23、sfgas165g x-3::adl1 int12::sfgas165g int30::sfgas165g int4::sfgas165g;
24、sfgas165g x-3::adl1 int12:: sfgas165g int30:: sfgas165g int4:: sfgas165g int17:: sfgas165g。
25、在上述重组酿酒酵母菌株的表达式中,x-3::adl1表示在x-3位点整合了α-淀粉酶截短体(adl1)的表达框。这些具体菌株并非穷举,而是基于本发明技术构思的代表性实例。本领域技术人员可以根据实际需要,通过调整拷贝数和整合位点,构建其他等效菌株。例如,可以将糖化酶突变体替换为l494i突变体,或将adl1替换为其他截短形式的α-淀粉酶,这些变体均落入本发明的保护范围。
26、但实验表明,这些菌株中,基因型为sfgas165g x-3::adl1 int12::sfgas165g int30::sfgas165g int4::sfgas165g的菌株具有最高的发酵效果,其在以未蒸煮的大颗粒玉米粉为底物、不添加外源酶的条件下发酵酒度最高,可达到17.25 v/v,相比对照提升了46.8%,而残糖果糖,乳酸和甘油的含量相比对照分别下降了14.34%,63.88%和6.39%。该菌株不仅表现出优异的生淀粉利用能力,还维持了酿酒酵母固有的高乙醇耐受性和发酵稳定性,在连续批次发酵中未出现明显性能衰减。
27、本发明构建的重组酿酒酵母菌,凡具有良好乙醇发酵性能的酿酒酵母菌株都可以作为底盘菌使用。本领域技术人员可以根据实际生产条件选择合适的底盘菌。但本发明中,其底盘菌为保藏编号为cctcc no:m 20251982的酿酒酵母。酿酒酵母m(cctcc no:m20251982)是一株经过选育的工业酒精酵母,在其中插入糖化酶突变体和/或α-淀粉酶截短体能够获得更高浓度的乙醇。以其作为底盘菌,能够更充分发挥外源淀粉酶系的优势,实现高浓度乙醇发酵。
28、本发明还提供了糖化酶突变体,所述糖化酶突变体来源于扣囊覆膜酵母(
saccharomycopsis fibuligera),其相对于野生型扣囊覆膜酵母糖化酶具有s165g和/或l494i突变。
29、本发明对糖化酶突变体的突变位点进行了筛选,系统评估了多个潜在位点对酶活性、生淀粉结合能力等方面的效果。结果表明,s165g和l494i突变显著增强了糖化酶对生玉米淀粉颗粒的吸附能力,可能与其降低了催化域表面的局部空间位阻、提高了底物可及性有关。
30、作为优选,所述糖化酶突变体氨基酸序列如seq id no.1所示。本领域技术人员可以理解,在该序列的基础上,还可以引入其他不影响活性的保守替换,或进行n端/c端截短、融合标签等修饰,只要保留s165g和/或l494i突变特征,均落入本发明的保护范围。
31、本发明还提供了α-淀粉酶截短体,所述α-淀粉酶截短体来源于米根霉(
rhizopus
oryzae),其相对于野生型米根霉α-淀粉酶缺失n端第2~25位的氨基酸。
32、本发明对α-淀粉酶截短体的截短片段进行了筛选,结果表明,相对于其他阶段片段,缺失n端第2~25位氨基酸的截短体在保持酶催化活性的同时,显著提升了其对生淀粉颗粒的液化效率。
33、作为优选,所述α-淀粉酶截短体氨基酸序列如seq id no.2所示。该序列缺失了野生型米根霉α-淀粉酶n端第2-25位氨基酸,保留了完整的催化结构域和c端结构域。在该序列的基础上,可以进行保守替换、标签融合等修饰,只要保留n端缺失特征,均属于本发明的等同变体。
34、进一步的,本发明还提供了核酸分子,其为如下至少一种:
35、i)、编码如前所述的糖化酶突变体;
36、ii)、编码如前所述的α-淀粉酶截短体。
37、本发明所述的核酸分子可以是脱氧核糖核酸(dna),包括互补dna(cdna)和基因组dna;也可以是核糖核酸(rna),包括信使rna(mrna)和转移rna(trna)。从空间结构上看,该核酸分子可以是双链形式,也可以是单链形式。从拓扑形态上看,该核酸分子可以是线性分子,也可以是环状分子(如质粒、环状rna等)。从存在状态上看,该核酸分子可以单独存在,也可以作为表达盒或基因簇的一部分存在于载体中,还可以整合至宿主细胞的染色体中。上述各种形式和形态的核酸分子,只要其编码的蛋白质具有本发明所述的糖化酶突变体或α-淀粉酶截短体的氨基酸序列特征,均落入本发明的保护范围。
38、由于遗传密码具有简并性,同一氨基酸序列可以由多种不同的核酸序列编码。具体而言,该核酸分子可以是经过密码子优化的序列,即根据宿主细胞(如酿酒酵母、毕赤酵母、大肠杆菌等)的密码子使用偏好性进行优化,以提高翻译效率和蛋白表达量;也可以是来源于天然物种的野生型序列,即直接从扣囊覆膜酵母或米根霉中克隆获得的原始基因序列;还可以是人工合成的简并序列,即在保持氨基酸序列不变的前提下,通过改变部分密码子获得的序列变体。上述各种类型的核酸序列,只要其编码的蛋白质具有s165g和/或l494i突变的糖化酶,或具有n端第2-25位氨基酸缺失的α-淀粉酶,均属于本发明的保护范围。
39、作为优选,编码如前所述的糖化酶突变体的核酸分子的核酸序列如seq id no.3所示,或者如与seq id no.3具有至少85%同一性的序列。
40、作为优选,编码如前所述的α-淀粉酶截短体的核酸分子的核酸序列如seq idno.4所示,或者如与seq id no.4具有至少85%同一性的序列。
41、相对于其他编码序列,seq id no.3和seq id no.4所示序列经过针对酿酒酵母的密码子偏好性优化,显著提升了外源基因在宿主细胞中的转录与翻译效率。
42、此外,本发明所述核酸分子可进一步包含调控元件,如启动子、终止子、信号肽编码序列及选择标记基因等,以实现外源基因在酿酒酵母中的高效、稳定表达。优选地,所述启动子为组成型或诱导型强启动子,例如pgk1、tdh3、adh1或gal1启动子;所述信号肽编码序列为酿酒酵母内源高效分泌信号肽,如α-因子信号肽(mfα1),用于引导表达产物正确分泌至胞外,增强对胞外淀粉底物的作用效率。
43、更进一步的,本发明还提供了重组质粒,所述重组质粒包含如前所述的核酸分子。
44、本发明所述的重组质粒用于如前所述核酸分子的存储、扩增或表达。重组质粒可根据整合方式和需求选择不同的骨架类型,例如可构建为整合型质粒,通过同源重组将目的基因整合到宿主染色体的特定位点;也可构建为游离型质粒,随宿主细胞分裂稳定传代。本领域技术人员可根据实际整合位点和拷贝数的需求,选择合适的质粒骨架和筛选标记,相关常规操作均属于本领域的现有技术,在此不做赘述。
45、可选的,编码糖化酶突变体的核酸分子和编码α-淀粉酶截短体的核酸分子可以位于同一个重组质粒上,也可以分别位于不同的重组质粒上。当两者位于同一个质粒上时,可以通过一次转化操作同时导入两种基因,简化实验流程,且有利于控制两种基因的拷贝数比例。当两者位于不同质粒上时,可以分别独立地进行基因操作和优化,便于灵活调整每种基因的表达强度,也便于分步构建重组菌株。上述两种策略各有优势,均在本发明的保护范围之内。
46、可选的,所述核酸分子可操作地连接于启动子和终止子;所述启动子为adh1启动子,所述终止子为pdc1终止子。可选的,所述重组质粒的骨架载体为puc19。
47、更进一步的,本发明还提供了如前所述重组酿酒酵母菌的构建方法,包括以下步骤:
48、将编码如前所述糖化酶突变体的核酸分子和/或编码如前所述α-淀粉酶截短体的核酸分子分别克隆至表达载体,转化酿酒酵母后,获得所述重组酿酒酵母菌。
49、本发明中,将核酸分子克隆至表达载体的具体操作方式不做限定,可以采用本领域已知的任何克隆方法,例如限制性内切酶酶切连接、gibson组装、无缝克隆等。导入的核酸分子可以是线性化的表达盒(用于整合至基因组),也可以是完整的环状质粒(用于游离表达)。
50、本发明对转化方法也不做具体限定,可采用本领域已知的任何合适方法,例如电转化、liac化学转化、原生质体转化等。本领域技术人员可根据实际需要选择合适的克隆策略和转化策略,以获得所需的表达水平和遗传稳定性。
51、更进一步的,本发明还提供了所述重组酿酒酵母菌在发酵生产乙醇中的应用。
52、更进一步的,本发明还提供了发酵生产乙醇的方法,其包括:使用如前所述重组酿酒酵母菌,以含淀粉的底物,在不添加外源糖化酶和α-淀粉酶的条件下进行发酵。
53、本发明通过改造获得的重组酿酒酵母菌,其利用重组菌株自身的酶系完成淀粉的水解和发酵,实现同步糖化发酵。
54、本发明中,所述含淀粉的底物可以是任何淀粉质原料,包括但不限于玉米、木薯、小麦、高粱、马铃薯等。
55、底物可以经过或不经过蒸煮处理。当使用未经高温蒸煮的生料时,节能效果最为显著。具体实施例中,所述含淀粉的底物为未经高温蒸煮的淀粉质原料。
56、未经高温蒸煮的淀粉质原料是指原料不需加热至90~110℃进行糊化液化,直接以生淀粉形式加入发酵体系。这大大降低了能耗,避免了高温对营养成分的破坏,同时简化了工艺流程。本发明对底物颗粒度不做严格限制,从精细粉末到粗颗粒均可适用,这使得该方法更贴近工业化生产实际。具体实施例中,所述淀粉质原料为玉米粉,所述玉米粉的平均粒径为1.27 mm。
57、在此前的技术中,发酵的底物必须是小颗粒的玉米粉,例如,粒径约为0.1 mm以下的玉米粉。而本技术能够直接利用生淀粉,特别是大颗粒的原料,这是因为本发明构建菌种所分泌的糖化酶突变体对生淀粉颗粒具有更强的吸附和水解能力,α-淀粉酶截短体具有更高的热稳定性和比活,两者协同作用足以高效水解生淀粉的致密结晶结构。
58、本发明菌株由于酶活高、稳定性好,能够有效水解较大颗粒的玉米粉。实验表明,使用粗玉米粉时,发酵酒度仍能达到15.76% v/v。这一特性使得本发明技术更容易实现工业化放大,无需增加原料研磨成本。
59、本发明具有以下有益效果中的至少一种:
60、本发明构建的重组酿酒酵母菌株同时具有高效的淀粉水解能力和乙醇发酵能力,能够直接利用生淀粉原料,无需外源添加糖化酶和α-淀粉酶,显著降低生产成本;
61、通过酶的改造和优化,糖化酶和α-淀粉酶对生淀粉的水解效率显著提高,糖化酶和α-淀粉酶协同作用,实现高效的淀粉糖化;
62、无需高温蒸煮,节省能源消耗,符合节能减碳要求;
63、生料发酵工艺简单,操作方便,乙醇产量高,发酵稳定,适合工业化规模生产。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com