
一种改进型tBE系统及其应用
本发明涉及一种改进型tbe系统及其应用,属于生命科学。
背景技术:
1、基因编辑技术是生命科学领域的一项革命性工具,其核心在于对特定基因组位点进行精准修饰。
2、第一代基因编辑技术主要基于crispr-cas系统(如crispr-cas9),该系统通过单一引导rna(sgrna)将cas9核酸酶引导至靶dna序列,随后cas9蛋白切割dna双链,诱导dna双链断裂(dsb)。细胞主要通过两种修复机制修复dsb:非同源末端连接(nhej)或同源定向修复(hdr)。nhej修复极易导致移码突变或基因敲除,而hdr则可用于精确插入或替换基因片段。尽管crispr-cas9系统在基因敲除、基因敲入等领域得到了广泛应用,但其诱导dsb的机制存在明显局限:dsb可引发细胞凋亡、染色体易位、大面积dna缺失甚至p53通路激活等细胞毒性反应,严重限制了其在基因治疗等临床场景中的安全性。此外,dsb诱导的nhej修复效率虽高,却难以实现靶向的单碱基替换,无法满足许多遗传病(如点突变引起的疾病)的治疗需求。
3、为解决上述问题,研究者开发了第二代基因编辑工具--碱基编辑器(baseeditors, bes)。碱基编辑器由失活的cas蛋白(如dcas9或ncas9)与胞嘧啶脱氨酶(或腺嘌呤脱氨酶)融合而成,无需产生dna双链断裂即可直接实现c→t(胞嘧啶碱基编辑器,cbe)或a→g(腺嘌呤碱基编辑器,abe)的定向转换。这一技术突破显著降低了dsb相关的细胞毒性,在单碱基突变疾病模型构建、遗传病治疗等领域展现出巨大潜力。以胞嘧啶碱基编辑器为例,其作用机制为:脱氨酶将靶向窗口内的胞嘧啶(c)脱氨成为尿嘧啶(u),随后细胞dna修复机制将u视为t进行复制或修复,最终实现c到t的转变。
4、然而,近期多项研究指出碱基编辑器可引发显著的基因组及转录组水平的脱靶突变,严重阻碍了其进一步应用。具体来说,1)脱靶效应显著;胞嘧啶碱基编辑器可引起广泛的基因组及转录组水平的脱靶突变,即在非靶标位置发生c→t转换,严重影响基因编辑的精确性和安全性。2)靶向范围受限;现有的碱基编辑器大多依赖识别特定pam序列(如spcas9识别的ngg pam),导致许多基因组区域无法被有效靶向;3)编辑窗口和产物纯度不理想,部分编辑器的编辑窗口过窄或过宽,且可能产生非预期的核苷酸转换或插入缺失(indels)。
5、为应对上述挑战,国内多个研究团队联合开发了变形式碱基编辑器(transformerbase editor, tbe)。tbe系统利用天然存在的小鼠胞嘧啶脱氨酶活性结构域及其抑制结构域,通过设计双sgrna系统(hsgrna和sgrna),实现了对脱氨酶活性的空间控制,从而显著降低了脱靶效应。具体而言,在非靶标位点,抑制结构域与脱氨酶活性结构域结合,脱氨酶处于失活状态;仅在hsgrna和sgrna都精准识别靶位点时,抑制结构域被协同招募的烟草花叶病毒蛋白酶(tobacco etch virus protease)切割,tbe系统恢复活性。该设计巧妙地从分子机制上解决了脱靶问题,被认为是碱基编辑器安全性的重要突破。
6、然而,tbe系统仍存在若干技术瓶颈,其中最主要的技术瓶颈是:靶向范围受限;具体来说,tbe系统采用双sgrna设计,且hsgrna与sgrna之间的最佳间距为34-91 bp,这导致其可靶向的基因组区域显著减少,尤其在at富集区域或pam序列稀疏的区域,难以获得理想编辑效果;其次,在不同基因位点和序列背景下,tbe系统的编辑效率存在较大差异,部分位点的编辑效率仍无法满足实际应用需求。
7、因此,本领域亟需开发靶向范围更广、编辑效率更高的改进型tbe系统。
技术实现思路
1、为了解决上述技术问题,本发明第一方面提供了一种改进型tbe系统,该系统包含:(a)一种crispr效应蛋白;(b)双融合蛋白系统,其包含效应子融合蛋白组件和招募融合蛋白组件;(c)游离蛋白酶n端片段;(d)双sgrna系统,其包含sgrna和hsgrna及其各自携带的rna适体;
2、其中,所述crispr效应蛋白为spry,所述spry是在野生型spcas9的基础上引入了11个点突变,其他氨基酸残基不变;所述11个点突变为a61r、l1111r、d1135l、s1136w、g1218k、e1219q、n1317r、a1322r、r1333p、r1335q和t1337r。
3、关于“crispr效应蛋白”,本技术采用spry,是在野生型spcas9的基础上引入了11个点突变的变体。
4、关于“双融合蛋白系统”,其包含效应子融合蛋白组件和招募融合蛋白组件;
5、其中,“效应子融合蛋白组件”包含(i)胞嘧啶脱氨酶活性结构域;(ii)胞嘧啶脱氨酶抑制结构域,所述抑制结构域与所述活性结构域通过蛋白酶识别位点相连接,并且所述抑制结构域能够抑制所述活性结构域的脱氨酶活性;和(iii)第一rna适体结合蛋白。
6、其中,“招募融合蛋白组件”包含(a)第二rna适体结合蛋白;和(b)蛋白酶的c端片段。
7、在本技术的一个具体实施方案中,所述胞嘧啶脱氨酶活性结构域为小鼠来源的apobec3胞嘧啶脱氨酶结构域(ma3cda1)。
8、在本技术的一个具体实施方案中,所述胞嘧啶脱氨酶抑制结构域为小鼠来源的脱氧胞苷脱氨酶抑制结构域(ma3dcdi)。
9、在本发明的一个具体实施方案中,所述蛋白酶采用烟草蚀刻病毒(tev)蛋白酶。
10、在本发明的一个具体实施方案中,所述第一rna适体结合蛋白为mcp,所述第二rna适体结合蛋白为n22p。在本发明的另一个具体实施方案中,所述第一rna适体为ms2,所述第二rna适体为boxb。
11、在本技术的一个优选实施方案中,所述效应子融合蛋白组件包含胞嘧啶脱氨酶活性结构域;
12、所述胞嘧啶脱氨酶活性结构域为小鼠来源的apobec3胞嘧啶脱氨酶结构域(ma3cda1)的突变体,其在野生型ma3cda1的基础上引入了组合点突变;
13、引入的组合点突变选自如下组合的任意一种:点突变d41e、n69g、e107r和n133r的组合,点突变d41e、e107r、n133r和d136k的组合、点突变g34r、e107r、n133r和d136k的组合。
14、本技术发明人通过组合增强型氨基酸突变(胞嘧啶脱氨酶结构域的突变体)进一步增强tbe-spry系统的编辑活性。
15、经过大量的筛选和组合,意外发现了如下三个组合突变体:点突变d41e、n69g、e107r和n133r的组合,点突变d41e、e107r、n133r和d136k的组合、点突变g34r、e107r、n133r和d136k的组合。
16、更优选的,引入的组合点突变采用点突变d41e、e107r、n133r和d136k的组合。
17、在本技术的一个优选实施方案中,所述hsgrna或sgrna 的5′端和3′端添加2′-o-甲基或硫代磷酸酯修饰;
18、优选的,所述hsgrna或sgrna 的5′端和3′端的3个核苷酸添加修饰。
19、在本技术的一个优选实施方案中,所述胞嘧啶脱氨酶活性结构域还包含尿嘧啶dna糖苷酶抑制剂(ugi)。
20、本技术第二方面提供了上述的改进型tbe系统的表达构建体。
21、在本技术的一个具体实施方案中,上述的改进型tbe系统的表达构建体用于表达tbe-spry碱基编辑系统,所述表达构建体包含:
22、(1)编码效应子融合蛋白组件的第一多核苷酸,所述效应子融合蛋白组件包含:(1a)胞嘧啶脱氨酶活性结构域;(1b)胞嘧啶脱氨酶抑制结构域,所述抑制结构域与所述活性结构域通过蛋白酶识别位点相连接;和(1c)第一rna适体结合蛋白;
23、(2)编码招募融合蛋白组件的第二多核苷酸,所述招募融合蛋白组件包含:(2a)第二rna适体结合蛋白;和(2b)蛋白酶的c端片段;
24、(3)编码所述蛋白酶的n端片段的第三多核苷酸;
25、(4)编码spry蛋白的第四多核苷酸;
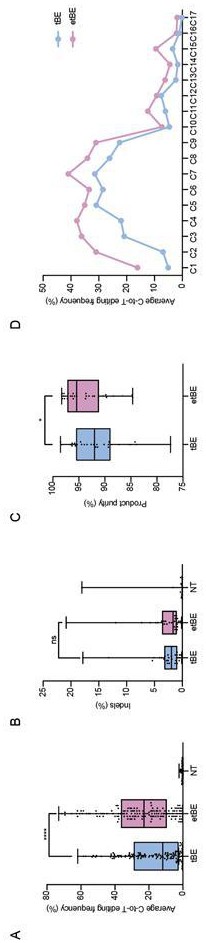
26、(5)编码sgrna的第一表达盒,所述sgrna包含与靶序列互补的指导序列以及与所述第一rna适体结合蛋白相结合的第一rna适体;和
27、(f)编码hsgrna的第二表达盒,所述hsgrna包含与靶序列互补的指导序列以及与所述第二rna适体结合蛋白相结合的第二rna适体。
28、在本技术的一个具体实施方案中,所述第一多核苷酸、第二多核苷酸、第三多核苷酸和第四多核苷酸中的至少两个位于同一载体上。
29、本技术第三方面提供了一种试剂盒,其中,所述试剂盒包含上述系统或者上述的表达构建体,用于递送所述系统或者所述的表达构建体至细胞或受试者的载体、递送试剂和/或药学上可接受的辅料。
30、在本技术的一个优选实施方案中,所述载体选自腺相关病毒载体、慢病毒载体、质粒载体或脂质纳米颗粒。
31、优选的,采用双aav载体系统,所述tbe系统的编码序列被拆分包装于两个aav载体中。
32、本技术第四方面提供了上述系统或上述试剂盒在制备用于基因编辑、疾病模型构建或基因治疗的药物或工具中的用途。
33、在本技术的一个优选实施方案中,所述疾病模型构建包括小鼠疾病模型构建,优选小鼠眼科、胚胎或肝脏疾病模型构建。
34、本技术第五方面提供了一种非疾病治疗目的的基因编辑方法,其中,所述基因编辑方法采用上述系统或上述表达构建体或上述试剂盒。
35、现有技术公开了spry(walton et al., science, 2020)是一种pam识别灵活性显著提高的cas9变体,可识别多种非ngg pam序列。然而,spry是否与tbe系统兼容,以及能否在保持tbe低脱靶特性的前提下拓宽其靶向范围,尚未有研究报道。本技术发明人首次将spry引入tbe系统中,构建了tbe-spry系统,并验证了其在ngg及非ngg pam位点的高效编辑能力。
36、本技术发明人不仅通过替换spry拓宽tbe系统的靶向范围,更为重要的,进一步通过工程化改造胞嘧啶脱氨酶构建etbe-spry系统,显著提升了tbe-spry系统的编辑效率、靶向范围和产物纯度。本发明的改进型tbe系统在真核细胞、小鼠胚胎、眼科及肝脏等模型中均表现出优异性能,为基因编辑工具的开发提供了新策略,在疾病模型构建和基因治疗领域具有广阔应用前景。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com