
一种基于叶绿体超微结构时序分析的黄精病害预警方法
本发明属于农业病虫害监测与预警,具体涉及一种基于叶绿体超微结构时序分析的黄精病害预警方法。
背景技术:
1、黄精是百合科黄精属多年生草本植物,其干燥根茎是我国传统重要中药材。随着黄精人工种植规模的不断扩大,病害问题日益突出,已成为制约黄精产业高质量发展的关键因素之一。黄精在生长过程中常受到炭疽病、叶斑病、根腐病、白绢病等多种真菌病害以及病毒病的侵染。病害不仅导致黄精叶片光合作用受阻、植株生长受抑,还会造成根茎产量和有效药用成分含量的显著下降。因此,建立有效的黄精病害早期预警方法,对于及时采取防控措施、保障黄精产量和品质具有重要意义。
2、目前,植物病害预警与检测主要采用以下几类技术手段:
3、第一类是基于宏观症状的图像识别方法。 该类方法通过采集植物叶片或植株的可见光图像,利用深度学习等人工智能算法识别病害的可见症状。然而,此类方法只能在病害症状明显显现之后才能有效检测,此时病菌已对植株造成实质性损害,错过了最佳的早期干预窗口期。
4、第二类是基于生理生化指标检测的方法。 研究表明,黄精遭受病毒侵染后,叶片防御酶(超氧化物歧化酶sod、过氧化物酶pod、多酚氧化酶ppo、苯丙氨酸解氨酶pal)活性极显著升高,丙二醛(mda)含量显著增加。现有技术通过检测上述生理生化指标的变化来判断植株是否受到病害胁迫。但此类方法需要在病害发生后采集叶片进行破坏性检测,且生理生化指标的显著变化往往滞后于细胞水平的早期损伤。
5、第三类是基于光谱或遥感技术的无损检测方法。 该类方法通过无人机或卫星搭载光谱相机获取植被指数(如ndvi)等信息,实现大范围作物健康状态的快速筛查。但光谱技术反映的是群体水平的宏观信息,难以捕捉到个体植株在细胞水平的早期异常变化。
6、近年来,植物病理学研究发现,病原体侵染会导致寄主植物叶绿体超微结构的显著改变。研究表明,滇黄精遭受病毒侵染后,叶肉细胞叶绿体结构严重受损,部分被膜破损或消失,基质片层松散、膨胀或模糊不清,发生囊泡化甚至解体。质体超微结构的变化已被证实可作为植物在生物胁迫条件下潜在的胁迫标记物。在番茄斑萎病毒侵染番茄的研究中也观察到,叶绿体结构畸变程度随症状加重而逐渐加重,质体小球的数量及体积增加,基粒数量降低。
7、然而,现有技术尚未将叶绿体超微结构的变化规律应用于黄精病害的早期预警。具体而言,存在以下技术缺陷:
8、(1)缺乏定量化的超微结构评估方法。 现有对叶绿体超微结构的观察多停留在定性描述层面(如“被膜破损”“片层松散”),缺乏对叶绿体被膜完整度、基质片层排列有序度、嗜锇颗粒密度等参数的定量化表征方法,难以建立客观、可重复的评估标准。
9、(2)缺乏基于超微结构时序变化的预警模型。 现有研究仅报道了病害发生后叶绿体超微结构的静态特征,尚未揭示病害发展过程中各超微结构参数的时序演变规律,更未利用这种时序规律构建分级预警模型。
10、(3)缺乏不依赖生理生化指标的非破坏性预警手段。 现有生理生化检测方法需要破坏性采样,无法实现连续、动态的监测;而光谱方法虽然无损但灵敏度不足。目前尚无一种能够在不依赖生化指标检测的前提下,仅通过对植物自身细胞结构变化的时序分析来实现病害早期预警的技术方案。
11、针对上述技术问题,本发明提供了一种基于叶绿体超微结构时序分析的黄精病害预警方法。
技术实现思路
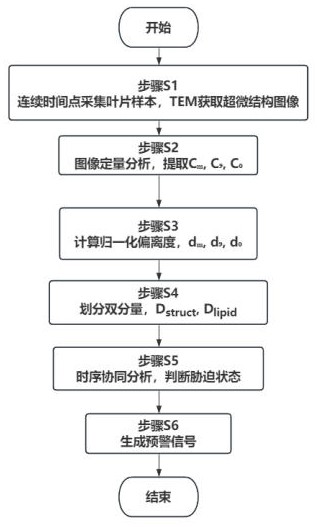
1、为了克服背景技术中存在的问题,本发明提供了一种基于叶绿体超微结构时序分析的黄精病害预警方法,包括以下步骤:
2、s1: 在至少3个连续时间点采集黄精植株的叶片样本,采用透射电子显微镜获取各时间点叶肉细胞叶绿体的超微结构图像;
3、s2: 对各时间点的所述叶绿体超微结构图像进行定量分析,提取以下叶绿体超微结构参数:
4、叶绿体被膜完整度cm:通过叶绿体被膜连续完整边界长度占叶绿体总边界长度的比例量化;
5、基质片层排列有序度c9:通过叶绿体超微结构图像中基质片层排列方向角度的方差σθ²的倒数量化,即;
6、嗜锇颗粒密度c0:通过单位叶绿体横截面积内嗜锇颗粒的数量量化,单位:个/μm²;
7、s3: 分别计算各时间点各参数相对于健康基准值的归一化偏离度:
8、
9、其中,cm0、c90、c00分别为同一黄精品种在健康状态下各参数的基准值;
10、s4: 将所述归一化偏离度划分为结构损伤分量和脂质代谢异常分量:
11、结构损伤分量:
12、脂质代谢异常分量:
13、其中,α、β、γ为权重系数,且α+β+γ=1,α>β>γ;
14、s5: 根据各时间点的dstruct(t)和dlipid(t)进行时序协同分析,判断黄精植株的病害胁迫状态:
15、当dstruct(t)超过第一阈值且dlipid(t)未超过第二阈值,且dstruct(t)在连续至少两个相邻时间间隔内呈单调递增趋势,且dlipid(t)在所述连续至少两个相邻时间间隔内的变化速率小于dstruct(t)的变化速率时,判定为早期潜伏期;
16、当dstruct(t)超过第一阈值且dlipid(t)超过第二阈值,且dlipid(t)在连续至少两个相邻时间间隔内呈单调递增趋势时,判定为胁迫进展期;
17、当dlipid(t)在连续至少两个相邻时间间隔内的变化速率大于dstruct(t)的变化速率,且两者均超过各自阈值时,判定为快速恶化期;
18、其中δt为相邻两个连续时间点之间的时间间隔;
19、s6: 根据所述判定结果生成对应级别的病害预警信号;所述预警信号的生成以叶绿体超微结构图像的定量分析为唯一输入,不以植物生理生化指标检测结果作为预警判断的依据。
20、优选的,所述权重系数α、β、γ满足α>β>γ,所述权重关系基于叶绿体被膜作为叶绿体第一道物理屏障、其完整性丧失直接影响叶绿体功能稳态的生物学原理确定;
21、所述权重系数的具体数值通过以下预先校准步骤确定,所述预先校准步骤独立于权利要求1所述预警信号的生成步骤:
22、在黄精植株健康状态下,采集至少10个植株个体的叶片样本,分别测定各样本在人工诱导不同胁迫程度下的叶绿体被膜完整度cm、基质片层排列有序度c9和嗜锇颗粒密度c0;
23、同时采集相同植株叶片的丙二醛含量和防御酶活性数据,所述防御酶选自超氧化物歧化酶、过氧化物酶、多酚氧化酶和苯丙氨酸解氨酶中的一种或多种;
24、将所述丙二醛含量与防御酶活性数据进行归一化处理后加权求和,得到用于标定的综合评价值;
25、以所述综合评价值为因变量,以cm、c9、c0为自变量进行多元线性回归分析,获得各参数的回归系数;
26、将各参数的回归系数进行归一化处理,分别作为权重系数α、β、γ的取值;
27、所述预先校准步骤中丙二醛含量和防御酶活性数据的采集,仅用于确定权重系数α、β、γ的具体数值,不属于权利要求1所述预警信号生成步骤中的检测步骤。
28、优选的,所述第一阈值为健康黄精植株群体中dstruct的均值加上2倍标准差,所述第二阈值为健康黄精植株群体中dlipid的均值加上2倍标准差;
29、所述健康黄精植株群体指在无病害胁迫条件下生长的、经确认健康的至少10个植株个体;
30、所述叶绿体被膜连续完整边界长度lintact通过以下方法确定:
31、对叶绿体超微结构图像中叶绿体被膜边缘进行像素级追踪,以被膜边缘断裂长度小于50nm为连续判定标准,累计所有连续段的长度作为lintact;叶绿体总边界长度ltotal为被膜边缘总周长;
32、所述基质片层排列方向角度通过以下方法确定:
33、对叶绿体超微结构图像中每条可识别的基质片层进行梯度方向统计,提取各片层的主方向角度θᵢ,计算所有主方向角度的方差σθ²;
34、所述嗜锇颗粒密度通过以下方法确定:
35、在叶绿体横截面积内,对直径≥50nm且电子密度≥150亨斯菲尔德单位的嗜锇颗粒进行计数,以计数结果除以叶绿体横截面积得到c0。
36、优选的,所述健康基准值cm0、c90、c00通过以下方式建立:
37、在黄精植株健康状态下,采集至少10个植株个体的叶片样本,采用与步骤s1和s2相同的方法分别测定各植株个体的叶绿体被膜完整度、基质片层排列有序度和嗜锇颗粒密度;
38、计算各参数在所有健康个体中的算术平均值,作为对应的健康基准值。
39、优选的,所述早期潜伏期对应一级预警,所述胁迫进展期对应二级预警,所述快速恶化期对应三级预警。
40、优选的,在生成病害预警信号后,还包括以下独立于预警信号生成步骤的事后验证步骤,该事后验证步骤用于确认预警信号的准确性:
41、采集黄精植株叶片的丙二醛含量和防御酶活性数据,所述防御酶选自超氧化物歧化酶、过氧化物酶、多酚氧化酶和苯丙氨酸解氨酶中的一种或多种;
42、将所述丙二醛含量和防御酶活性数据与各自对应的健康基线值进行比较,获得验证结果;
43、所述事后验证步骤中的丙二醛含量和防御酶活性检测,仅用于验证已生成的预警信号,不属于权利要求1所述预警信号生成步骤中的检测步骤。
44、一种基于叶绿体超微结构时序分析的黄精病害预警系统,包括:
45、样本制备与图像采集模块,用于在至少3个连续时间点对黄精植株叶片样本进行固定、包埋、超薄切片,并通过透射电子显微镜获取各时间点的叶绿体超微结构图像;
46、图像处理与分析模块,用于对各时间点的所述叶绿体超微结构图像进行定量分析,提取叶绿体被膜完整度cm、基质片层排列有序度c9和嗜锇颗粒密度c0,并分别计算各参数相对于健康基准值的归一化偏离度;
47、时序协同分析模块,用于将所述归一化偏离度划分为结构损伤分量和脂质代谢异常分量,并根据各时间点的dstruct(t)和dlipid(t)的时序变化进行协同分析;
48、预警判断与输出模块,用于根据所述时序协同分析模块的分析结果,判定黄精植株所处的胁迫状态,生成对应级别的病害预警信号并输出,所述预警信号的生成以叶绿体超微结构图像的定量分析为唯一输入,不以植物生理生化指标检测结果作为预警判断的依据。
49、与现有技术相比,本发明具有以下有益效果:
50、1.现有黄精病害预警方法主要依赖丙二醛(mda)含量和防御酶活性等生理生化指标。研究表明,黄精感病后叶片mda含量显著升高,sod、pod、ppo、pal活性极显著升高。但这些指标的变化发生在病害发展的中后期,此时植株已进入应激响应阶段。本发明监测的是叶绿体超微结构的变化——感病黄精叶绿体出现被膜破损、片层松散、囊泡化等超微结构异常——这种亚细胞结构的变化在本发明的实验条件下早于生理生化指标的显著变化。通过连续时间点的时序监测,本发明能够在病害发展的更早阶段发出预警信号。
51、2.现有技术中,基于生理生化指标的预警方法需要对叶片进行破坏性采样,无法实现连续动态监测;基于光谱或图像识别的方法虽然无损,但难以捕捉细胞水平的早期异常。本发明以透射电子显微镜图像中叶绿体超微结构的定量分析为唯一输入,无需进行丙二醛含量检测或防御酶活性检测即可生成预警信号,为黄精病害预警提供了一条独立于现有技术路径的解决方案。
52、3.现有研究对叶绿体超微结构的观察多为定性描述(如"被膜破损""片层松散"),缺乏可量化、可重复的评估标准。本发明分别定义了叶绿体被膜完整度(cm)、基质片层排列有序度(c9)和嗜锇颗粒密度(c0)三个参数的量化方法,并构建了结构损伤分量(dstruct)和脂质代谢异常分量(dlipid)两个独立指标,使超微结构观察从定性判断提升为定量分析。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com