
一种基于根系水力再分配网络的混交林旱季水分共享与抗逆增强方法与流程
本发明涉及生态修复与抗旱造林,具体涉及一种基于根系水力再分配网络的混交林旱季水分共享与抗逆增强方法。
背景技术:
1、干旱半干旱地区的植被恢复与混交林营造工程长期面临旱季水分短缺的严峻挑战。传统抗旱造林技术主要围绕“单株保墒”和“分层吸水”两个方向展开:一方面通过集水、覆膜、保水剂等手段提高单株苗木的水分利用效率;另一方面通过深根型与浅根型树种的深浅混交,使不同树种的根系分布在不同土壤深度,以减少种间水分竞争。
2、然而,上述技术思路存在根本性局限。首先,“单株保墒”技术仅能改善单株苗木的局部水分环境,无法实现群落尺度上的水分再分配;其次,“分层吸水”的深浅混交模式本质上是“错位避开”—让不同树种的根系各自占据不同的土壤空间以规避竞争,而非主动构建植株间的水分共享通道。这种“各自为政”的水分利用模式,在旱季极端干旱条件下仍难以保证混交林群落的整体存活率。
3、近年来,植物生态学领域的研究揭示了自然界中存在的“水力再分配”现象—深根植物可从深层湿润土壤吸收水分,并通过根系释放至浅层干旱土壤,供邻近浅根植物利用。然而,自然混交林中深根与浅根植株的根系呈随机交错分布状态,受物种组成随机性、根系空间分布离散性和根际接触概率低等因素制约,天然形成的根-根物理接触与菌根共生连接极为有限,水力再分配通量极低,无法在旱季干旱胁迫期内为浅根植物提供有效的水分补给。因此,自然水力再分配现象虽在生态学研究中被观察到,但实际通量远不足以抵御季节性干旱造成的群落衰退。将其转化为可工程化应用的造林技术,主要障碍在于:自然水力再分配依赖特定的物种组合和漫长的根系共生演化过程,周期长、不可控、难以复制。
4、现有技术中尚未见有意识地通过人工手段主动构建混交林群落内部跨植株水力再分配网络以实现旱季水分共享与抗逆增强的技术方案。因此,亟需一种能够在造林初期即快速、可控地建立群落内部跨植株定向水分转运通道的工程化方法。
技术实现思路
1、本发明的目的在于提供一种基于根系水力再分配网络的混交林旱季水分共享与抗逆增强方法,通过人工构建稳定跨植株转运的三维根系水力再分配网络,使混交林群落内部在旱季实现从深层储水层向浅层干旱胁迫区目标植株的定向水分共享,从而增强群落的整体抗旱能力。
2、为实现上述发明目的,本发明提供以下技术方案:
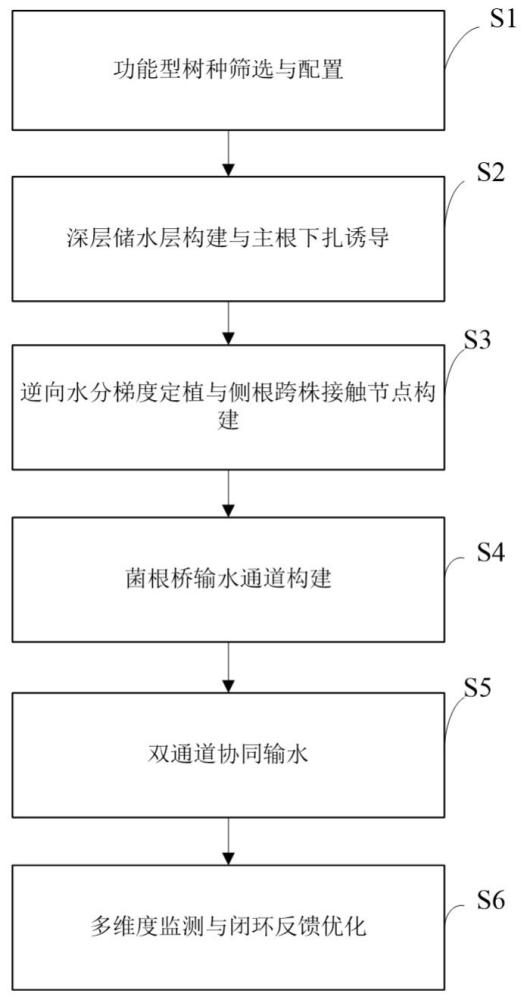
3、一种基于根系水力再分配网络的混交林旱季水分共享与抗逆增强方法,包括以下步骤:
4、s1:功能型树种筛选与配置
5、筛选深根型树种作为深层水源供给单元,筛选浅根型树种作为浅层水分接收单元,按照设计的配置比例进行混交配置。
6、深根型树种(水源供给单元)的选择标准为:成年植株主根可达到地下2 m以下深度,具有较强的深层土壤水分吸收能力和水分向上传输能力,优选红椎(castanopsishystrix)、麻栎(quercus acutissima)、格木(erythrophleum fordii)中的一种或多种。
7、浅根型树种(水分接收单元)的选择标准为:成年植株根系主要分布于地表以下0~60 cm土层,侧根发达、生长迅速,对浅层水分变化敏感,浅层水分匮乏时生长受抑,优选尾巨桉(eucalyptus urophylla × e. grandis)、火力楠(michelia macclurei)、米老排(mytilaria laosensis)、黑木相思(acacia melanoxylon)中的一种或多种。
8、深根型树种与浅根型树种的配置比例为1:1~1:3,配置方式为株间混交或行间混交。
9、s2:深层储水层构建与主根下扎诱导
10、在造林地土壤剖面中构建深层储水层,并同步实施主根垂直下扎诱导,促进深根型植株主根向储水层定向深扎,建立深层水源供给单元的垂直吸水通道。
11、深层储水层的具体构建方式为:先在地表以下80~150 cm深度处铺设阻水层,再于阻水层上方填入保水型基质材料作为储水层主体,储水层厚度为20~50 cm。所述阻水层为黏土阻水层或hdpe防渗膜。对于年降水量≥400 mm的区域,优选黏土阻水层(压实度≥93%),其适度保水、少量透水的特性允许雨季降水缓慢下渗补给储水层,同时维持储水层长期湿润;对于年降水量<400 mm的干旱区,优选hdpe防渗膜(厚度≥0.5 mm),其完全阻隔水分下渗,确保有限灌溉水被高效封存于储水层内不外漏。两种阻水材料的适用场景可根据工程区域降水条件灵活选择,均不脱离本发明技术方案的范围。
12、保水型基质材料选自腐殖质土、草炭土、生物炭中的一种或多种的混合物,并按每立方米基质添加1~3 kg保水剂。所述保水剂为高吸水性树脂,是一种含有大量亲水基团的功能高分子材料,能够吸收自身重量数百倍至上千倍的水分并缓慢释放,在储水层中起到蓄水保墒、延长水分供给周期的作用。优选农林专用颗粒状高吸水性树脂,颗粒粒径2~5mm,与基质均匀翻拌混合后填充至储水层。
13、储水层构建后,仅向深层储水层位置进行局部补水(例如通过深层注水管或滴灌管直接输送至储水层),使储水层土壤含水量维持在田间持水量的70%~85%,同时保持储水层上方浅层根系分布区土壤含水量不超过田间持水量的40%。该操作的核心技术特征在于:仅深层补水、不润湿浅层,从而在储水层与浅层根系分布区之间制造长期稳定的水势梯度(储水层高水势、浅层低水势),为后续水力再分配提供持续驱动力。
14、主根垂直下扎诱导通过物理导水通道诱导和/或生根剂化学诱导实现:
15、(1)物理导水通道诱导:在储水层底部设置深度为100~180 cm的垂直导水通道,通道内填充保水基质(如草炭土与蛭石的混合物),形成局部湿润区域,诱使主根沿湿润通道方向垂直下扎至储水层;
16、(2)生根剂化学诱导:定植前对深根型苗木根部进行诱导处理,使用含吲哚丁酸(iba)或萘乙酸(naa)的生根剂进行浸根处理,处理浓度为50~200 mg/l,处理时间为2~6h,诱导主根向深层定向生长。采用常温清水稀释配制浸根溶液,浸根环境温度控制在15~25 ℃,浸根完成后沥干根系表层药液再定植。
17、s3:逆向水分梯度定植与侧根跨株接触节点构建
18、在s2构建的储水层上方,按照设计的株行距开挖定植穴,于相邻植株之间预留宽度为10~20 cm的湿润沟槽。
19、定植时严格控制定植穴内土壤含水量为田间持水量的30%~40%,使定植穴处于浅层干旱胁迫状态;与此同时,向株间湿润沟槽内补充水分,使沟槽内土壤含水量维持在田间持水量的60%~75%,在定植穴与湿润沟槽之间形成逆向水分梯度(即定植穴含水量低于沟槽含水量,与传统造林中"根际高水、株间低水"的水分分布方向相反)。
20、所述逆向水分梯度定植的核心技术特征在于:并非利用水分梯度引导苗木根系向湿润区域自然延伸,而是通过主动制造定植穴浅层干旱胁迫,迫使苗木侧根在趋水性的驱动下跨越定植穴边界、向株间湿润沟槽方向密集生长,进而在相邻植株的侧根伸长区形成物理性的根-根接触与交织缠绕,构建后续菌根桥依附的物理载体。
21、传统造林技术中"趋水促根"旨在促进单株苗木根系发育以吸收更多水分,"断根促须根"旨在通过切断主根刺激侧根增生以提高移栽成活率;本发明与上述手段的本质区别在于:不追求单株根系的吸水效率最大化,而是以"诱导侧根跨株定向接触"为直接目的,将旱季干旱胁迫从"需要克服的逆境"转化为"倒逼根系跨株交织的工程驱动力"。
22、s4:菌根桥输水通道构建
23、在s3形成的根-根接触节点处,定向接种丛枝菌根真菌(amf)菌剂。所述amf菌剂选自摩西球囊霉(
funneliformis mosseae)或根内根孢囊霉(
rhizophagus irregularis)中的至少一种,菌剂含孢量≥20个/g,接种量为每株50~100 g,接种位置为s3中相邻植株侧根交织区域的根际土壤。
24、本发明所述菌根桥的专属功能在于:在s3已形成的根-根物理接触基础上,通过菌丝在根际界面处的延伸与交织,构建具有水分传导功能的跨植株生物通道。区别于常规菌根化造林以促进苗木养分吸收、提高生长量为目的,本发明菌根桥的核心功能是构建跨株水分输水通道。常规菌根化造林可在无根系接触条件下独立施菌并生效;本发明中s4的菌根桥必须依附于s3预先构建的根-根接触节点才能形成有效的跨植株输水通道,单独施菌剂而不构建根-根接触节点,无法实现跨植株的水分定向转运。
25、s5:双通道协同输水
26、以s2形成的深层储水层与浅层干旱胁迫区之间的长期水势梯度为水力再分配的持续驱动力。在该驱动力的作用下,水分经由两条并行通道完成从储水层向水分接收单元的定向转运:
27、第一通道为s3构建的根-根接触物理通道—水分经由深根型植株(水源供给单元)的主根向上传输至侧根,再经由侧根跨株接触界面,通过根-根间的物理接触传导至浅根型植株(水分接收单元)的根系;
28、第二通道为s4构建的菌丝桥生物通道—水分经由菌丝在根际-菌丝-根际界面处的桥接传输,在相邻植株根系之间实现生物介导的水分传导。
29、s3根系物理通道与s4菌丝生物通道在空间上重叠、在功能上互补,共同构成"垂直主干(深根吸水)+水平根网(侧根跨株)+菌根桥(菌丝跨株)"的三层一体化输水结构。缺任一层均无法实现稳定的跨植株水力再分配—无s2则无水势驱动力,无s3则无物理载体,无s4则无生物通道。
30、s6:多维度监测与闭环反馈优化
31、在群落内布设土壤水分传感器和植物茎流计,持续监测储水层含水量、浅层土壤含水量及水分接收单元的液流速率变化。同时采用氢氧稳定同位素示踪技术量化跨植株水分共享通量:向深层储水层注入氘水(d2o)或h2¹8o标记水,定期采集浅根型植株木质部水分并测定同位素比值δd或δ¹8o,计算跨植株水分转运量占浅根型植株总吸水量的比例。基于同位素两端元混合模型计算跨株水分贡献比例:以深层储水层标记水同位素值(δ_d)、浅层自然土壤水同位素值(δ_s)为两端端元,结合浅根植株木质部水分同位素测定值(δ_plant),按照公式 f_d =(δ_plant - δ_s)/(δ_d - δ_s)求解深层水源贡献率f_d,即深根跨株水分转运占浅根植株总吸水量的比例。
32、根据监测结果:
33、(1)若水分接收单元液流速率低于预设阈值,表明跨植株水分转运不足,则反向优化s1中深根型与浅根型植株的配置比例或优化s3中的株行距和沟槽宽度;所述预设阈值以当地旱季浅根型树种正常生长所需的最低茎流速率确定,日间平均茎流速率阈值设定为0.03 g·h-¹·cm-¹,若连续3日低于该值则触发反馈调控;
34、(2)若储水层含水量持续下降至低于田间持水量的40%,则触发补充灌溉指令,维持s2储水层的补水功能;
35、(3)监测数据同时用于评估s4菌根桥的构建效果:通过氢氧稳定同位素测得的跨植株水分共享比例(即水分跨株转运效率)判定菌根桥输水能力,当水分共享比例低于30%时,表明菌根桥发育效果不足,触发补接菌剂指令。
36、上述反馈逻辑构成"监测→诊断→参数优化→再监测"的完整闭环,使整个技术体系在运行中持续自我优化。
37、与现有技术相比,本发明具有以下显著的有益效果:
38、1)革新抗旱造林技术范式,实现群落主动定向调水
39、本发明通过划分深根供水单元与浅根受水单元,并人工搭建三层三维根系水力再分配网络,依托稳定剖面水势梯度完成旱季深层水分跨植株定向输送;应用本方法后跨株水分转运效率可达 62.4%,远高于常规混交仅 3.2% 的转运水平,浅根树种正午叶片水势由常规混交的 - 2.8 mpa 提升至 - 1.2 mpa,极端干旱条件下林分枯梢率由 23.5% 降至7.2%,整体抗旱能力显著增强。
40、2)全链路工艺强耦合协同,整体增效效果突出
41、整套步骤相互约束、缺一不可,s2 深层储水层提供输水驱动力,s3 根系交织节点作为菌根桥物理载体,s4 菌丝生物通道与根系物理通道协同输水,s6 监测闭环反向迭代优化造林参数;若省略菌根桥构建工序,跨株水分转运效率仅 12.3%,取消主根下扎诱导后转运效率低至 6.8%,均远低于完整工艺形成的输水效果,证明多工序协同产生单一手段无法实现的增益。
42、3)独创逆向水分梯度定植,大幅提升根间输水节点数量
43、常规趋水促根、断根促须根工艺仅以提升单株吸水能力、苗木移栽成活率为目标,本发明主动营造定植穴干旱、株间沟槽湿润的逆向水分梯度,借助根系趋水性诱导侧根跨株缠绕,形成大量根 - 根接触载体;常规均匀浇水造林根间接触节点密度仅 0.3 个 /m²,采用本定植工艺后节点密度可达 4.8 个 /m²,提升 16 倍,为菌根输水桥提供充足附着基础。
44、4)重新定义丛枝菌根菌剂应用功能,定向构建跨株生物输水通道
45、传统菌根造林核心作用为促进苗木养分吸收,无根系接触条件下仍可发挥作用,本发明菌剂专一用于搭建水分传输菌丝桥,必须依托预先成型的根 - 根交织节点才能实现跨株水分转运;无根接触时单独接种菌剂仅能实现 12.3% 的跨株转运效率,搭配本发明根系交织节点后转运效率提升 5.1 倍。
46、5)成型三层一体化输水结构,长效稳定供给旱季共享水分
47、经本方法造林,86.2% 深根树种主根可下扎至深层储水层,同步形成高密度根间交织节点与完整菌根菌丝通道;浅根植株总吸水中 62.4% 来源于深根树种跨株转运,群落整体耗水量中超 40% 由深层储水层补给,旱季水分供给稳定性大幅提升。
48、6)搭建量化闭环监测调控体系,实现系统长效自优化
49、融合土壤水分传感器、植物茎流计与氢氧同位素示踪技术,精准量化跨植株水分共享通量;设置多层调控阈值,跨株水分转运不足时自动调整深浅根树种配比、株行距与沟槽规格,当水分共享占比低于 30% 判定菌根桥发育不足,可及时补接菌剂,整套系统可动态迭代优化输水网络。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com