
降低甜菜碱醛脱氢酶含量或活性在创制香味小麦中的应用
本发明属于基因编辑领域,具体涉及降低甜菜碱醛脱氢酶含量或活性在创制香味小麦中的应用。
背景技术:
1、香味是作物重要的食味品质指标。研究发现,2-乙酰-1-吡咯啉 (2-acetyl-1-pyrroline, 2-ap)是与作物香味直接相关的挥发性物质。创制香味农作物新种质,不仅可以丰富香味种质资源,而且能影响农产品消费偏好和提升市场价值。
2、小麦是全球最重要的粮食作物之一,不仅是面包、馒头和面条等主食的核心原料,也是糕点、饼干等烘焙食品的基础配料。目前,缺乏具有天然香味的香型小麦种质资源和材料。创制香味小麦新种质,不仅能够提升面包、面条、馒头等小麦制品的感官吸引力与风味品质,满足消费者日益增长的高品质香味面食需求,而且利用其天然香气可减少食品加工中对人工香精的依赖,有望大大提高小麦产品的市场价值和利润空间。crispr/cas9基因编辑技术为定向创制优质小麦新种质提供了强有力的分子工具,但由于小麦基因组多倍体特性和基因功能冗余性,如何通过基因编辑创制香味小麦,目前尚未见相关报道。
技术实现思路
1、本发明所要解决的技术问题是如何提高小麦籽粒中2-乙酰-1-吡咯啉含量,以获得籽粒香型小麦。
2、为解决上述技术问题,本发明首先提供了降低甜菜碱醛脱氢酶(betainealdehyde dehydrogenase, badh)含量或活性的物质的下述任一应用:
3、x1、提高小麦籽粒2-乙酰-1-吡咯啉(2-acetyl-1-pyrroline, 2-ap)含量;x2、制备提高小麦籽粒2-乙酰-1-吡咯啉含量的产品;x3、培育籽粒2-乙酰-1-吡咯啉高含量的小麦;x4、制备培育籽粒2-乙酰-1-吡咯啉高含量的小麦的产品;x5、提高小麦籽粒香味;x6、制备提高小麦籽粒香味的产品;x7、培育籽粒香味提高的小麦;x8、制备培育籽粒香味提高的小麦的产品;
4、所述甜菜碱醛脱氢酶为tabadh1蛋白质和tabadh2蛋白质,或为所述tabadh1蛋白质;
5、所述tabadh1蛋白质为tabadh1-a蛋白质、tabadh1-b蛋白质、tabadh1-d蛋白质中的任一种、任两种或三种;
6、所述tabadh1-a蛋白质为如下a1)或a2):
7、a1)氨基酸序列是seq id no.5的蛋白质;
8、a2)将seq id no.5所示的氨基酸序列经过氨基酸残基的取代和/或缺失和/或添加、与a1)具有80%以上同一性且与2-乙酰-1-吡咯啉含量相关的蛋白质;
9、所述tabadh1-b蛋白质为如下b1)或b2):
10、b1)氨基酸序列是seq id no.8的蛋白质;
11、b2)将seq id no.8所示的氨基酸序列经过氨基酸残基的取代和/或缺失和/或添加、与b1)具有80%以上同一性且与2-乙酰-1-吡咯啉含量相关的蛋白质;
12、所述tabadh1-d蛋白质为如下c1)或c2):
13、c1)氨基酸序列是seq id no.11的蛋白质;
14、c2)将seq id no.11所示的氨基酸序列经过氨基酸残基的取代和/或缺失和/或添加、与c1)具有80%以上同一性且与2-乙酰-1-吡咯啉含量相关的蛋白质;
15、所述tabadh2蛋白质为tabadh2-a蛋白质、tabadh2-b蛋白质、tabadh2-d蛋白质中的任一种、任两种或三种;
16、所述tabadh2-a蛋白质为如下d1)或d2):
17、d1)氨基酸序列是seq id no.14的蛋白质;
18、d2)将seq id no.14所示的氨基酸序列经过氨基酸残基的取代和/或缺失和/或添加、与d1)具有80%以上同一性且与2-乙酰-1-吡咯啉含量相关的蛋白质;
19、所述tabadh2-b蛋白质为如下e1)或e2):
20、e1)氨基酸序列是seq id no.17的蛋白质;
21、e2)将seq id no.17所示的氨基酸序列经过氨基酸残基的取代和/或缺失和/或添加、与e1)具有80%以上同一性且与2-乙酰-1-吡咯啉含量相关的蛋白质;
22、所述tabadh2-d蛋白质为如下f1)或f2):
23、f1)氨基酸序列是seq id no.20的蛋白质;
24、f2)将seq id no.20所示的氨基酸序列经过氨基酸残基的取代和/或缺失和/或添加、与f1)具有80%以上同一性且与2-乙酰-1-吡咯啉含量相关的蛋白质。
25、所述具有80%以上同一性为具有80%、81%、82%、83%、84%、85%、86%、87%、88%、89%、90%、91%、92%、93%、94%、95%、96%、97%、98%或99%的同一性。可使用国际互联网上的同源性检索站点测定氨基酸序列的同一性,如ncbi主页网站的blast网页。例如,可在高级blast2.1中,通过使用blastp作为程序,将expect值设置为10,将所有filter设置为off,使用blosum62作为matrix,将gap existence cost,per residue gap cost和lambda ratio分别设置为11,1和0.85(缺省值)并进行检索一对氨基酸序列的同一性进行计算,然后即可获得同一性的值(%)。
26、在本发明的一些实施方式中,所述甜菜碱醛脱氢酶为所述tabadh1-a蛋白质和所述tabadh1-d蛋白质。
27、在本发明的一些实施方式中,所述甜菜碱醛脱氢酶为所述tabadh1-a蛋白质、所述tabadh1-b蛋白质和所述tabadh1-d蛋白质。
28、在本发明的一些实施方式中,所述甜菜碱醛脱氢酶为所述tabadh1-a蛋白质、所述tabadh1-b蛋白质、所述tabadh2-a蛋白质和所述tabadh2-b蛋白质。
29、在本发明的一些实施方式中,所述甜菜碱醛脱氢酶为所述tabadh1-a蛋白质、所述tabadh1-b蛋白质、所述tabadh1-d蛋白质、所述tabadh2-a蛋白质和所述tabadh2-b蛋白质。
30、上述应用中,所述降低甜菜碱醛脱氢酶含量或活性的物质为g1)或g2):
31、g1)敲除所述甜菜碱醛脱氢酶的编码基因的核酸分子或抑制所述甜菜碱醛脱氢酶的编码基因表达的核酸分子;
32、g2)含有g1)所述核酸分子的表达盒、重组载体、重组微生物或植物。
33、具体的,g1)中,所述tabadh1-a蛋白质的编码基因为g11)-g14)中的任一种:
34、g11)编码序列是seq id no.4的dna分子;g12)seq id no.4所示的dna分子;g13)seq id no.3所示的dna分子;g14)与g11)或g12)或g13)限定的核苷酸序列具有75%或75%以上同一性,且编码所述tabadh1-a蛋白质的dna分子。
35、所述tabadh1-b蛋白质的编码基因为g15)-g18)中的任一种:
36、g15)编码序列是seq id no.7的dna分子;g16)seq id no.7所示的dna分子;g17)seq id no.6所示的dna分子;g18)与g15)或g16)或g17)限定的核苷酸序列具有75%或75%以上同一性,且编码所述tabadh1-b蛋白质的dna分子。
37、所述tabadh1-d蛋白质的编码基因为g19)-g22)中的任一种:
38、g19)编码序列是seq id no.10的dna分子;g20)seq id no.10所示的dna分子;g21)seq id no.9所示的dna分子;g22)与g19)或g20)或g21)限定的核苷酸序列具有75%或75%以上同一性,且编码所述tabadh1-d蛋白质的dna分子。
39、所述tabadh2-a蛋白质的编码基因为g23)-g26)中的任一种:
40、g23)编码序列是seq id no.13的dna分子;g24)seq id no.13所示的dna分子;g25)seq id no.12所示的dna分子;g26)与g23)或g24)或g25)限定的核苷酸序列具有75%或75%以上同一性,且编码所述tabadh2-a蛋白质的dna分子。
41、所述tabadh2-b蛋白质的编码基因为g27)-g30)中的任一种:
42、g27)编码序列是seq id no.16的dna分子;g28)seq id no.16所示的dna分子;g29)seq id no.15所示的dna分子;g30)与g27)或g28)或g29)限定的核苷酸序列具有75%或75%以上同一性,且编码所述tabadh2-b蛋白质的dna分子。
43、所述tabadh2-d蛋白质的编码基因为g31)-g34)中的任一种:
44、g31)编码序列是seq id no.19的dna分子;g32)seq id no.19所示的dna分子;g33)seq id no.18所示的dna分子;g34)与g31)或g32)或g33)限定的核苷酸序列具有75%或75%以上同一性,且编码所述tabadh2-d蛋白质的dna分子。
45、这里使用的术语“同一性”指与天然核酸序列的序列相似性。“同一性”包括与本发明的编码seq id no.5、seq id no.8、seq id no.11、seq id no.14、seq id no.17或seqid no.20所示的蛋白质的核苷酸序列具有75%或更高,或85%或更高,或90%或更高,或95%或更高同一性的核苷酸序列。同一性可以用肉眼或计算机软件进行评价。使用计算机软件,两个或多个序列之间的同一性可以用百分比(%)表示,其可以用来评价相关序列之间的同一性。
46、上述75%或75%以上同一性,可为75%、76%、77%、78%、79%、80%、81%、82%、83%、84%、85%、86%、87%、88%、89%、90%、91%、92%、93%、94%、95%、96%、97%、98%或99%的同一性。
47、进一步,g1)所述核酸分子为crispr-cas系统中靶向所述甜菜碱醛脱氢酶的编码基因的grna分子。
48、在本发明的一些实施方式中,靶向所述tabadh1-a蛋白质、所述tabadh1-b蛋白质、所述tabadh1-d蛋白质的编码基因的grna分子的靶点为seq id no.3的第2090-2109位。
49、在本发明的一些实施方式中,靶向所述tabadh1-a蛋白质、所述tabadh1-b蛋白质、所述tabadh1-d蛋白质的编码基因的grna分子的靶点为seq id no.3的第2554-2573位。
50、在本发明的一些实施方式中,靶向所述tabadh2-a蛋白质、所述tabadh2-b蛋白质、所述tabadh2-d蛋白质的编码基因的grna分子的靶点为seq id no.12的第813-832位。
51、所述载体为含有grna分子骨架与cas基因的载体。在本发明的一个实施例中,所述载体为phue411-tau3-grna scaffold-ubi-nls-cas9-nls-e9-35s-hpt ii-nos,该载体是由17941bp组成的环状质粒,其一条链的第1-11900位的序列为seq id no.1,第11901-17941位的序列为seq id no.2。
52、g2)所述重组载体可为能转录所述grna分子的载体。所述重组载体还能表达cas蛋白质,如cas9蛋白质。
53、具体的,g2)所述重组载体为在phue411-tau3-grna scaffold-ubi-nls-cas9-nls-e9-35s-hpt ii-nos的两个
bsaⅰ酶切位点间插入seq id no.3的第2090-2109位或seqid no.3的第2554-2573位反向互补序列或seq id no.12的第813-832位反向互补序列所示的dna片段得到的重组载体。
54、所述微生物可为酵母、细菌、藻或真菌。其中,细菌可为农杆菌。
55、本发明还提供了提高小麦籽粒2-乙酰-1-吡咯啉含量的方法,所述方法包括:对小麦中所述甜菜碱醛脱氢酶的编码基因进行编辑,实现小麦籽粒2-乙酰-1-吡咯啉含量的提高。
56、本发明还提供了提高小麦籽粒香味的方法,所述方法包括:对小麦中所述甜菜碱醛脱氢酶的编码基因进行编辑,实现小麦籽粒香味的提高。
57、本发明还提供了培育籽粒2-乙酰-1-吡咯啉含量提高的小麦的方法,所述方法包括:对小麦中所述甜菜碱醛脱氢酶的编码基因进行编辑,得到籽粒2-乙酰-1-吡咯啉含量提高的目的小麦。
58、本发明还提供了培育籽粒香味提高的小麦的方法,所述方法包括:对小麦中所述甜菜碱醛脱氢酶的编码基因进行编辑,得到籽粒香味提高的目的小麦。
59、在本发明的一些实施方式中,所述小麦为郑麦7698。
60、上文中,所述甜菜碱醛脱氢酶的编码基因的编辑实现了编码序列的移码突变或蛋白质编码的提前终止。
61、在本发明的一个实施方式中,所述目的小麦为株系b1-t2-28-2-25(序列变化见图6)。
62、在本发明的一个实施方式中,所述目的小麦为株系b1-t2-7-4-6(序列变化见图6)。
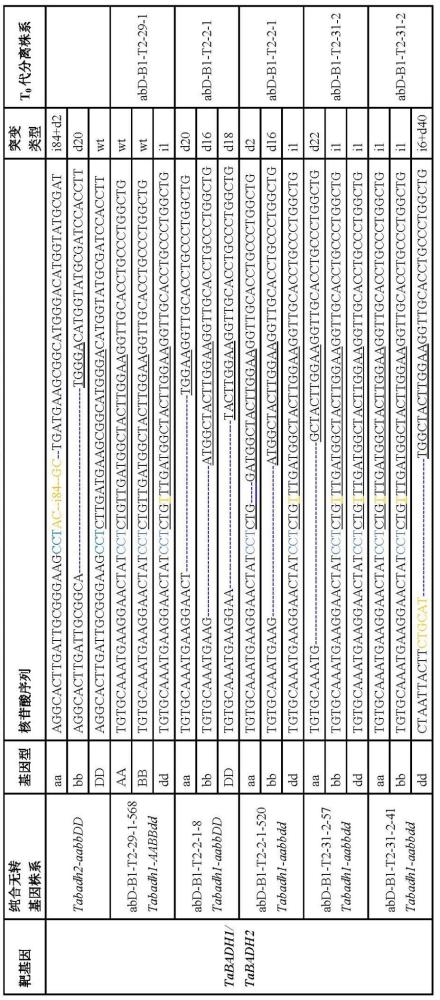
63、在本发明的一个实施方式中,所述目的小麦为株系abd-b1-t2-2-1-8(序列变化见图8)。
64、在本发明的一个实施方式中,所述目的小麦为株系abd-b1-t2-31-2-41(序列变化见图8)。
65、本发明还提供了香型小麦,所述香型小麦为对待改良小麦中所述甜菜碱醛脱氢酶的编码基因进行编辑得到的籽粒2-乙酰-1-吡咯啉含量提高的香型小麦,所述香型小麦籽粒中2-乙酰-1-吡咯啉含量高于所述待改良小麦。
66、具体的,所述甜菜碱醛脱氢酶的编码基因的编辑实现了编码序列的移码突变或蛋白质编码的提前终止。
67、在本发明的一些实施方式中,所述待改良小麦为郑麦7698。
68、在本发明的一个实施方式中,所述香型小麦为株系b1-t2-28-2-25(序列变化见图6)。
69、在本发明的一个实施方式中,所述香型小麦为株系b1-t2-7-4-6(序列变化见图6)。
70、在本发明的一个实施方式中,所述香型小麦为株系abd-b1-t2-2-1-8(序列变化见图8)。
71、在本发明的一个实施方式中,所述香型小麦为株系abd-b1-t2-31-2-41(序列变化见图8)。
72、上文中,所述编辑采用crispr-cas系统实现。具体可采用g2)所述重组载体实现。
73、本发明利用crispr/cas9基因编辑系统,以优异小麦品种郑麦7698为受体材料,分别或同时靶向小麦
tabadh1和
tabadh2同源基因,并通过后代遗传分离获得无转基因纯合单基因突变体和双基因突变体植株,进行关键香气物质2-ap含量测定和农艺性状调查,最终得到了无转基因的香味小麦新种质。在
tabadh1两个或三个亚基因组同时编辑突变体中,2-ap含量显著提升至13.10 μg/kg和13.73 μg/kg,说明
tabadh1功能缺失可有效促进2-ap含量积累,但其效应依赖于多个亚基因组的协同失活。在
tabadh2一个或两个亚基因组编辑突变体中,2-ap含量较野生型均未提高。在双基因同时编辑突变体
tabadh1-aabbdd/
tabadh2-
aabbdd和
tabadh1-aabbdd/
tabadh2-aabbdd中,2-ap含量分别大幅提升至36.77 μg/kg 和42.70 μg/kg,是野生型小麦(3.80 μg/kg)的9.68倍和11.24倍。以上结果首次证明了小麦中
tabadh1基因和
tabadh2基因在2-ap代谢调控中存在功能冗余,两者联合失活的增效作用远超单个基因编辑效果。同时,双基因突变不影响产量性状,实现了香味品质提升与产量稳定的协同兼顾。综上,本发明成功创制了香味小麦新材料,为培育香味小麦新品种,提供了重要技术和材料支撑。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com