
刺激隐核虫纤毛表面相关重组抗原蛋白及其应用
本发明涉及水产动物寄生虫病免疫防控及生物疫苗,具体而言,涉及一种刺激隐核虫纤毛表面相关重组抗原蛋白及其应用。
背景技术:
1、原生动物皮层主要由表膜和细胞骨架构成,其组成因不同类群而存在差异,通常包括膜相关蛋白、亚表膜微管、基体以及与运动或侵入相关的蛋白等;部分寄生原生动物的皮层相关蛋白具有较好的免疫原性,例如,分布于利士曼原虫表面及鞭毛袋的kmp-11能够诱导宿主产生抗原特异性细胞免疫应答,活动锥虫的鞭毛膜蛋白ifx能够诱导保护性免疫,疟原虫跨膜蛋白trap/ssp2诱导产生的抗体能够抑制寄生虫侵入宿主细胞,弓形虫质膜蛋白sabp1和sag1以及柔嫩艾美耳球虫表面抗原etsag6、etsag15等也被用于相关疫苗研究,由此表明,寄生原生动物表面的膜性组分以及与皮层结构相关的蛋白具有作为候选免疫抗原的潜力。
2、寄生性纤毛虫是水产养殖过程中较为常见的一类病原,其表面密集的多纤毛阵列与高度有序的皮层细胞骨架共同构成纤毛-皮层结构系统,相关抗原研究已由细胞骨架和纤毛结构蛋白逐步拓展至纤毛及表膜抗原;已有研究采用刺激隐核虫rciactin亚单位疫苗以及多子小瓜虫β-tubulin dna疫苗进行免疫,多子小瓜虫55 kda阻动抗原能够诱导斑点叉尾鮰产生特异性抗体和保护性免疫,嗜污纤毛虫约38 kda以及迈阿密虫30 kda、34 kda和38 kda的优势抗原主要富集于纤毛或膜组分,并能够被相应免疫血清识别,引起虫体凝集或阻动;此外,刺激隐核虫幼虫纤毛表面的约32 kda整合膜蛋白也曾被鉴定为候选阻动抗原,相关抗血清能够引起刺激隐核虫幼虫凝集及运动受抑,上述研究说明,纤毛及表膜区域具有较好的抗体可及性,也是寄生性纤毛虫保护性抗原筛选中较受关注的区域。
3、刺激隐核虫(cryptocaryon irritans)是危害海水养殖鱼类的重要寄生性纤毛虫,在其纤毛及表膜相关抗原中,阻动抗原(immobilization antigen,i-antigen)是一类研究较多的候选保护性抗原;已有研究表明,i-antigen dna疫苗可使石斑鱼获得一定的相对保护率,重组gdci3 i-antigen能够诱导阻动抗体并提供部分保护,ci-ia1、ci-ia2和ci-ia8等抗原免疫后能够提高血清阻动效价并降低攻毒后的寄生虫丰度,相关融合亚单位疫苗也被用于提高鱼体的抗感染能力。
4、但现有研究所涉及的刺激隐核虫阻动抗原仍主要集中于少数已经报道的候选分子,不同候选抗原产生的免疫保护效果存在差异,对于其他尚未充分表征的刺激隐核虫i-antigen样蛋白,其天然表达部位、是否能够暴露于幼虫纤毛或表膜等抗体易接近区域,以及能否诱导具有虫体阻动作用的功能性抗体和稳定的抗感染保护,仍缺少较为完整的研究依据。
5、刺激隐核虫病在我国沿海养殖区域反复发生,感染鱼体后可造成呼吸功能受损,并可能在较短时间内引起鱼群死亡,对海水养殖生产造成较大影响;大黄鱼(larimichthyscrocea)是我国重要的海水养殖经济鱼类,同时也是刺激隐核虫的易感宿主,已有研究显示,刺激隐核虫感染能够诱导大黄鱼血清、皮肤及鳃黏液产生寄生虫特异性igm和igt,并伴随黏膜及系统免疫组织中的b细胞、t细胞聚集与增殖,采用重组表面抗原rcisa32.6t对大黄鱼进行免疫后亦能够获得一定的相对保护率,说明大黄鱼能够针对刺激隐核虫产生抗原特异性免疫应答,并可通过疫苗免疫获得一定程度的保护。
6、然而现有针对大黄鱼刺激隐核虫病的候选抗原种类仍较为有限,部分抗原的研究主要集中于抗体识别、血清阻动或攻毒保护中的某一方面,对抗原在刺激隐核虫天然虫体中的表达及纤毛-表膜定位、重组抗原的免疫原性、功能性抗体形成以及鱼体攻毒保护之间的关系缺乏系统评价;同时,刺激隐核虫具有较为复杂的生活史和表面抗原组成,仅依据序列同源性或生物信息学预测筛选候选抗原,尚不足以判断其是否能够作为适用于大黄鱼免疫防控的有效抗原,这也限制了刺激隐核虫亚单位疫苗候选抗原的进一步筛选和开发。
7、基于上述情况,目前仍亟需筛选具有天然表面可及性、能够诱导功能性抗体并具有抗刺激隐核虫感染保护潜力的候选抗原,为大黄鱼刺激隐核虫病亚单位疫苗的开发提供更多可选择的抗原基础。
技术实现思路
1、本发明要解决的第一个技术问题是提供一种刺激隐核虫纤毛表面相关重组抗原蛋白,以解决现有技术中可用于大黄鱼刺激隐核虫病免疫防控的候选抗原较为有限,部分候选抗原的天然表面可及性及功能性抗体诱导能力尚不明确的问题。
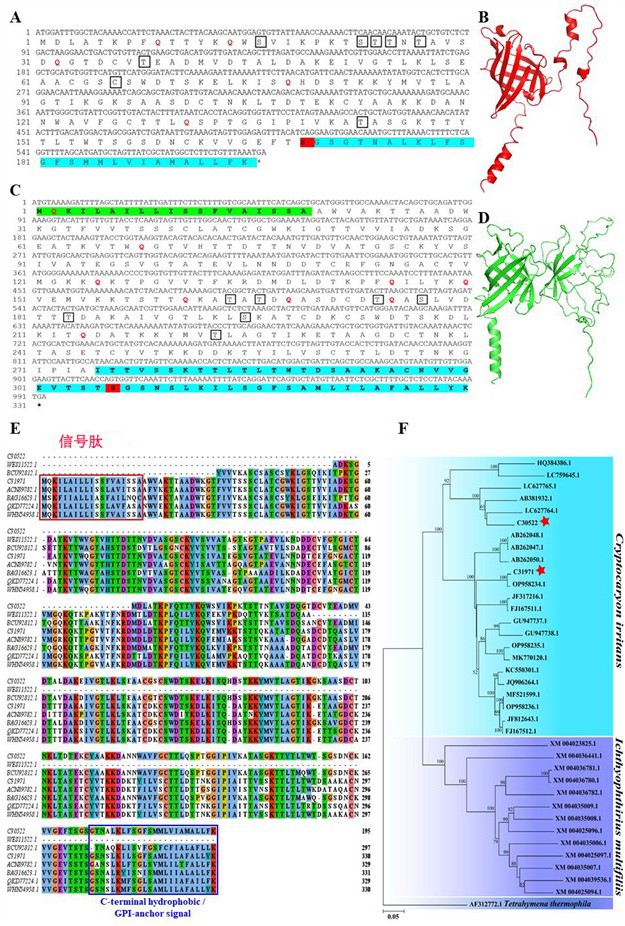
2、为克服以上现有技术的缺陷,本发明提供了一种刺激隐核虫纤毛表面相关重组抗原蛋白rci-csap-1,所述rci-csap-1包括氨基酸序列如seq id no:1所示的ci-csap-1抗原片段,所述ci-csap-1抗原片段对应氨基酸序列如seq id no:2所示的刺激隐核虫纤毛表面相关蛋白ci-csap-1的第1~169位氨基酸,并由所述ci-csap-1去除c端强疏水性gpi锚定相关区域后获得;所述rci-csap-1保留刺激隐核虫幼虫天然抗原相关表位,且能够诱导大黄鱼产生对刺激隐核虫幼虫具有阻动活性的血清抗体。
3、本发明提供的rci-csap-1具有以下优点:ci-csap-1天然抗原主要分布于刺激隐核虫幼虫纤毛杆及邻近表膜区域,该区域位于虫体与宿主接触界面,具有较好的抗体可及性;在重组抗原设计中,基于c端gpi锚定相关疏水区域预测及实际重组表达构建,选择ci-csap-1全长蛋白第1~169位氨基酸作为重组表达的抗原片段,在去除c端强疏水性gpi锚定相关区域的同时保留蛋白主体及抗原相关区域,有利于降低膜锚定疏水片段对原核表达和后续纯化的影响,并保留能够被刺激隐核虫幼虫全虫免疫血清识别的抗原表位。经rci-csap-1免疫后,大黄鱼能够产生对刺激隐核虫幼虫具有阻动作用的功能性血清抗体,并表现出相应的抗感染保护作用;免疫后鳃、皮肤、脾脏和头肾中与黏膜效应、抗原摄取加工递呈及免疫调节相关的基因呈现组织和时间依赖性的响应,表明该重组抗原能够诱导体液免疫反应,并调动黏膜和系统免疫相关响应,从而为大黄鱼抵抗刺激隐核虫感染提供抗原基础。
4、在一种可能的实施方式中,所述ci-csap-1为由刺激隐核虫转录本c30522编码的蛋白,所述ci-csap-1的全长开放阅读框为588 bp并编码195个氨基酸,所述ci-csap-1不具有典型n端信号肽,所述ci-csap-1具有c端gpi锚定相关区域及8个潜在o-糖基化位点。
5、本实施方式进一步限定了ci-csap-1的分子来源、结构特征及实际用于重组表达的抗原片段范围。所述ci-csap-1抗原片段对应ci-csap-1全长蛋白的第1~169位氨基酸,去除其c端强疏水性gpi锚定相关区域后仍保留蛋白主体及相关抗原区域,在兼顾抗原性的同时有利于后续原核表达和纯化。
6、本发明还提供了一种刺激隐核虫纤毛表面相关重组抗原蛋白rci-csap-2,所述rci-csap-2包括氨基酸序列如seq id no:3所示的ci-csap-2抗原片段,所述ci-csap-2抗原片段对应氨基酸序列如seq id no:4所示的刺激隐核虫纤毛表面相关蛋白ci-csap-2的第20~274位氨基酸,并由所述ci-csap-2去除由19个氨基酸组成的n端信号肽以及c端强疏水性gpi锚定相关区域后获得;所述rci-csap-2保留刺激隐核虫幼虫天然抗原相关表位,且能够诱导大黄鱼产生对刺激隐核虫幼虫具有阻动活性的血清抗体。
7、本发明提供的rci-csap-2具有以下优点:ci-csap-2天然抗原主要定位于刺激隐核虫幼虫纤毛表面,并沿纤毛结构分布,使相应抗原表位处于宿主抗体较易接触的部位;在重组抗原设计中,基于n端信号肽、c端gpi锚定相关疏水区域预测及实际重组表达构建,去除ci-csap-2第1~19位的n端信号肽及c端疏水区域,选择全长蛋白第20~274位氨基酸作为重组表达的抗原片段,从而在保留中间蛋白主体及抗原相关区域的同时适应大肠杆菌重组表达体系,所得重组蛋白能够被刺激隐核虫幼虫全虫免疫血清识别。rci-csap-2免疫大黄鱼后能够诱导具有较好阻动活性的血清抗体,并提高大黄鱼受到刺激隐核虫攻毒后的抗感染保护能力;免疫后黏膜组织以及脾脏、头肾中的多类免疫相关基因亦发生时间依赖性的响应,表明rci-csap-2具有较好的功能性抗体诱导能力和免疫保护潜力,可作为刺激隐核虫亚单位疫苗的候选抗原。
8、在一种可能的实施方式中,所述ci-csap-2为由刺激隐核虫转录本c31971编码的蛋白,所述ci-csap-2的全长开放阅读框为993 bp并编码330个氨基酸,所述ci-csap-2包括由19个氨基酸组成的n端信号肽、c端gpi锚定相关区域及7个潜在o-糖基化位点。
9、本实施方式进一步限定了ci-csap-2的分子组成及实际用于重组表达的抗原片段范围。所述ci-csap-2抗原片段对应ci-csap-2全长蛋白的第20~274位氨基酸,通过去除第1~19位的n端信号肽以及c端强疏水性gpi锚定相关区域,可保留用于免疫的主要蛋白片段,并有利于后续原核表达和纯化。
10、本发明要解决的第二个技术问题是提供上述刺激隐核虫纤毛表面相关重组抗原蛋白的核酸、表达载体及制备方法,以解决相应抗原在异源表达体系中的构建、表达、纯化及复性问题。
11、为克服以上现有技术的缺陷,本发明还提供了一种编码所述rci-csap-1中的ci-csap-1抗原片段或所述rci-csap-2中的ci-csap-2抗原片段的核酸分子,其中,编码所述ci-csap-1抗原片段的核苷酸序列如seq id no:5所示,编码所述ci-csap-2抗原片段的核苷酸序列如seq id no:6所示。
12、本发明提供的核酸分子能够为ci-csap-1抗原片段和ci-csap-2抗原片段的重组表达提供明确的编码基础;针对纤毛虫来源目的基因与大肠杆菌表达体系之间的密码子使用差异进行序列优化,可降低异常终止等因素对目的蛋白表达的影响,同时保持相应抗原片段的氨基酸组成,为后续获得具有免疫反应性的rci-csap-1和rci-csap-2重组抗原蛋白提供基础。
13、本发明还提供了一种重组表达载体,所述重组表达载体包括pet-32a(+)表达载体和上述核酸分子,所述核酸分子连接于所述pet-32a(+)表达载体的kpni酶切位点与bamhi酶切位点之间。
14、本发明采用pet-32a(+)作为重组表达载体,并将编码目的抗原的核酸片段连接于kpni和bamhi酶切位点之间,可使目的核酸置于适合大肠杆菌表达的载体体系中;该表达载体与bl21(de3)宿主菌相配合,可用于rci-csap-1和rci-csap-2的诱导表达,并为后续目的蛋白的分离、纯化及复性提供基础。
15、本发明还提供了一种制备所述rci-csap-1或所述rci-csap-2的方法,包括:
16、s1:对编码所述ci-csap-1抗原片段或所述ci-csap-2抗原片段的核酸序列进行适于大肠杆菌表达的密码子优化,将经密码子优化后的目的核酸片段经kpni和bamhi双酶切后连接至pet-32a(+)表达载体,获得重组表达载体;
17、s2:将所述步骤s1中获得的重组表达载体转化至大肠杆菌bl21(de3),向培养获得的阳性克隆菌液中加入iptg至终浓度为0.5 mm,于37℃、200 rpm条件下诱导3~4 h,收集菌体并进行超声破碎,获得含有所述rci-csap-1或所述rci-csap-2的包涵体;
18、s3:将所述步骤s2中获得的包涵体采用含8 m尿素的裂解液溶解,经镍亲和层析纯化后,于4℃条件下依次采用尿素浓度为6 m、4 m、3 m、2 m、1 m、0.5 m、0.2 m和0 m的缓冲液进行梯度透析复性,每一尿素浓度对应的透析时间为4~8 h,获得复性的所述rci-csap-1或所述rci-csap-2。
19、本发明提供的制备方法具有以下优点:步骤s1通过对编码序列进行适于大肠杆菌表达的密码子优化,并将目的核酸片段构建至pet-32a(+)表达载体中,使刺激隐核虫来源序列能够适应原核宿主的翻译体系;步骤s2采用bl21(de3)作为表达宿主,并在0.5 mmiptg、37℃及200 rpm条件下诱导3~4 h,可获得含有目的重组抗原的包涵体;步骤s3利用8m尿素将包涵体中的目的蛋白溶解,在镍亲和层析纯化后,再按照6 m、4 m、3 m、2 m、1 m、0.5 m、0.2 m和0 m的尿素浓度逐级透析,使蛋白所处的变性环境逐步过渡至非变性环境,减少尿素浓度变化过快引起的蛋白聚集,有利于目的蛋白复性;序列优化、诱导表达、变性溶解、亲和纯化及梯度复性相衔接,可获得能够进行后续免疫评价的rci-csap-1和rci-csap-2重组抗原蛋白。
20、本发明的第三个技术问题是提供一种用于大黄鱼抗刺激隐核虫免疫的亚单位疫苗组合物及其应用,以解决现有技术中用于大黄鱼刺激隐核虫病免疫预防的有效亚单位疫苗抗原选择较少的问题。
21、为克服以上现有技术的缺陷,本发明还提供了一种用于大黄鱼抗刺激隐核虫免疫的亚单位疫苗组合物,所述亚单位疫苗组合物包括所述rci-csap-1或所述rci-csap-2以及弗氏佐剂;所述亚单位疫苗组合物由浓度为1 mg/ml的所述rci-csap-1或所述rci-csap-2的蛋白溶液与所述弗氏佐剂按照1:1的体积比乳化制得,所述弗氏佐剂为弗氏完全佐剂或弗氏不完全佐剂。
22、本发明提供的亚单位疫苗组合物具有以下优点:rci-csap-1和rci-csap-2来源于刺激隐核虫幼虫纤毛表面相关天然抗原,有利于免疫产生的抗体识别虫体表面可接近的相应抗原;重组抗原与弗氏佐剂按照1:1体积比乳化后,可使抗原在免疫过程中维持较为持续的刺激,并有利于抗原递呈及后续免疫应答。采用上述亚单位疫苗组合物免疫大黄鱼后,能够诱导对刺激隐核虫幼虫具有聚集、阻动作用的功能性血清抗体,并增强大黄鱼受到刺激隐核虫攻毒后的抗感染保护能力,同时可引起鳃、皮肤、脾脏及头肾中与黏膜/体液免疫、抗原加工递呈及免疫调节相关基因的动态响应,功能性抗体以及宿主黏膜和系统免疫应答共同为抵抗刺激隐核虫感染提供免疫基础。
23、本发明还提供了所述rci-csap-1在制备用于预防大黄鱼刺激隐核虫病的亚单位疫苗中的应用。
24、上述应用中,rci-csap-1作为亚单位疫苗抗原能够诱导大黄鱼产生对刺激隐核虫幼虫具有阻动活性的血清抗体,并提高大黄鱼受到刺激隐核虫攻毒后的抗感染保护能力,因而可用于制备预防大黄鱼刺激隐核虫病的亚单位疫苗。
25、本发明还提供了所述rci-csap-2在制备用于预防大黄鱼刺激隐核虫病的亚单位疫苗中的应用。
26、上述应用中,rci-csap-2作为亚单位疫苗抗原能够诱导对刺激隐核虫幼虫具有阻动活性的血清抗体,并提高大黄鱼受到刺激隐核虫攻毒后的抗感染保护能力,为大黄鱼刺激隐核虫病的免疫防控提供新的候选抗原。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com