
诱导水稻产生额外维管束鞘细胞的技术及其应用
本发明涉及农学领域,具体地,本发明涉及诱导水稻产生额外维管束鞘细胞的技术及其应用。
背景技术:
1、对于占据陆生植物95%的c3物种(如水稻、小麦)而言,光合co2同化作用的开始于叶肉细胞中核酮糖-1,5-二磷酸羧化酶/加氧酶(rubisco)的催化反应。这个古老酶促反应形成的三碳化合物(3-磷酸甘油酸)的过程称为c3光合作用。然而,这个维持地球生命运转35亿年的关键酶却存在重要缺陷:其催化位点对co2和o2的识别精度较低。当叶片气孔在高温下关闭导致胞内co2浓度骤降时,rubisco的氧合反应活性将显著增强,每固定1分子o2就会产生1分子磷酸乙醇酸——这种光呼吸中间体不仅造成20-50%的碳损失,还需消耗atp和nadph通过过氧化物酶体-线粒体多细胞器协作进行解毒。面对这种进化压力,玉米、甘蔗等c4植物发展出了精妙的代谢分区策略。其叶片横切面呈现独特的"kranz解剖结构":叶脉被两层功能特化的细胞同心包裹——外层叶肉细胞(m)如同co2泵站,通过磷酸烯醇式丙酮酸羧化酶(pepc)将大气co2固定为四碳有机酸(苹果酸或天冬氨酸);内层维管束鞘细胞(bs)则化身密闭反应室,c4酸在此脱羧释放高浓度co2,使rubisco完全处于碳饱和状态。这使得c4植物的光合速率较c3植物提升50%,水分利用效率增加2-3倍,氮素利用率更是达到4-6倍优化。c4系统的卓越性能高度依赖其精密的空间架构:维管束鞘细胞比例增多,且其中富含功能特化的叶绿体,且维管束间距缩并实现高效物质转运。当科学家试图在水稻中组成性表达玉米的golden2-like(zmglk)等调控因子时,虽能诱导维管束鞘细胞叶绿体发育,却无法重建完整的c4代谢模块——这暗示kranz结构的形成需要跨越细胞分化、代谢网络重构、维管系统改造等多层次协同进化。近年来的突破性研究揭示了c4进化并非简单的基因叠加:单子叶植物中c4通路至少独立进化了22次,每次都会"征用"不同的基因副本进行功能特化。例如高粱的pepc基因源自祖先基因组的四次复制事件,而玉米则通过表观遗传修饰对c4相关基因进行组织特异性调控。更令人震惊的是,某些藜科和禾本科植物甚至发展出单细胞c4系统,证明代谢区室化存在替代解决方案。这些发现为c4改造提供了多元化的设计思路。
2、因此,本领域迫切需要开发一种能够产生不围绕维管束的额外维管束鞘细胞,增加叶片中bs细胞与m细胞的比例的方法。
技术实现思路
1、本发明的目的就是提供一种能够产生不围绕维管束的额外维管束鞘细胞,增加叶片中bs细胞与m细胞的比例的方法。
2、本发明的第一方面提供了一种
shr基因或其编码蛋白的用途,用于选自下组的一种或多种用途:
3、(a)用于在单子叶植物中产生额外维管束鞘细胞;
4、(b)用于增加单子叶植物叶片中维管束鞘细胞比例;
5、(c)用于在单子叶植物中实现高效物质转运;
6、(d)增加单子叶植物叶片中维管束鞘细胞的数量;
7、(e)用于制备在单子叶植物中产生额外维管束鞘细胞;和/或增加单子叶植物叶片中维管束鞘细胞比例;和/或增加单子叶植物叶片中维管束鞘细胞的数量;和/或在单子叶植物中实现高效物质转运的试剂或组合物。
8、在另一优选例中,所述试剂或组合物还用于增加单子叶植物叶片中的内层维管束鞘细胞(bs细胞)与外层叶肉细胞(m细胞)的比例。
9、在另一优选例中,所述
shr基因或其编码蛋白来自于c4植物。
10、在另一优选例中,所述
shr基因或其编码蛋白来自选自下组的植物:禾本科。
11、在另一优选例中,所述
shr基因或其编码蛋白来自如下植物:玉米。
12、在另一优选例中,所述
shr基因来源于玉米(zmshr1,登录号:loc103636850、zmshr2,登录号:loc100383480)。
13、在另一优选例中,所述
shr基因或其编码蛋白来自玉米或其变体。
14、在另一优选例中,所述
shr基因包括
shr1和
shr2基因。
15、在另一优选例中,所述
shr基因包括野生型
shr基因和突变型
shr基因。
16、在另一优选例中,所述的突变型包括突变后编码蛋白的功能未发生改变(即功能与野生型编码蛋白相同或基本相同)和功能增强的突变形式。
17、在另一优选例中,所述的突变型
shr基因编码的多肽与野生型
shr基因所编码的多肽相同或基本相同。
18、在另一优选例中,所述的突变型
shr基因包括与野生型
shr基因相比,同源性≥80%(较佳地≥90%,更佳地≥95%,更佳地,≥98%或99%)的多核苷酸。
19、在另一优选例中,所述的突变型
shr基因包括在野生型
shr基因的5'端和/或3'端截短或添加1-60个(较佳地1-30,更佳地1-10个)核苷酸的多核苷酸。
20、在另一优选例中,所述shr1蛋白的氨基酸序列选自下组:
21、(i) 具有seq id no.1所示氨基酸序列的多肽;
22、(ii) 将如seq id no.1所示的氨基酸序列经过一个或几个(如1-10个)氨基酸残基的取代、缺失或添加而形成的,具有所述在单子叶植物中产生额外维管束鞘细胞;和/或增加单子叶植物叶片中维管束鞘细胞比例;和/或增加单子叶植物叶片中维管束鞘细胞的数量;和/或在单子叶植物中实现高效物质转运的活性的、由(i)衍生的多肽;或
23、(iii)氨基酸序列与seq id no.1所示氨基酸序列的同源性≥80%(较佳地≥90%,更佳地≥95%或≥98%),具有所述shr1活性的多肽。
24、在另一优选例中,所述
shr1基因的核苷酸序列选自下组:
25、(a) 编码如seq id no.1所示多肽的多核苷酸;
26、(b) 序列如seq id no.2所示的多核苷酸;
27、(c) 核苷酸序列与seq id no.2所示序列的同源性≥75%(较佳地≥85%,更佳地≥90%或≥95%)的多核苷酸;
28、(d) 在seq id no.2所示多核苷酸的5'端和/或3'端截短或添加1-60个(较佳地1-30,更佳地1-10个)核苷酸的多核苷酸;
29、(e) 与(a)-(d)任一所述的多核苷酸互补的多核苷酸。
30、在另一优选例中,所述shr2蛋白的氨基酸序列选自下组:
31、(i) 具有seq id no.5所示氨基酸序列的多肽;
32、(ii) 将如seq id no.5所示的氨基酸序列经过一个或几个(如1-10个)氨基酸残基的取代、缺失或添加而形成的,具有所述在单子叶植物中产生额外维管束鞘细胞;和/或增加单子叶植物叶片中维管束鞘细胞比例;和/或增加单子叶植物叶片中维管束鞘细胞的数量;和/或在单子叶植物中实现高效物质转运的活性的、由(i)衍生的多肽;或
33、(iii)氨基酸序列与seq id no.5所示氨基酸序列的同源性≥80%(较佳地≥90%,更佳地≥95%或≥98%),具有所述shr2活性的多肽。
34、在另一优选例中,所述
shr2基因的核苷酸序列选自下组:
35、(a) 编码如seq id no.5所示多肽的多核苷酸;
36、(b) 序列如seq id no.4所示的多核苷酸;
37、(c) 核苷酸序列与seq id no.4所示序列的同源性≥75%(较佳地≥85%,更佳地≥90%或≥95%)的多核苷酸;
38、(d) 在seq id no.4所示多核苷酸的5'端和/或3'端截短或添加1-60个(较佳地1-30,更佳地1-10个)核苷酸的多核苷酸;
39、(e) 与(a)-(d)任一所述的多核苷酸互补的多核苷酸。
40、在另一优选例中,所述的组合物包括农用组合物。
41、在另一优选例中,所述组合物包含(a)
shr基因或其编码蛋白;和(b)农学上可接受的载体。
42、在另一优选例中,所述组合物或制剂的剂型包括溶液剂。
43、在另一优选例中,所述单子叶植物包括c3植物。
44、在另一优选例中,所述单子叶植物包括禾本科。
45、在另一优选例中,所述单子叶植物包括水稻。
46、本发明第二方面提供了一种组合物,包括:
47、(a)
shr基因或其编码蛋白;
48、(b) 农学上可接受的载体。
49、在另一优选例中,所述
shr基因包括shr1和shr2基因。
50、在另一优选例中,所述
shr基因或其编码蛋白来自如下植物:玉米。
51、在另一优选例中,所述
shr基因来源于玉米(zmshr1,登录号:loc103636850、zmshr2,登录号:loc100383480)。
52、在另一优选例中,所述组合物包括农用组合物。
53、在另一优选例中,所述组合物的剂型选自下组:溶液剂、乳剂、混悬剂、粉剂、泡沫剂、糊剂、颗粒剂、气雾剂、或其组合。
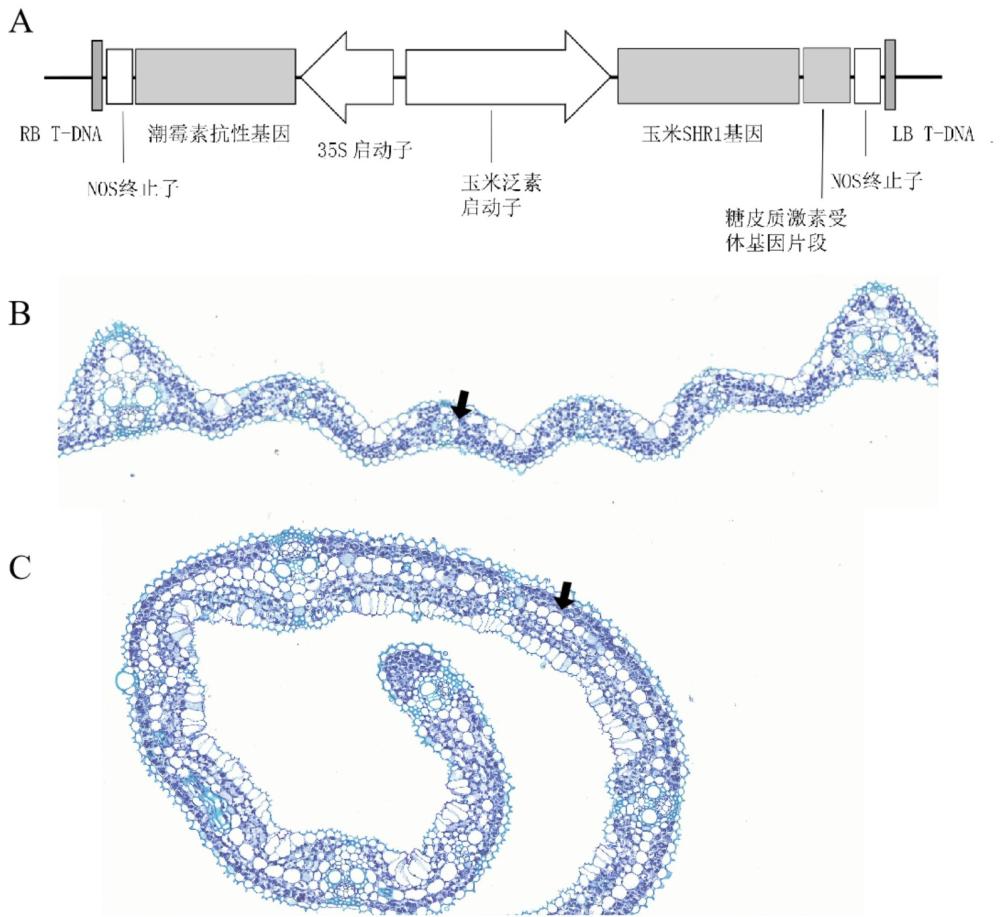
54、在另一优选例中,所述组合物中,含有0.0001-10wt%,较佳地0.1-1wt%的组分(a),以所述组合物的总重量计。
55、在另一优选例中,所述组合物还包括其他用于在单子叶植物中产生额外维管束鞘细胞;和/或增加单子叶植物叶片中维管束鞘细胞比例;和/或增加单子叶植物叶片中维管束鞘细胞的数量;和/或在单子叶植物中实现高效物质转运的物质。
56、在另一优选例中,所述其他用于在单子叶植物中产生额外维管束鞘细胞;和/或增加单子叶植物叶片中维管束鞘细胞比例;和/或增加单子叶植物叶片中维管束鞘细胞的数量;和/或在单子叶植物中实现高效物质转运的物质包括:地塞米松。
57、本发明第三方面提供了一种本发明第二方面所述的组合物的用途,用于选自下组的一种或多种用途:
58、(a)用于在单子叶植物中产生额外维管束鞘细胞;
59、(b)用于增加单子叶植物叶片中维管束鞘细胞比例;
60、(c)用于在单子叶植物中实现高效物质转运;
61、(d)增加单子叶植物叶片中维管束鞘细胞的数量。
62、本发明第四方面提供了一种(a)用于在单子叶植物中产生额外维管束鞘细胞;和/或(b)用于增加单子叶植物叶片中维管束鞘细胞比例;和/或(c)用于在单子叶植物中实现高效物质转运和/或(d)增加单子叶植物叶片中维管束鞘细胞的数量的方法,包括步骤:
63、提高所述单子叶植物中
shr基因或其编码蛋白的表达量和/或活性。
64、在另一优选例中,所述
shr基因或其编码蛋白来自于c4植物。
65、在另一优选例中,所述
shr基因包括shr1和shr2基因。
66、在另一优选例中,所述
shr基因来源于玉米(zmshr1,登录号:loc103636850、zmshr2,登录号:loc100383480)。
67、在另一优选例中,所述
shr基因或其编码蛋白来自玉米或其变体。
68、在另一优选例中,所述方法包括向单子叶植物中导入外源的
shr基因或其编码蛋白。
69、在另一优选例中,所述方法包括步骤:
70、(i) 提供一单子叶植物或单子叶植物细胞;和
71、(ii) 将
shr基因序列导入所述单子叶植物或单子叶植物细胞,从而获得转基因的单子叶植物或单子叶植物细胞。
72、在另一优选例中,所述方法包括步骤:
73、(a) 提供携带
shr基因序列的表达载体的农杆菌;
74、(b) 将单子叶植物细胞或组织或器官与步骤(a)中的农杆菌接触,从而使
shr的基因序列转入所述植物细胞,并且整合到所述植物细胞的染色体上;
75、(c) 选择已转入
shr基因序列的植物细胞或组织或器官;和
76、(d) 将步骤(c)中的植物细胞或组织或器官再生为植株。
77、在另一优选例中,所述植物组织或植物细胞中
shr基因或其编码蛋白的表达量或活性提高了≥50%。
78、在另一优选例中,所述方法包括步骤:
79、(a)将外源的构建物导入单子叶植物细胞,其中所述的构建物含有外源的
shr基因序列,从而获得导入外源构建物的植物细胞;
80、 (b)将上一步骤获得的所述导入外源构建物的植物细胞,再生成植株:和
81、(c)任选地对所述再生的植株进行鉴定,从而获得在单子叶植物中产生额外维管束鞘细胞;和/或增加单子叶植物叶片中维管束鞘细胞比例;和/或增加单子叶植物叶片中维管束鞘细胞的数量;和/或在单子叶植物中实现高效物质转运的植物。
82、在另一优选例中,所述外源的
shr基因序列还包含与orf序列操作性连接的启动子和/或终止子。
83、在另一优选例中,所述的启动子选自下组:组成型启动子、组织特异性启动子、诱导型启动子、和强启动子。
84、在另一优选例中,所述的组成性启动子包括泛素启动子。
85、在另一优选例中,所述启动子为组成性启动子时,所述外源的
shr基因序列还与核转录因子连接。
86、在另一优选例中,所述核转录因子包括糖皮质激素受体(gr)。
87、在另一优选例中,所述核转录因子包括野生型的核转录因子和突变型的核转录因子。
88、本发明第五方面提供了一种制备基因工程的植物组织或植物细胞的方法,包括步骤:
89、提高单子叶植物组织或植物细胞中的
shr基因或其编码蛋白的表达量和/或活性,从而获得基因工程的植物组织或植物细胞。
90、在另一优选例中,所述的基因工程包括转基因。
91、本发明第六方面提供了一种制备性状改良的单子叶植物的方法,包括步骤:
92、将本发明第五方面所述方法制备的基因工程的植物组织或植物细胞再生为植物体,从而获得性状改良的植物。
93、在另一优选例中,所述的性状改良包括:
94、(a)在单子叶植物中产生额外维管束鞘细胞;和/或
95、(b)增加单子叶植物叶片中维管束鞘细胞比例;和/或
96、(c)在单子叶植物中实现高效物质转运;和/或
97、(d)增加单子叶植物叶片中维管束鞘细胞的数量。
98、本发明第七方面提供了一种基因工程植株,所述植株中导入
shr基因或其编码蛋白或所述的植株是用本发明第六方面所述的方法制备的。
99、应理解,在本发明范围内中,本发明的上述各技术特征和在下文(如实施例)中具体描述的各技术特征之间都可以互相组合,从而构成新的或优选的技术方案。限于篇幅,在此不再一一累述。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com