
一株重组工程化醛脱氢酶菌株在合成5-羟甲基-2-呋喃甲酸中的应用
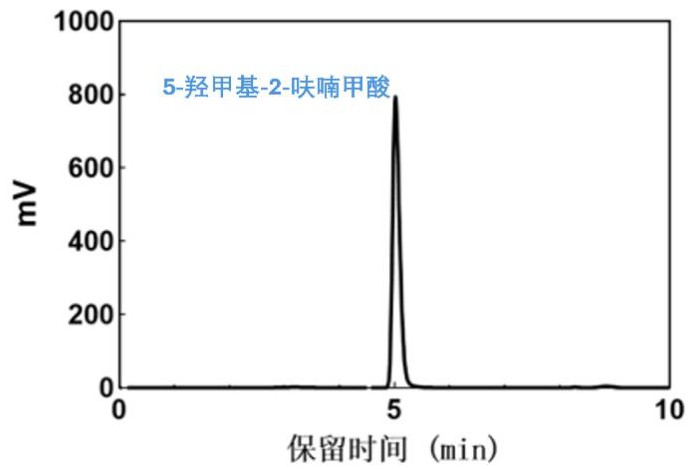
本发明涉及一株重组工程化醛脱氢酶菌株在合成5-羟甲基-2-呋喃甲酸中的应用,属于生物催化与酶工程。
背景技术:
1、随着化石资源的不断消耗以及全球气候变化、环境污染等问题日益突出,以可再生生物质资源替代传统化石资源生产燃料、材料和高附加值化学品受到广泛关注。木质纤维素生物质来源广泛,主要由纤维素、半纤维素和木质素组成,具有储量丰富、可再生和来源广泛等特点,是发展生物基化学品和生物基材料的重要原料。通过生物炼制及化学转化等方式,可将木质纤维素中的糖类组分进一步转化为多种平台化合物,为高附加值化学品的绿色制造提供原料基础。
2、5-羟甲基糠醛(5-hydroxymethylfurfural,hmf)是一种重要的生物质基平台化合物,可由葡萄糖、果糖以及木质纤维素来源的六碳糖经脱水反应制得。hmf分子中同时含有醛基、羟甲基和呋喃环等活性结构,可通过选择性氧化、还原、胺化和缩合等反应进一步制备多种高附加值呋喃类衍生物,在生物基材料、精细化学品、医药中间体及聚合物单体等领域具有较大的应用潜力。
3、5-羟甲基-2-呋喃甲酸(5-hydroxymethyl-2-furoic acid,hmfca)是hmf醛基选择性氧化得到的一种重要呋喃单羧酸化合物。hmfca分子中同时含有羟甲基、羧基和呋喃环等官能团,具有较高的化学反应活性,可进一步通过氧化、酯化、酰胺化等反应制备多种呋喃类衍生物,因此可作为多种高附加值化学品和功能材料合成的重要中间体。例如,hmfca中的羟甲基进一步氧化可生成5-甲酰基-2-呋喃甲酸(5-formyl-2-furoic acid,ffca),并进一步转化为2,5-呋喃二甲酸(2,5-furandicarboxylic acid,fdca)。fdca是合成聚呋喃二甲酸乙二醇酯(polyethylene furanoate,pef)等生物基聚合材料的重要单体。因此,hmfca既是一种具有潜在应用价值的生物质基呋喃羧酸,也是hmf进一步高值化转化的重要中间产物。
4、目前,hmfca的制备方法主要包括化学催化氧化法和生物催化氧化法。传统化学催化方法通常采用贵金属、过渡金属或其他氧化催化体系实现hmf醛基的氧化,在一定程度上能够获得hmfca。然而,由于hmf分子同时含有醛基和羟甲基,在氧化过程中容易发生羟甲基进一步氧化以及其他副反应,因此对催化体系的化学选择性要求较高。此外,部分化学催化方法还存在反应条件较为苛刻、催化剂成本较高、后处理过程复杂以及环境负荷较大等问题。
5、相较于传统化学催化,生物催化具有反应条件温和、化学选择性高、环境友好等特点,尤其适用于结构中含有多个活性官能团且在苛刻条件下易发生副反应的生物质基呋喃化合物。因此,近年来利用微生物细胞或分离酶催化hmf及其他呋喃醛类化合物选择性氧化制备呋喃羧酸受到广泛关注。目前已有脂肪酶、单加氧酶、氧化酶、脱氢酶等多种酶被用于相关呋喃羧酸的生物催化合成,但现有酶催化体系仍存在催化活性不足、底物耐受性较差、高浓度底物条件下转化效率降低以及部分体系依赖较高用量辅酶或氧化剂等问题,限制了其进一步应用。
6、醛脱氢酶(aldehyde dehydrogenase,aldh)是一类能够催化醛基选择性氧化生成相应羧酸的氧化还原酶。aldh通常以nad+或nadp+为辅酶,可对醛类底物进行选择性氧化,因此在hmf醛基定向氧化生成hmfca方面具有较好的应用潜力。与部分依赖强氧化剂或过氧化物的催化体系相比,aldh催化具有反应条件温和、选择性较高等优点,有利于减少hmf羟甲基的非目标氧化,从而提高hmfca的生成选择性。
7、但是,在aldh催化hmf氧化过程中,仍普遍存在天然酶对hmf等呋喃醛类底物催化活性有限、底物耐受性不足以及高底物浓度条件下催化效率降低等问题。同时,aldh催化过程中需要消耗氧化型辅酶nad+并生成nadh,若缺乏有效的辅酶再生体系,则需要加入较高浓度的nad+,不仅增加反应成本,而且nadh的持续积累还可能影响反应体系的氧化还原平衡,从而限制反应持续进行。
8、目前,针对aldh催化hmf选择性氧化制备hmfca的酶分子改造以及高效辅酶再生体系构建仍有进一步优化空间。因此,如何获得具有较高催化活性和底物耐受性的醛脱氢酶,并构建高效、稳定的nad+再生体系,从而在较高hmf底物浓度条件下实现hmfca的高效、高选择性合成,是本领域亟需解决的技术问题。
技术实现思路
1、本发明以醛脱氢酶
sdaldh为模板酶,通过基于酶活性中心微环境的理性设计与半理性设计,获得了一株具有优异催化性能的重组工程化醛脱氢酶菌株。
2、通过对关键氨基酸位点进行工程化改造,获得了催化性能显著提升的突变体l173i/v301c,并系统研究了该工程化醛脱氢酶的酶学性质及催化特性,确定了其催化5-羟甲基糠醛(hmf)选择性氧化生成5-羟甲基-2-呋喃甲酸(hmfca)的适宜反应条件。同时,通过构建nadh氧化酶介导的nad+辅酶原位再生体系,并结合反应过程中的动态ph调控,有效维持了反应体系的辅酶循环及催化活性,显著提高了高浓度hmf条件下的转化效率。在优化条件下,以300 mm hmf为底物进行催化反应,hmfca产率可达到99.3%,实现了hmfca的高底物浓度、高选择性生物催化合成。本发明建立了一种高效、绿色的hmfca生物制造方法,可有效降低辅酶用量并提高底物处理能力,为生物质基平台化合物hmf的高值化利用以及hmfca的规模化、工业化生产提供了良好的技术基础。
3、本发明提供了醛脱氢酶突变体,所述突变体为,将醛脱氢酶的第173位、301位中的至少一个进行突变后得到的;所述醛脱氢酶为氨基酸序列如seq id no.1所示的醛脱氢酶,或与氨基酸序列如seq id no.1所示的序列具有至少60%、至少70%、至少80%、至少90%、至少91%、至少92%、至少93%、至少94%、至少95%、至少96%、至少97%、至少98%、或至少99%、但小于100%序列同一性的醛脱氢酶。
4、在本发明的一种实施方式中,所述醛脱氢酶突变体包含位点173/301位置的一个或者多个氨基酸取代。其中173位氨基酸替代为i,301位点替代为c。
5、在本发明的一种实施方式中,所述醛脱氢酶突变体为,将氨基酸序列如seq idno:1所示的醛脱氢酶的第173位的亮氨酸突变为异亮氨酸;
6、或将氨基酸序列如seq id no:1所示的醛脱氢酶的第301位缬氨酸突变为半胱氨酸。
7、在本发明的一种实施方式中,所述醛脱氢酶突变体的催化效率是以5-羟甲基糠醛为底物进行全细胞反应,经hplc检测其产物峰面积衡量的。
8、本发明提供了一种醛脱氢酶突变体,所述醛脱氢酶突变体为,将氨基酸序列如seqid no.1所示的醛脱氢酶进行突变后得到的突变体:l173i,v301c或l173i/v301c。
9、在本发明的一种实施方式中,将氨基酸序列如seq id no.1所示的醛脱氢酶的第173位的亮氨酸突变为异亮氨酸得到的,命名为l173i;
10、或所述突变体为,将氨基酸序列如seq id no.1所示的醛脱氢酶的第301位的缬氨酸突变为半胱氨酸得到的,命名为v301c;
11、或所述突变体为,将氨基酸序列如seq id no.1所示的醛脱氢酶的第173位的亮氨酸突变为异亮氨酸,第301位的缬氨酸突变为半胱氨酸得到的,命名为l173i/v301c;
12、本发明还提供了编码上述突变体的基因。
13、本发明还提供了一种携带所述突变体,或携带上述基因的重组载体。
14、在本发明的一种实施方式中,所述重组载体是以pet系列载体如pet-28a质粒、pet-21a质粒为表达载体。
15、在本发明的一种实施方式中,所述重组载体以pet28a质粒、pet21a质粒为表达载体。
16、在本发明的一种实施方式中,所述载体选自dna载体,rna载体,质粒,转座子载体,crispr/cas9载体,或病毒载体。
17、在本发明的一种实施方式中,所述载体为pet-duet、pacyc-duet、pcdf-duet或prsf-duet。
18、本发明还提供了一种表达上述突变体,携带上述基因,或携带上述重组载体的重组细胞。
19、在本发明的一种实施方式中,所述重组细胞以细菌或真菌为表达宿主。
20、在本发明的一种实施方式中,所述重组细胞以大肠杆菌为表达宿主。
21、在本发明的一种实施方式中,所述重组细胞是以原核微生物或真核微生物为表达宿主。
22、在本发明的一种实施方式中,所述的真核微生物选自酿酒酵母、毕赤酵母和马克斯克鲁维酵母中的一种或多种。
23、在本发明的一种实施方式中,所述的原核微生物选自大肠杆菌、枯草芽孢杆菌、谷氨酸棒杆菌、沙门氏菌和链霉菌中的一种或多种。
24、本发明提供了携带醛脱氢酶或其突变体的重组载体。
25、在本发明的一种实施方式中,所述重组载体以pet28a、pet21a为表达载体。
26、本发明还提供了工程化醛脱氢酶的酶学性质。包括最适温度,ph,温度稳定性,ph稳定性以及金属离子依赖性。
27、本发明还提供了一种含有所述醛脱氢酶突变体的重组酶催化剂,所述重组酶催化剂是以下形式中的任意一种:
28、(1)培养含有所述醛脱氢酶突变体的重组表达转化体,分离含有重组醛脱氢酶突变体酶的转化体细胞;
29、(2)培养含有所述醛脱氢酶突变体的重组表达转化体,分离含有重组醛脱氢酶突变体酶的转化体细胞,对含有所述重组醛脱氢酶突变体酶的转化体细胞进行破碎,获得的细胞破碎液;
30、(3)培养含有所述醛脱氢酶突变体的重组表达转化体,分离含有重组醛脱氢酶突变体酶的转化体细胞,对含有所述重组醛脱氢酶突变体酶的转化体细胞进行破碎,获得的细胞破碎液,将所述重组醛脱氢酶突变体酶的细胞破碎液经冷冻干燥而得到的冻干粉;
31、(4)培养含有所述醛脱氢酶突变体的重组表达转化体,分离含有重组醛脱氢酶突变体酶的转化体细胞,对含有所述重组醛脱氢酶突变体酶的转化体细胞进行破碎,获得的细胞破碎液,将所述重组醛脱氢酶突变体酶的细胞破碎液进行纯化后获得的纯酶液。
32、本发明还提供了一种提高野生型醛脱氢酶酶活、热稳定性或催化活性的方法,所述方法为,将氨基酸序列如seq id no:1所示的醛脱氢酶的第173位的亮氨酸突变为异亮氨酸;
33、或将氨基酸序列如seq id no:1所示的醛脱氢酶的第301位缬氨酸突变为半胱氨酸。
34、本发明还提供了一种重组大肠杆菌,所述大肠杆菌表达了所述的醛脱氢酶突变体。
35、在本发明的一种实施方式中,所述重组大肠杆菌还表达了nadh氧化酶nox;
36、在本发明的一种实施方式中,所述nadh氧化酶的氨基酸序列如seq id no.3所示。
37、本发明还提供了一种制备5-羟甲基-2-呋喃甲酸的方法,所述方法为,以5-羟甲基糠醛为底物,采用氨基酸序列如seq id no.4所示的醛脱氢酶或上述重组大肠杆菌全细胞转化制备得到5-羟甲基-2-呋喃甲酸。
38、在本发明的一种实施方式中,所述5-羟甲基糠醛的结构式为:
39、
40、在本发明的一种实施方式中,所述5-羟甲基-2-呋喃甲酸的结构式为:
41、
42、在本发明的一种实施方式中,所述5-羟甲基-2-呋喃甲酸的获得以5-羟甲基糠醛为底物,经重组工程化醛脱氢酶全细胞生物催化获得。
43、所述反应通式如式1所示:
44、
45、在本发明的一种实施方式中,所述5-羟甲基糠醛的添加量为:50~300 mm,所述重组细胞或所述重组大肠杆菌的添加量为20~40 g/l。
46、在本发明的一种实施方式中,所述反应体系中,还含有烟酰胺腺嘌呤二核苷酸,所述烟酰胺腺嘌呤二核苷酸的添加量为:0.25~20 mm;
47、在本发明的一种实施方式中,反应条件为30℃,反应4~12 h。
48、在本发明的一种实施方式中,所述醛脱氢酶的全细胞催化体系包含但不限于5-羟甲基糠醛100 mm,烟酰胺腺嘌呤二核苷酸(nad+)20 mm,全细胞40 mg/ml。反应缓冲液为200mm的磷酸盐溶液 (ph 7.5),反应时间为8小时,反应温度为30℃。
49、本发明还提供了一种耦合辅酶再生系统的反应体系,所述辅酶再生系统是通过醛脱氢酶和nadh氧化酶(nox)的偶联来实现的,其中醛脱氢酶主要用于催化5-羟甲基糠醛(hmf)的醛基选择性氧化生成5-羟甲基-2-呋喃甲酸(hmfca),nadh氧化酶主要用于将醛脱氢酶催化过程中生成的nadh氧化为nad+,从而实现辅因子nadh/nad+的循环再生,维持醛脱氢酶的持续催化活性并降低外源nad+的使用量。其反应的结构通式如下:
50、
51、在本发明的一种实施方式中,所述两种酶的组合方式为:将工程化醛脱氢酶编码基因和nadh氧化酶编码基因分别构建至两个相容的表达载体中,随后将两个重组载体共同转化至感受态细胞
e.colibl21(de3)中,获得能够同时表达工程化醛脱氢酶和nadh氧化酶的重组大肠杆菌。
52、在本发明的一种优选实施方式中,所述工程化醛脱氢酶为l173i/v301c突变体。所得重组细胞可直接作为全细胞生物催化剂,用于催化5-羟甲基糠醛生成5-羟甲基-2-呋喃甲酸,并通过nadh氧化酶实现胞内nadh/nad+循环再生。
53、本发明还提供了一种优化的高效合成5-羟甲基-2-呋喃甲酸(hmfca)的反应体系。所述全细胞催化体系包含但不限于5-羟甲基糠醛(hmf)、nad+以及同时表达工程化醛脱氢酶和nadh氧化酶的重组细胞。
54、在本发明的一种实施方式中,所述工程化醛脱氢酶为l173i/v301c突变体,所述5-羟甲基糠醛的浓度为50-350 mm,例如100-300 mm。
55、在本发明的一种优选实施方式中,所述5-羟甲基糠醛的浓度为300 mm。
56、所述反应体系中添加nad+作为醛脱氢酶催化所需的辅因子,并通过nadh氧化酶(nox)将反应过程中生成的nadh重新氧化为nad+,实现nadh/nad+的原位循环再生,从而降低外源nad+的使用量并维持醛脱氢酶的持续催化活性。
57、在本发明的一种实施方式中,在反应过程中采用动态ph调控方式维持反应体系处于适宜的ph范围;随着hmf持续氧化生成hmfca,通过向反应体系中补加碱性溶液调节反应体系ph,以减缓产物积累引起的体系酸化对催化反应的影响。
58、在本发明的一种优选实施方式中,采用ph-stat方式对反应体系进行动态ph调控,并将nadh氧化酶介导的nad+再生体系与工程化醛脱氢酶催化体系进行耦合,实现高浓度hmf向hmfca的高效选择性转化。
59、在优化的反应条件下,以300 mm hmf为底物,采用表达工程化醛脱氢酶l173i/v301c并耦合nadh氧化酶辅酶再生体系的重组细胞进行全细胞催化,结合动态ph调控,hmfca产率可达到99.3%。
60、本发明还提供了上述醛脱氢酶突变体,或上述重组细胞或上述重组大肠杆菌在制备5-羟甲基-2-呋喃甲酸,或在制备含有5-羟甲基-2-呋喃甲酸产品中的应用。
61、在本发明的一种实施方式中,所述产品为化学品。
62、有益效果
63、(1)本发明获得了催化性能显著提高的工程化醛脱氢酶突变体。
64、本发明以醛脱氢酶
sdaldh为出发酶,通过对活性中心关键氨基酸位点进行理性设计和定点突变,获得l173i、v301c及l173i/v301c等突变体。其中,l173i/v301c双突变体对5-羟甲基糠醛(hmf)表现出明显改善的酶促动力学性能。野生型
sdaldh的
km、
kcat和
kcat/
km分别为5.814 mm、12.98 s-¹和2.23 mm-¹·s-¹,而l173i/v301c突变体的
km降低至2.174mm,
kcat提高至27.33 s-¹,
kcat/km提高至12.57 mm-¹·s-¹,表明该双突变同时提高了对hmf的表观底物亲和力和催化周转能力,从而增强了hmf向5-羟甲基-2-呋喃甲酸(hmfca)的催化转化性能。
65、(2)本发明提高了工程化醛脱氢酶对反应条件的适应能力。
66、野生型
sdaldh的最适反应温度约为40℃,l173i/v301c突变体的最适反应温度提高至约50℃,且突变体在50-70℃范围内仍能够保持较高的相对催化活性。此外,l173i/v301c突变体在中性条件下保持较高催化活性的同时,在偏碱性条件下表现出较好的活性保持能力,表明该双突变对酶的温度响应及ph适应性产生了有利影响,为后续全细胞催化条件的优化提供了良好的酶学基础。
67、(3)本发明通过引入nadh氧化酶nox实现了nad+的原位循环再生,提高了全细胞催化效率。
68、在以100 mm hmf为底物的全细胞催化体系中,仅表达l173i/v301c突变体醛脱氢酶的重组大肠杆菌催化4 h后,hmfca产率达到73.2%,对应hmfca浓度约为73.2 mm,即约10.40 g/l;在此基础上引入nadh氧化酶nox后,双酶全细胞催化体系的hmfca产率进一步提高至79.6%,对应hmfca浓度约为79.6 mm,即约11.31 g/l,较未引入nox的体系提高6.4个百分点。
69、上述结果表明,nox能够促进醛脱氢酶催化过程中生成的nadh重新氧化为nad+,提高nad+的循环利用效率,有利于维持醛脱氢酶的持续氧化反应。
70、(4)本发明通过辅酶再生与动态ph调控相结合,提高了高底物浓度条件下的hmf转化能力。
71、针对hmf氧化过程中nad+持续消耗以及hmfca生成导致反应体系逐渐酸化的问题,本发明将nox介导的nad+再生体系与动态ph调控策略相结合,通过ph-stat方式维持适宜的反应环境,从辅酶供给和反应体系酸碱平衡两个方面共同保障醛脱氢酶的持续催化能力。在高底物负载条件下,该全细胞催化体系能够有效处理300 mm hmf,最终hmfca产率达到99.3%,显示出良好的高浓度底物转化能力。
72、(5)本发明构建的全细胞生物催化体系具有良好的绿色生物制造优势。
73、本发明以重组微生物全细胞作为生物催化剂,在较温和的温度和ph条件下即可实现hmf醛基向hmfca羧基的定向氧化,无需使用贵金属催化剂及高温、高压等苛刻反应条件。同时,通过nox介导的nad+原位再生提高了辅酶利用效率,并通过动态ph调控提高了高浓度底物条件下的持续催化能力。因此,本发明具有反应条件温和、催化效率高、底物负载量高、产物产率高以及环境友好等特点,为生物质平台化合物hmf的高值化利用及hmfca的绿色生物制造提供了新的技术方案。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com