
包含降低的β-氧化表型的重组微生物菌株及其方法与流程
本发明属于生物,涉及可用于基于过氧化物酶体生物合成因子(pex)蛋白的破坏操纵真核生物体中的β-氧化的方法。更特别地,本发明涉及经基因工程化以具有降低或消除的β-氧化的微生物,如酵母。
背景技术:
1、黄葵内酯、一种或多种异黄葵内酯、十六内酯及无数相关分子是具有优异扩散特性和优良麝香特征的大环分子。这些香料分子可以由c16ω-羟基化的(ω-羟基)脂肪酸产生。目前,大多数ω-羟基脂肪酸衍生物是由基于石油的起始材料化学制备的或通过石蜡的生物转化制备的。用于生产这些化合物所需的化学方法涉及使用有害有机试剂,其能耗高且环境成本高昂。
2、需要生物技术方法来产生具有麝香特征的所提及的分子,而没有所提及的化学过程的缺点。
3、为了了解工业相关微生物中可能的生物技术方法,需要概述酵母中的某些代谢过程。
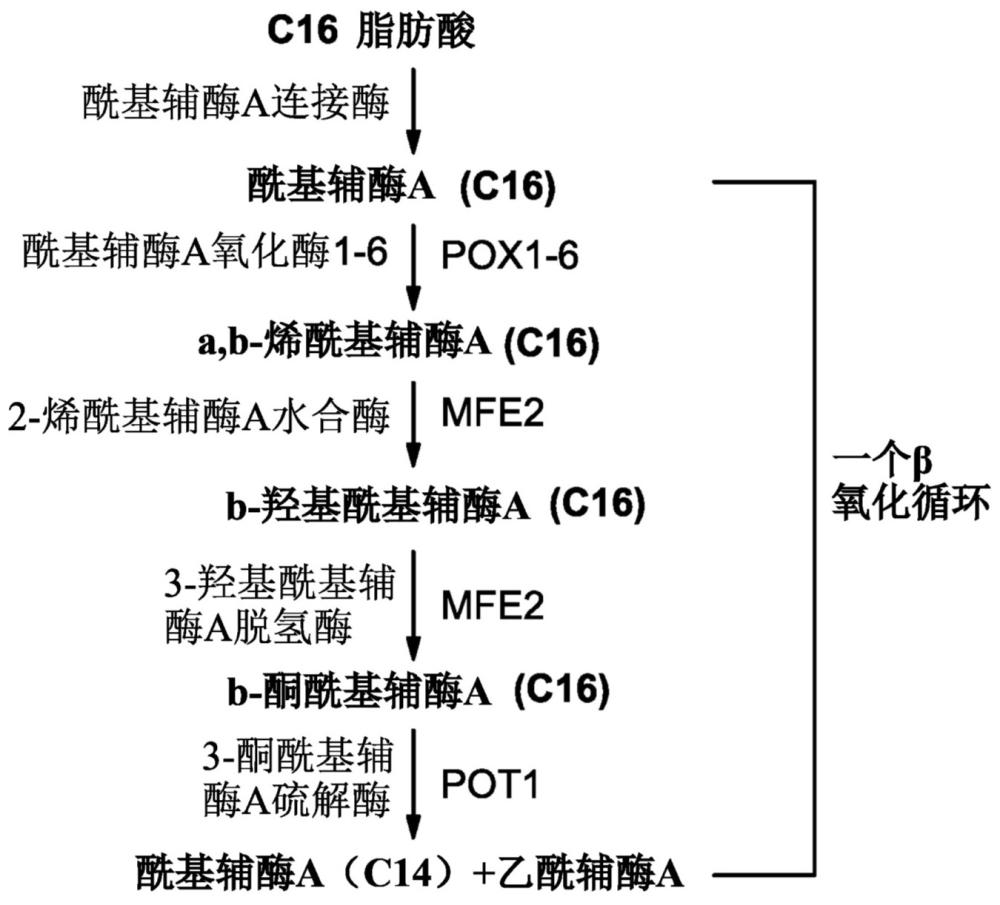
4、β氧化(β-氧化)是分解代谢过程,通过该过程,脂肪酸分子被分解以产生乙酰辅酶a(其进入柠檬酸循环),以及nadh和fadh2(其是电子传输链中使用的辅酶)。例如,从棕榈酸(c16:0)开始,一个β-氧化循环的总体反应(图1)如下:
5、c16-酰基辅酶a + fad + nad+ + h2o + coa→c14-酰基辅酶a + fadh2 + nadh+ h+ + 乙酰辅酶a
6、在酵母解脂耶氏酵母(yarrowia lipolytica)中,β-氧化主要发生在过氧化物酶体中,这与大多数其他真核生物体不同,后者的β-氧化发生在线粒体中。过氧化物酶体是在所有真核细胞中普遍存在的细胞器。有超过30种已知的过氧化物酶体蛋白,也称为过氧化物酶体素(pex),参与过氧化物酶体生物合成和/或参与通过atp水解的方式通过过氧化物酶体膜输入细胞蛋白的过程。编码这些蛋白质中的任一种的基因的首字母缩写是“pex基因”。
7、解脂耶氏酵母是可以在细胞内产生大量油的产油酵母,其中解脂耶氏酵母细胞具有强β-氧化能力,并且可以使用脂肪酸或油作为其生长的唯一碳源。然而,解脂耶氏酵母的强β-氧化能力(图1)将大多数脂肪酸底物转化为二氧化碳,导致产生的油量有限。
8、因此,需要用于生产大环香料分子的更安全且更环境友好的方法,这些大环香料分子理想地使用可再生原料如植物油或脂肪酸并且比常规化学方法更具成本效益。
9、需要经修饰的酵母,如经修饰的耶氏酵母属物种,例如经修饰的解脂耶氏酵母,与亲本非经修饰的酵母相比,经修饰的酵母被修饰为具有降低的、甚至封闭的脂肪酸β-氧化途径。
10、需要适用于生产二羧酸的经修饰的酵母细胞。需要与亲本未经修饰的酵母细胞相比能够增加二羧酸产生的经修饰的酵母细胞。
11、需要适用于产生羟基脂肪酸的经修饰的酵母细胞。需要与亲本未经修饰的酵母细胞相比能够增加羟基脂肪酸产生的经修饰的酵母细胞。
12、本公开的目的是满足这些需求中的全部或部分。
技术实现思路
1、在一个实例中,公开了与在其他方面相同的(等基因)亲本酵母细胞的β-氧化活性相比具有降低的β-氧化活性的经修饰的酵母细胞,其中经修饰的细胞包含降低或消除由一个或多个内源过氧化物酶体生物合成因子(pex)基因编码的一种或多种天然过氧化物酶体生物合成因子(pex)蛋白的表达、活性和/或功能的遗传修饰。
2、在一个实例中,公开了与未经修饰的亲本酵母细胞的β-氧化活性相比具有降低的β-氧化活性的经修饰的酵母细胞,其中经修饰的细胞包含降低或消除由一种或多种内源过氧化物酶体生物合成因子(pex)基因编码的一种或多种天然过氧化物酶体生物合成因子(pex)蛋白的表达、活性和/或功能的遗传修饰。
3、在一个实例中,公开了具有降低的β-氧化活性的经修饰的酵母细胞,与未经修饰的亲本酵母细胞相比,该经修饰的酵母具有降低的在富含油酸的培养基中生长的能力,其中经修饰的酵母细胞包含降低或消除由一个内源过氧化物酶体生物合成因子(pex)基因编码的一种天然过氧化物酶体生物合成因子(pex)蛋白的表达、活性和/或功能的遗传修饰。
4、在一个实例中,公开了具有降低的β-氧化活性的经修饰的酵母细胞,其中与在其他方面相同的(等基因)亲本酵母细胞的β-氧化活性相比,产生较少的乙酰辅酶a,其中经修饰的细胞包含降低或消除由一个或多个内源过氧化物酶体生物合成因子(pex)基因编码的一种或多种天然过氧化物酶体生物合成因子(pex)蛋白的表达、活性和/或功能的遗传修饰。
5、在一个实例中,公开了一种提高酵母细胞中至少一种多不饱和脂肪酸相对于总脂肪酸重量百分比的方法,该方法包括对酵母细胞进行遗传修饰以降低或消除由所述酵母细胞的一种或多种内源过氧化物酶体生物合成因子(pex)基因编码的一种或多种天然过氧化物酶体生物合成因子(pex)蛋白的表达、活性和/或功能。
6、该遗传修饰导致β-氧化活性降低。
7、在一些实施例中,经修饰的酵母细胞可以包含多于一种减少或消除由内源过氧化物酶体生物合成因子(pex)基因编码的多于一种天然过氧化物酶体生物合成因子(pex)蛋白的表达、活性和/或功能的遗传修饰。
8、在一个实例中,公开了一种提高具有降低的β-氧化活性的经修饰的酵母细胞中至少一种多不饱和脂肪酸相对于总脂肪酸重量百分比的方法,其中与在其他方面相同的(等基因)亲本酵母细胞的β-氧化活性相比,经修饰的酵母细胞产生更少的乙酰辅酶a,该方法提供经修饰的酵母细胞,其包含通过降低或消除由一个或多个内源过氧化物酶体生物合成因子(pex)基因编码的一种或多种天然过氧化物酶体生物合成因子(pex)蛋白的表达、活性和/或功能的遗传修饰;以及使经修饰的酵母细胞生长,以使得与在其他方面相同的(等基因)亲本酵母细胞的总脂质级分或油级分中至少一种多不饱和脂肪酸相对于总脂肪酸的重量百分比相比,经修饰酵母细胞的总脂质级分或油级分中至少一种多不饱和脂肪酸相对于总脂肪酸的重量百分比得以提高。
9、在一些实施例中,降低或消除一种或多种天然pex蛋白的表达、活性和/或功能的遗传修饰可以包括破坏、部分缺失、完全缺失、突变和/或下调该一种或多种内源pex基因。
10、在一些实施例中,该一种或多种天然pex蛋白可以选自由pex3蛋白、pex5蛋白和pex 20蛋白组成的组。
11、在一些实施例中,编码天然pex蛋白的一种或多种基因可以包含pex3基因。
12、在一些实施例中,编码天然pex蛋白的一种或多种基因可以包含pex5基因。
13、在一些实施例中,编码天然pex蛋白的一种或多种基因可以包含pex20基因。
14、在一些实施例中,消除或降低该一种或多种天然pex蛋白的活性和/或功能的遗传修饰可以包括破坏、部分缺失和/或突变编码pex蛋白atp结合位点、pex蛋白跨膜(tm)结构域或pex蛋白锌指结构域或蛋白-蛋白相互作用结构域、或其组合的pex基因的子序列。
15、在一些实施例中,经修饰的酵母细胞是解脂耶氏酵母。
版权声明:本站专利文献数据主要来源于国家知识产权局等公开渠道,由 技术新讯 进行整理汇编。页面设计及数据汇编的著作权归本站所有。全部内容仅供个人学习、科研评估与技术交流参考,严禁用于任何商业用途(包括但不限于直接生产制造、技术转让、倒卖数据等)。
免责条款:专利技术具有时效性,本站不对资料的绝对准确性、完整性和可实施性提供任何明示或暗示的担保。因参考本站内容造成的直接或间接损失,本站不承担相关法律责任。若您认为本站内容有侵权问题,请及时提供权属证明与我们联系,本站将在核实后依法处理。反馈意见:yyfuon@163.com